

Neurotrofické a neurorescue efekty echinakosidu u subakutního MPTP myšího modelu Parkinsonovy choroby
Mar 21, 2022
Kontakt: ali.ma@wecistanche.com
Qing Zhao a kol
Abstraktní
Mnoho experimentů podporuje názor, že zvýšení aktivity neurotrofických faktorů (NTFS), zejména neurotrofického faktoru odvozeného z gliových buněk (GDNF) a neurotrofického faktoru odvozeného z mozku (BDNF), by mohlo zabránit nebo zastavit progresi neurodegenerace vParkinsonovichoroba(PD). Nicméně aplikace NTFS jako terapeutických činidel pro PD(Parkinsonovichoroba)je omezována obtížností jejich bezpečného a efektivního dodávání do určitých oblastí mozku. Další potenciální strategií je stimulace endogenní exprese NTFS. V této studii jsme zkoumali účinkyEchinakosid(ECH), monomer extrahovaný z bylin, na záchranu dopaminergní funkce u myší s lézí 1-methyl-4-fenyl-1, 2, 3, 6-tetrahydropyridinu (MPTP). Zjistili jsme, že orální podání ECH(echinakosid)(30 mg/kg/den po dobu 14 dnů) myším léčeným MPTP, počínaje poškozením nigrostriatálního systému, potlačila redukci nigrálních dopaminergních neuronů, striatálních vláken, dopaminu a transportéru dopaminu na 134,24 procenta, 203,17 procenta, 25 procent, 147. respektive 154,72 zvířat s MPTP lézí (str< 0.05).="" there="" was="" a="" relative="" elevation="" in="" the="" expression="" of="" gdnf="" and="" bdnf="" mrna="" (2.94="" and="" 3.75-fold)="" and="" protein="" (184.34%="" and="" 185.93%)="" in="" ech="" treated="" mice="" compared="" with="" vehicle-treated="" mptp-lesioned="" mice="">< 0.05).="" in="" addition,="" the="" apoptosis="" cells="" and="" bax/bcl-2="" ratio="" of="" mrna="" and="" protein="" in="" mptp-lesioned="" mice="" significantly="" increased,="" and="" these="" effects="" could="" be="" prevented="" by="" ech.="" at="" the="" 7th="" and="" 14th="" days="" of="" ech="" treatment,="" the="" gait="" disorder="" displayed="" obvious="" improvement="">< 0.05).="" these="" findings="" demonstrate="" that="" ech="" is="" probably="" a="" novel,="" orally="" active,="" a="" non-peptide="" inducer="" of="" ntfs="" and="" inhibitor="" of="" apoptosis,="" and="" they="" provide="" preclinical="" support="" for="" the="" therapeutic="" potential="" of="" this="" compound="" in="" the="" treatment="" of="">
klíčová slova: Parkinsonova nemoc, MPTP, Echinacoside, GDNF, BDNF, Neurorescue

Echinakosidv Cistanche máNeurotrofníaneurozáchranaúčinky naParkinsonovichoroba
Kliknutím získáte výhody extraktu z cistanche pro Parkinsonovu chorobu
1. Úvod
Parkinsonovichoroba(PD) je charakterizována progresivní dopaminergní smrtí neuronových buněk v substantia nigra, což má za následek vážné motorické deficity. Na rozdíl od neuroprotektivních strategií, jejichž cílem je zpomalit degeneraci, a proto musí být zahájeny dříve, než dojde k významnému poškození, se neurozáchranné nebo restorativní terapie zaměřují na odstranění neuronových deficitů a degenerace po zahájení poškození. Neurotrofické faktory (NTF) jsou secernované proteiny, které regulují přežití, funkční udržování a fenotypový vývoj neuronových buněk, zejména neurotrofický faktor odvozený z gliové buněčné linie (GDNF) a neurotrofický faktor odvozený z mozku (BDNF) jsou široce uznávány jako silné. faktory přežití pro dopaminergní neurony a nigrostriatální dráhu, které degenerují u PD(Parkinsonovichoroba). Zatímco neuroprotektivní nebo neurozáchranné aktivity těchto NTF byly prokázány v řadě experimentů in vitro a in vivo (Peterson a Nutt, 2008), jejich použití jako terapeutických činidel pro PD bylo ztíženo obtížemi při jejich dodávání do mozku, protože makromolekulové peptidy nemohou projít bariérou mezi mozkem a krví (BBB). Tedy klinické studie testující léčbu PD(Parkinsonovichoroba)použití buď chirurgického zákroku nebo genové terapie musí vyřešit problém účinného dodávání a exprese NTF (Dietz et al., 2006; Torp et al., 2006). Jako alternativa k takovýmto invazivním přístupům je potenciální strategií stimulace endogenní exprese NTF. Nedávno se ukázalo, že několik nepeptidových induktorů NTF, jako je XIB4035 a PYM50028, zmírňuje ztrátu dopaminergních neuronů a může mít příznivé účinky při léčbě PD (Tokugawa et al., 2003; Visanji et al., 2008) . Tato činidla s nízkou molekulovou hmotností mohou být podávána systémově, a tak by překonala většinu problémů spojených s účinností a bezpečností dodávání NTFS do mozku takovými metodami, jako je indukce exprese NTF virovými vektory nebo s použitím zapouzdřených NTF produkujících buňky (Bespalov a Saarma, 2007). Molekulám, které buď indukují endogenní expresi NTF nebo zesilují jejich signalizaci, je tedy věnována zvýšená pozornost jako alternativní terapeutické možnosti pro PD.(Parkinsonovichoroba).
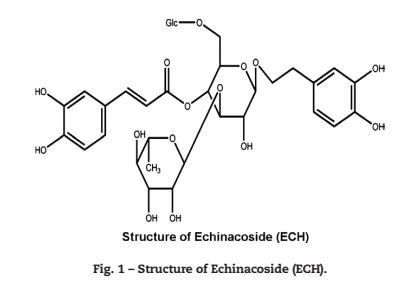
Echinakosid(ECH, obr. 1) je jednou z hlavních složek fenylethanoidních glykosidů (PhGs) extrahovaných ze slavné tradiční čínské medicíny Herba Cistanches (stonky Cistanche deserticola, Cistanche salsa nebo Cistanche tubulosa). Je také hlavní fenolickou složkou v kořenech Echinacea Angustifolia a E. pallida (Pellati et al., 2004), které jsou široce používány v Evropě a Severní Americe pro své imunoregulační vlastnosti (Hostettmann, 2003). Jako polyfenolový přírodní produkt ECH(echinakosid)má různé biologické aktivity, jako je silný antioxidant (Sloley et al., 2001; Dalby-Brown et al., 2005), vychytávání volných radikálů a snižuje množství NO radikálů generovaných aktivovanými makrofágy (Xiong et al., 2000). že může chránit před hepatotoxicitou (Wu et al., 2007) a akutním poškozením plic u potkanů (Zhang et al., 2007, Xiong et al., 1998). Působí také protizánětlivě, protinádorově, proti stárnutí a zlepšuje paměťové aktivity učení (přehled He et al., 2009). Několik studií uvedlo ECH(echinakosid)má antiapoptotické a neuroprotektivní vlastnosti u neurodegenerativních onemocnění, například ECH(echinakosid)vykazuje významné neuroprotektivní účinky na H2O2 poškozené PC-12 buňky a zachraňuje neuronální buňky SH-SY5Y před apoptózou indukující TNF prostřednictvím mitochondriální dráhy (Kuang et al., 2009; Deng et al., 2004). In vivo sloučenina chránila dopaminergní neurony u 6-hydroxydopaminem (6-OHDA)-poškozených potkanů tím, že zmírnila úbytek dopaminu (DA) a jeho meziproduktů (Chen et al., 2007a,b). Jiná studie uvedla, že ECH měla neuroprotektivní účinky a zlepšení chování u myšího modelu dopaminergního poškození neuronů vyvolaného MPTP, zatímco další výzkum odhalil, že ECH indukovala down-regulaci aktivace kaspázy-3 a kaspázy{15}} v MPP plus indukovaná apoptóza neuronů cerebelárních granulí (Geng et al., 2007). Tyto studie však zkoumaly pouze antiapoptotické nebo neuroprotektivní role ECH metodou předběžného ošetření. Dosud nebyly řešeny otázky, zda ECH ovlivňuje další dopaminergní neuronální propřežití a faktory související se smrtí (jako jsou NTF a rodina Bcl{21}}) a zda má neurozáchranné účinky. Přezkoumáním řídké literatury o indukci NTF bylinami nebo rostlinnými sloučeninami jsme zjistili, že Rehmannia glutinosa a catalpol, dvě byliny s podobnými funkcemi jako Cistanches podle tradiční čínské lékařské teorie, mohly indukovat genové a proteinové exprese GDNF jak in vitro, tak in vivo. pak zmírnit MPTP-indukovanou neuronální degeneraci nigrální-striatální dopaminergní dráhy (Yu et al., 2006; Xu et al., 2010). Proto jsme předpokládali, že ECH může mít také analogickou účinnost. Na druhou stranu, model subakutní MPTP myší je docela populární režim, který zahrnuje jednu injekci 30 mg/kg denně po dobu pěti po sobě jdoucích dnů. Tento režim způsobuje apoptózu a vyčerpává striatální dopamin o 40–50 procent u mladých dospělých myší C57BL/6 a dopaminergní léze se stabilizuje do 21 dnů po podání MPTP (Tatton a Kish, 1997; Jackson-Lewis a Przedborski, 2007). Naše současná studie tedy volí tento model a zkoumá účinky ECH na expresi GDNF a BDNF, dvou nejúčinnějších NTF spojených s přežitím dopaminergních neuronů, a dále demonstruje neurozáchranné a antiapoptotické schopnosti této sloučeniny po subakutní MPTP lézi. indukce v myším modelu PD(Parkinsonovichoroba).
2. Výsledky
2.1. ECH(echinakosid)zlepšuje dysfunkce chůze u subakutního MPTP myšího modelu PD(Parkinsonovichoroba)
Zkrácená délka kroku je jednou z hlavních charakteristik abnormální chůze u PD(Parkinsonovichoroba). Výsledky naší studie prokazují významné snížení délky kroku přední a zadní končetiny u myší s lézí MPTP léčených vehikulem (fyziologickým roztokem) 9. den po posledním podání MPTP, tj. 7. den léčby vehikulem, ve srovnání s normální kontrolní skupina (p= 0.023, 0,014, obr. 2A, B). Mezitím délky kroků myší ve vysoké dávce ECH(echinakosid)(30 mg/kg/den) léčebná skupina je delší než u zvířat s nosičem MPTP, zejména pro zadní končetiny (p= 0,024, 0,009). Navíc zlepšení spojené s vysokou dávkou ECH(echinakosid)byl také pozorován 14. den léčby (p= 0.015, 0,012), ačkoli u myší s lézí MPTP došlo také k mírnému spontánnímu zotavení. Střední (20 mg/kg/den) a nízká (10 mg/kg/den) dávka ECH(echinakosid)léčené skupiny vykazovaly tendenci k delším délkám kroku, nicméně rozdíly mezi nimi a myšmi léčenými MPTP vehikulem nebyly významné.
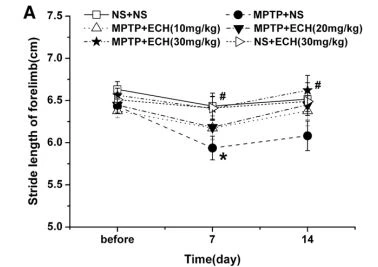
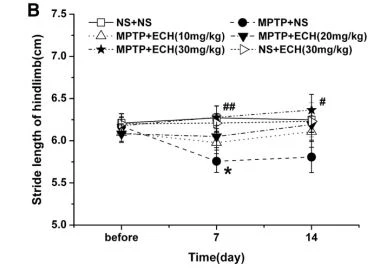
Obr. 2 – ECH(echinakosid)zlepšilo poškození chůze vyvolané subakutní injekcí MPTP. A: Délka kroku přední končetiny. Délky předních končetin v testu analýzy chůze vykazovaly signifikantní snížení ve skupině MPTP plus NS (fyziologický roztok) ve srovnání se skupinou NS plus NS 7. den léčby MPTP vehikulem, ale těmto deficitům bylo zabráněno vysokou dávkou ECH(echinakosid)(30 mg/kg/den) při měření 7. a 14. den léčby. B: Délka kroku zadní končetiny. Délka kroku zadní končetiny myší s MPTP lézí se zjevně snížila ve srovnání s kontrolami s fyziologickým roztokem 7. den léčby MPTP vehikulem a byla také významně zlepšena vysokou dávkou ECH(echinakosid). Data jsou vyjádřena jako průměr ± SEM (n=10 každý). * str< 0.05="" vs.="" ns+ns="" group;="" #="">< 0.05="" vs.="" mptp+ns="">

Echinakosidv Cistanche máNeurotrofníaneurozáchranaúčinky naParkinsonovichoroba
2.2. ECH(echinakosid)zmírňuje ztrátu nigrálních TH-pozitivních neuronů a striatum TH-pozitivních axonů u myší se subakutní MPTP lézí
Po ukončení 14denní léčby ECH(echinakosid)nebo vehikula a dokončení hodnocení chování byla polovina myší v každé skupině usmrcena pro Nissl a TH-imunoreaktivní detekci. Reprezentativní řezy koronálního mezencefala obsahující TH-pozitivní neurony a vlákna v substantia nigra compacta (SNpc) a striatum myší jsou znázorněny na Obr. 3A, B, C, D. Došlo k významnému snížení počtu Nissl-pozitivních neuronů (pouze kresyl violeť pozitivní) a TH-pozitivních neuronů (jak TH, tak kresyl violet pozitivní neurony) v SNpc pro skupinu s lézí MPTP ošetřenou vehikulem. ve srovnání s kontrolními myšmi bez lézí (71,89 procent a 67,97 procent kontroly s fyziologickým roztokem, p= 0.000, 0.000, obr. 3A, B, E) . U myší, kterým byla denně perorálně podávána vysoká dávka ECH(echinakosid)počet Nissl-pozitivních a TH-pozitivních neuronů byl významně vyšší než u zvířat léčených MPTP vehikulem (135,39 procent a 134,24 procent MPTP kontroly, p= 0.000), a bylo dokonce blízko k těm u kontrolních myší bez lézí (97,34 procent a 91,25 procent). Podobný, ale slabší účinek byl také pozorován ve skupině léčené střední dávkou ECH (125,39 procent a 124,59 procent kontroly MPTP, p= 0.002, 0,004). Ale léčba nízkou dávkou ECH nepřinesla významný záchranný efekt. Na druhou stranu podobná tendence změn pro Nissl-pozitivní a TH-pozitivní neurony v SNpc vyloučila interferenci výsledků v důsledku regulace TH enzymu.
Doprovodná ztráta DA neuronů v MPTP modelu PD(Parkinsonovichoroba)je redukce TH-pozitivních vláken přes striatum. Pozorovali jsme zjevnou fragmentaci TH-pozitivních axonů ve striatu zvířat s MPTP lézí, ale poškození se zlepšilo v ECH(echinakosid)léčebné skupině, zejména v případě vysoké dávky ECH(echinakosid)(obr. 3D). Dále, analýza optické hustoty (OD) TH-pozitivních vláken odhalila významnou ztrátu DA zakončení ve skupině léčené MPTP vehikulem (47,37 procent kontroly s fyziologickým roztokem, p= 00,001, obr. 3F). Naproti tomu u myší, které dostaly vysokou dávku ECH, bylo pozorováno zřejmé relativní zvýšení hustoty TH-pozitivních vláken(echinakosid)ošetření ve srovnání s kontrolními zvířaty s poškozením MPTP (203,17 procent kontroly MPTP, p= 0,003, obr. 3C, F), čímž se dostala na 96,24 procent normálních kontrolních hladin. Mezitím skupina se střední dávkou ECH také vykazovala účinky významného, ale slabšího neurozáchranného účinku (177,78 procent kontroly MPTP, p= 0,022), zatímco skupina s nízkou dávkou nevykazovala žádné výhody.


2.3. ECH(echinakosid)inhibuje pokles striatálního DA u subakutního MPTP myšího modelu PD(Parkinsonovichoroba)
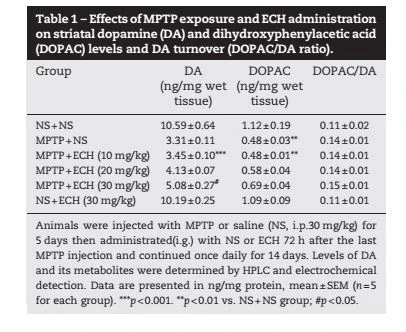
Na konci experimentu byl obsah DA ve striatu v modelu MPTP ošetřeném vehikulem pouze 31,25 procent normálních kontrol (p= 0.000, tabulka 1). Po podání vysoké dávky ECH(echinakosid)po dobu 2 týdnů se obsah DA zvýšil na 47,97 procenta normálu a byl významně vyšší než u myší s lézí MPTP (p= 0,015). Na druhé straně, obsah metabolitů DOPAC poklesl v MPTP modelu byl také zvýšen ECH(echinakosid)so that the ratio of DOPAC/DA was not significantly changed (p>0.05). Zdálo se, že ECH(echinakosid)nemá žádné zjevné předpisy o katabolismu DA.
2.4. ECH(echinakosid)zvyšuje striatální DAT protein u myší se subakutní MPTP lézí
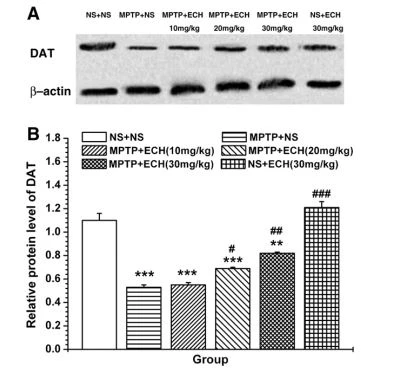
Analýza Western blot ukázala, že MPTP-indukovaný výrazný pokles proteinu transportéru dopaminu (DAT) ve tkáni striata ve srovnání s kontrolou s fyziologickým roztokem 14 dní po jeho poslední injekci (p=0.000, obr. 4A, B ). Nicméně zvířata s lézí MPTP byla léčena vysokými a středními dávkami ECH(echinakosid)inhibovala redukci DAT proteinu (p{{0}},001, 0,046). Nízká dávka ECH nevykazovala žádnou aktivitu na zvýšení exprese DAT.
2.5. ECH(echinakosid)redukuje apoptózní buňky v nigru myší se subakutní MPTP lézí
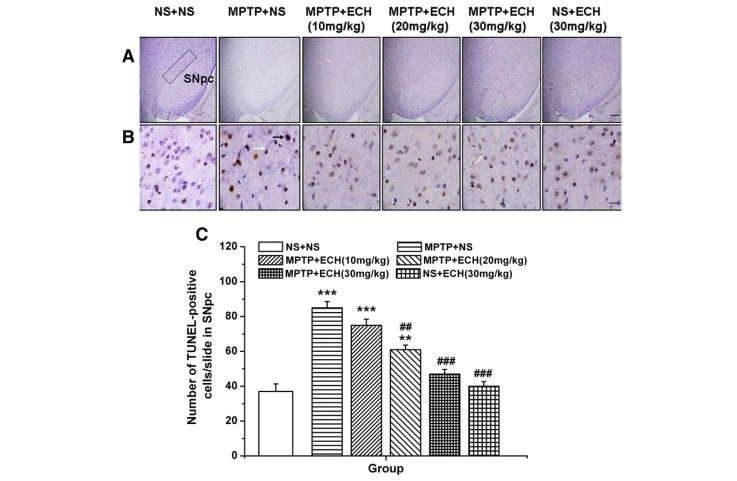
S pomocí techniky terminálního deoxynukleotidyltransferázou zprostředkovaného dUTP-biotinového nick end značení (TUNEL) bylo v SNpc myší se subakutní MPTP lézí detekováno více apoptotických buněk obsahujících intenzivně tmavě hnědá barvící jádra a znatelně se zmenšující soma ve srovnání s normální kontrolou ( p= 0.000, obr. 5A, B, C). Nicméně zvíře s injekcí MPTP bylo léčeno vysokými a středními dávkami ECH(echinakosid)prokázali významný pokles TUNEL pozitivních buněk ve srovnání s modelem MPTP ošetřeným fyziologickým roztokem (p= 0.000, 0.003).
2.6. ECH(echinakosid)zvyšuje relativní hladiny mRNA a proteinů GDNF a BDNF v substantia nigra myší se subakutní MPTP lézí
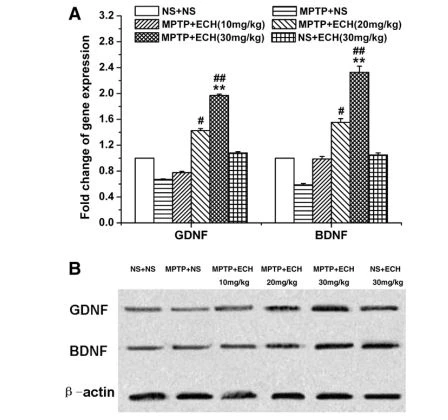
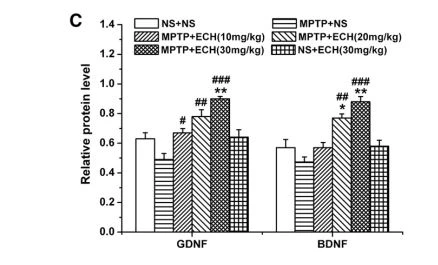
To define the changes in GDNF and BDNF expression at both transcriptional and protein levels after the different treatments real-time PCR and Western blot analysis were used. There were no significant differences in mRNA and protein levels of GDNF and BDNF in the ventral midbrain between the MPTP-vehicle treated animals and the saline control group at the end of the experiment (p>0.05, Obr. 6A, B, C). Nicméně po dvou týdnech léčby vysokou dávkou ECH(echinakosid), relativní hladiny mRNA a proteinu GDNF byly významně zvýšeny ve srovnání s myšmi s lézí MPTP léčenými vehikulem (2.94-krát u mRNA a 184,34 procent u proteinu kontroly MPTP, p=0.{{{{{1} {/1} 8}}05, 0.000). Tato zvýšení byla také významná ve srovnání s kontrolními zvířaty s fyziologickým roztokem (1,{11}}násobek a 142,63 procent kontroly s fyziologickým roztokem, p=0,003, 0,001, obr. 6A, C). Mezitím ECH se střední dávkou(echinakosid)vykazovala slabší, ale stále zjevné zvýšení hladin mRNA a proteinů GDNF (2.13-násobek a 160,55 procent kontroly MPTP, p= 0,012, 0,001). K podobným změnám došlo v expresi BDNF, který měl významně vyšší relativní hladiny mRNA a proteinů ve vysokých dávkách ECH(echinakosid)léčená skupina ve srovnání s MPTP-lézemi nebo normálními kontrolními myšmi (3,75 krát a 185,93 procent MPTP kontroly, p= 0.001, 0.000; 2,33 krát a 154,39 procent kontroly s fyziologickým roztokem, p= 0,002, 0,001, obr. 6A, C). Léčba středně dávkou ECH(echinakosid)zvýšily expresi mRNA i proteinu BDNF (2,51krát a 162,69 procent kontroly MPTP, p= 0.044, 0,002). Tak ECH(echinakosid)byl schopen zvýšit jak mRNA, tak proteinové exprese GDNF a BDNF určitým způsobem závislým na dávce.
2.7. ECH(echinakosid)zeslabuje relativní poměr mRNA a proteinů Bax/Bcl-2 v substantia nigra myší se subakutní MPTP lézí
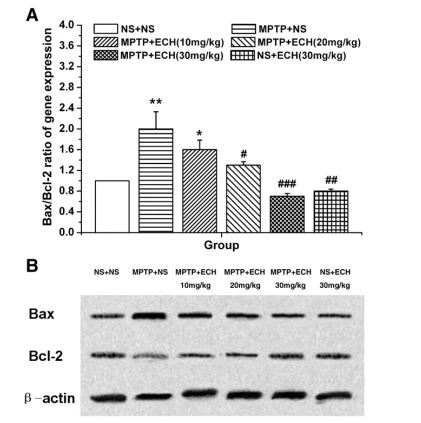
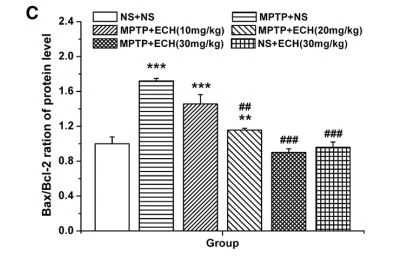
Účinky ECH(echinakosid)na apoptózu, o které je známo, že je dalším důležitým faktorem souvisejícím se ztrátou nigrálních dopaminergních neuronů u PD(Parkinsonovichoroba), were assessed by analyzing the Bax and Bcl-2 expression by Real-time PCR and Western Blot. The relative mRNA levels of the pro-apoptotic factor Bax increased in SN of MPTP-lesioned mice (2.14-fold of saline control, p=0.036), while those of the anti-apoptotic factor Bcl-2 were not significantly different with normal control mice (p>0.05, obr. 7A). Poměr mRNA Bax/Bcl-2 se však u myší s lézí významně zvýšil (1,{5}}násobek kontroly fyziologickým roztokem, p=0,002) a toto zvýšení mohlo být zvráceno vysokou dávkou ECH(echinakosid) after 14 days of treatment (37.12% of MPTP control, p=0.000, Fig. 7A) due to a slight down-regulation of Bax (82.71% of MPTP control, p>0.05) a zjevnou zvýšenou regulaci exprese Bcl-2 genu (2.39-násobek kontroly MPTP, p=0.000). U ECH se střední dávkou byly pozorovány podobné, ale slabší účinky na poměr mRNA Bax/Bcl-2(echinakosid)ve srovnání s myšmi s MPTP-lézemi ošetřenými vehikulem (63,88 procent kontroly MPTP, p=0.016, obr. 7A). Jedním souhlasem byl poměr proteinů Bax/Bcl-2 významně zvýšen u myší s lézí MPTP (265,97 procent kontroly fyziologickým roztokem, p=0.000) a zvrácen vysokým a mírné dávky ECH(echinakosid)(52,33 procenta, 67,25 procenta kontroly MPTP, p=0.000, 0,001 obr. 7B, C), ale ne dávkou 10 mg/kg ECH, zrcadlení účinky pozorované na poměr Bax/Bcl{10}} mRNA.
3. Diskuse
V této studii poprvé prokazujeme, že ECH(echinakosid), monomer extrahovaný z tradiční čínské byliny, má neurozáchranné aktivity v subakutní MPTP myším modelu PD(Parkinsonovichoroba)stejně jako potenciál indukovat expresi NTF na úrovni transkripce i proteinu. Po 14 dnech perorálního podání ECH(echinakosid)prokázali multifunkční účinky na záchranu funkce dopaminergních neuronů, zmírnění snížení DAT, inhibici růstu řady apoptózových buněk v SNpc a zlepšení poruchy chůze ve srovnání s myšmi s lézí MPTP ošetřenými fyziologickým roztokem. Předpokládáme, že neurozáchranné aktivity ECH alespoň částečně souvisí s relativním zvýšením mRNA a proteinové exprese GDNF a BDNF a také s regulací na Bax a Bcl-2, dvou klíčových molekulách Bcl{{3 }} rodina zapojená do apoptózy dopaminergních neuronů v SN.
Ačkoli zjištění týkající se různých terapeutických cest z různých in vitro a in vivo PD(Parkinsonovichoroba)modely jsou slibné, neuroprotekce u PD(Parkinsonovichoroba)zůstává nedosažitelným cílem. Ve srovnání s identifikovanými strategiemi neuroprotekce, které téměř vždy vyžadovaly předléčení (tj. podání před poraněním), jsou neurozáchranné nebo restorativní strategie více v souladu se způsobem klinické farmakologické intervence v časném stadiu PD. V naší studii ECH(echinakosid)podávání bylo zahájeno po MPTP lézi, na rozdíl od předchozího výzkumu, a vykazovalo jasné výhody. Dalším účelem léčby s odloženým startem bylo zajistit, aby žádné pozorované účinky nebyly způsobeny sloučeninou interferující s přeměnou MPTP na jeho aktivní metabolit MPP plus, reakcí zprostředkovanou MAO-B ani potenciální rychlou down-regulovanou funkcí DAT a poté zablokujte vychytávání MPP plus (Sagi et al., 2007; Lai et al., 2009).
Je dobře známo, že přežití neuronů vyžaduje trofickou podporu. GDNF a BDNF jsou nejslibnějšími trofickými faktory v neurozáchranné nebo restorativní léčbě neurodegenerativních onemocnění, zejména u PD(Parkinsonovichoroba). K dnešnímu dni byla provedena řada klinických studií ke studiu přenosu trofických faktorů, zejména GDNF, přímo do mozku PD, ale přinesly smíšené výsledky. Problém může být způsoben místem a způsobem podání, konkrétně distribucí GDNF po různých injekčních nebo infuzních technikách (Lang a kol., 2006; Morrison a kol., 2007; Nutt a kol., 2003; Slevin a kol. , 2007). Při léčbě využívající buněčné systémy nebo genovou terapii aplikovanou virovými vektory by nadměrná exprese genu a proteinu GDNF mohla podporovat životaschopnost buněk v dopaminergních neuronech středního mozku a vyvolat symptomatické zlepšení u potkanů s lézemi 6-OHDA a u léčených opic s MPTP (Andereggen a kol., 2009; Kong a kol., 2008). Tyto terapie však stále mají kritické problémy týkající se jejich klinické aplikace kvůli otázkám o účinnosti a stabilitě přenosu genů a možnosti imunitních odpovědí (Mochizuki, 2009).
Přestože bylo vynaloženo úsilí překonat problémy v buněčné nebo genové terapii spojené s porodem prostřednictvím neurochirurgie, stále větší pozornost je nyní věnována strategiím, které indukují expresi endogenních trofických faktorů nebo zvyšují jejich signalizaci jako alternativní terapeutické možnosti pro PD.(Parkinsonovichoroba)(Chen et al., 2007a,b; Saavedra et al., 2008). V této studii poprvé uvádíme, že ECH(echinakosid)má neurozáchranné a neurotrofické účinky u PD(Parkinsonovichoroba)myším modelu a tyto účinky jsou spojeny s up-regulací GDNF a BDNF na úrovni mRNA a proteinu. Významný rozdíl v počtu axonů nebo vláken v ECH(echinakosid)myši ošetřené vehikulem ve srovnání s myšmi s MPTP lézí ošetřenými vehikulem prokázaly, že tato sloučenina podporuje růst a regeneraci neuritů. Je pozoruhodné, že hustota vláken u léčených myší se blížila normálním nezraněným úrovním (-96,24 procent pro vysokou dávku ECH). Potenciálním vysvětlením zjevně vyššího počtu TH-pozitivních neuronů u myší s lézí léčených ECH je to, že ECH napodobuje nebo zesiluje role GDNF a BDNF, zejména GDNF může silně modulovat životaschopnost a fenotypovou expresi dopaminových ventrálních mezencefalických neuronů a může kompenzovat ztrátu buněk (Palfi et al., 2002). Jinými slovy, je možné, že ECH up-reguluje transkripci genu TH, podobně jako GDNF (Xiao et al., 2002). Naše studie tedy nejen potvrdila, že ECH je prospěšný jako přírodní nízkomolekulární lék na myším modelu MPTP, ale také prokázala potenciální mechanismy těchto účinků v souladu se zprostředkováním trofickými faktory.
EchinakosidvCistanchemáNeurotrofníaneurozáchranaúčinky naParkinsonovichoroba
Dalším zajímavým zjištěním v naší studii je, že neexistují žádné zjevné známky aktivace dráhy přežití MAPK/ERK1/2 nebo Ras-PI3K-Akt, o které bylo hlášeno, že přispívá k neurozáchranným účinkům NTF (Yu et al., 2006; Sagi et al. ., 2007). Protože p-ERK1/2 (aktivovaná fosforylovaná forma MAPK) a p-Akt (aktivovaná značka dráhy Ras-PI3K-Akt) nebyly detekovány analýzou Western blot ve středním mozku zvířat s lézí MPTP léčených vysokou dávkou ECH (data nejsou zobrazena). Jedním z možných vysvětlení je opožděná doba detekce, protože aktivita ERK se obvykle rychle zvyšuje po stimulaci lékem (Hisaoka et al., 2007) a další pravděpodobnost je nezapojení těchto signálních drah pro neurozáchranné nebo neurotrofické účinky ECH v subakutním myším modelu MPTP PD(Parkinsonovichoroba)které je třeba dále prozkoumat.
V naší studii subakutní režim MPTP u PD(Parkinsonovichoroba)myší model způsobuje apoptózu a dopaminergní léze, které se stabilizují do 21 dnů po podání MPTP, což je v souladu se záznamem z předchozí literatury (Jackson-Lewis a Przedborski, 2007). Potlačení apoptózy může chránit neurony před poškozením od deprivace trofických faktorů až po patologické podněty (Yuan a Yankner, 2000). Kromě toho mohou NTF chránit neurony proti apoptóze vyvolané mitochondriemi, ke které dochází v důsledku aktivace fosfatidylinositol{5}}kinázové dráhy (Toth et al., 2002). Je známo, že apoptóza je regulována několika cestami. Předchozí výzkum týkající se Bcl-2 proteinů podporuje názor, že takoví členové proapoptotické rodiny se podílejí na smrti neuronů u různých PD(Parkinsonovichoroba)modely (Levy et al., 2009). Proteiny podporující apoptózu, včetně Bax, působí na cytochrom v mitochondriální membráně, zatímco proteiny zabraňující apoptóze, jako je Bcl-2, působí heterodimerizací s proteiny Bax a zabraňují jejich aktivitě. Je tedy známo, že poměr Bax/Bcl-2 určuje, zda některé buňky budou žít nebo zemřít (Tanaka et al., 2004). Předchozí výzkum z naší laboratoře prokázal potenciální neuroprotektivní a antiapoptotické role ECH(echinakosid)na buňkách SH-SY5Y indukovaných MPP plus pomocí průtokové cytometrie a dalších testů souvisejících s apoptózou (Wang et al., 2007). Přistoupili jsme tedy k analýze molekulárního základu antiapoptotických účinků ECH(echinakosid)in vivo v této studii. Zjistili jsme, že vysoké a střední dávky léčby ECH inhibují zvýšení jak počtu TUNEL-pozitivních buněk apoptózy v SNpc, tak poměru Bax/Bcl-2 na úrovni genů a proteinů ve srovnání se skupinou s lézí MPTP. Tato pozorování poskytují určitá vodítka o potenciálních antiapoptotických mechanismech ECH mimo účinky na rodiny kaspáz. Ačkoli naše předběžná studie neurčila fenotyp apoptotických buněk, předchozí výzkum naznačuje, že TH-pozitivní neurony podléhají apoptotické degeneraci a ztrácejí svou TH aktivitu, ale ne gliové buňky v neakutním MPTP myším modelu PD (Novikova et al., 2006) . Naše studie navíc dále potvrzuje zapojení členů rodiny Bcl-2 do patogeneze subakutního myšího modelu PD vyvolaného MPTP(Parkinsonovichoroba). Zůstává nejasné, zda existují společné cesty, pokud jde o vztah mezi členy rodiny Bcl{0}} a NTF. Nicméně naše současné výsledky naznačují, že zvýšení hladiny endogenního GDNF a/nebo BDNF a regulace exprese Bcl-2 proapoptotických členů rodiny může být užitečnou strategií pro terapii neuronální regenerace.
Konečně účinky ECH(echinakosid)na zmírnění poruchy chůze u MPTP myšího modelu ilustrují jeho potenciál jako symptomatické medikace se zaměřením na nedopaminergní cíle, které jsou v současné době středem slibného výzkumu v klinických studiích. V PD(Parkinsonovichoroba)motorické symptomy, jako je bradykineze a rigidita, dobře reagují na léky nahrazující dopamin. Problémy s rovnováhou a chůzí mohou být také zvráceny dopaminergními činidly časně v průběhu onemocnění, ale obvykle se stávají odolnými s progresí onemocnění (Meredith a Kang, 2006). V naší studii krátkodobé (7 dní) podávání s vysokou dávkou ECH(echinakosid)měl pozitivní vliv na délku kroku myší, což naznačuje, že může být slibným doplňkem léků nahrazujících dopamin.
Je třeba poznamenat, že naše studie také zkoumala expresi gliových buněk pomocí imunofluorescence, ale žádná změna astrogliální nebo aktivované mikrogliální exprese nebyla pozorována u myší s lézí MPTP léčených ECH(echinakosid)ve srovnání s MPTP myšmi ošetřenými fyziologickým roztokem (data nejsou uvedena). Bez ohledu na to můžeme naznačit, že účinky ECH(echinakosid)nejsou omezeny na výše uvedené póly dopaminergního systému a budou vyžadovány další studie k definování úplných rolí ECH a mechanismů v modelech PD u hlodavců nebo primátů(Parkinsonovichoroba).
Na závěr tato studie prokazuje, že ECH(echinakosid)vykazovaly neurozáchranné účinky na MPTP-indukovanou ztrátu dopaminergních neuronů a vláken in vivo, stejně jako na zhoršení chování. Zdá se, že tyto účinky korelují s multifaktoriálními aktivitami této sloučeniny, včetně zmírnění toxicity MPTP vůči DAT, zvýšení exprese neurotrofických faktorů GDNF/BDNF a potlačení abnormální apoptózy ve ventrálním středním mozku myší se subakutní lézí MPTP prostřednictvím regulace Bcl{{{101} 1}} členů rodiny. V kombinaci s výsledky naší předchozí studie týkající se neuroprotektivních účinků ECH(echinakosid)in vitro předpokládáme, že tato sloučenina má potenciál nejen zpomalit progresi PD(Parkinsonovichoroba)ale také zvrátit existující neurodegenerativní poškození a dokonce zlepšit symptomy. Ve shodě tyto údaje naznačují, že ECH(echinakosid)je slibný, klinicky použitelný přístup pro léčbu PD(Parkinsonovichoroba).
4. Experimentální postupy
4.1. Zvířecí protokoly
Všechny postupy byly schváleny Animal Ethical Committee of Zhongshan Hospital Fudan University a byly provedeny v souladu s National Institutes of Health Guide for the Care and Use of Laboratory Animals.
Experimenty byly prováděny s použitím samců myší C57BL/6 zakoupených od Shanghai Slac Laboratory Animal Company (Shanghai, Čína) ve věku 10 týdnů a o hmotnosti 24–26 g. Zvířata byla chována ve standardních podmínkách (cyklus 12/12 h světlo/tma, 21±2 stupně a relativní vlhkost 40 procent) a byl jim umožněn přístup k potravě a vodě ad libitum.
4.2. Správa MPTP
Myši dostávaly denně intraperitoneální (ip) injekce vehikula (fyziologický roztok) nebo MPTP (30 mg/kg/den; Sigma, USA) rozpuštěných ve fyziologickém roztoku po dobu pěti po sobě jdoucích dnů k vyvolání parkinsonismu. Každá léčebná skupina zahrnovala deset myší. ECH byl zakoupen od Chengdu Push Bio-Technology Co. Ltd (Sichuan, Čína). Extrakt je v souladu s Enterprise Standard a byl testován pomocí HPLC větší nebo rovný 98 procentům. ECH(echinakosid)byl rozpuštěn ve fyziologickém solném roztoku a upraven pH na 7,4 před podáním pomocí intragastrického (ig) podání. Účinky ECH(echinakosid)na MPTP-indukovaný parkinsonismus byly studovány v následujících experimentálních skupinách: Skupina I, NS (fyziologický roztok, ip) plus NS (ig); skupina II, MPTP (ip) plus NS (ig); Skupina III, MPTP (ip) plus ECH 10 mg/kg/den (ig); Skupina IV, MPTP (ip) plus ECH 20 mg/kg/den (ig); Skupina V, MPTP (ip) plus ECH 30 mg/kg/den (ig); Skupina VI, NS (ip) plus ECH 30 mg/kg/den (ig).
Zvířata ve skupinách I–VI dostávala fyziologický roztok nebo MPTP (ip) denně po dobu 5 dnů; vozidlo (fyziologický roztok) nebo ECH(echinakosid)léčba (ig) byla zahájena 72 hodin po posledním podání MPTP a podávána denně po dobu 14 dnů. Myši byly usmrceny cervikální dislokací nebo perfuzí po posledním podání vehikula nebo ECH a pozorování chování.
4.3. Test chůze
Test chůze byl proveden podle dříve publikovaných metod (Fernagut et al., 2002; Fleming et al., 2004; Tillerson et al., 2002) s menší modifikací. Přístroj se skládal z dráhy 4,5 cm (šířka) × 40 cm (délka) × 12 cm (výška) osvětlené světlem (60 W) a černé dřevěné krabice, 20 cm (šířka) × 17 cm (délka) × 10 cm (výška) umístěné na jednom konci dráhy. Přední a zadní tlapky zvířat byly navlhčeny tužkovým modrým inkoustem a bylo jim umožněno klusat na pruhu papíru (šířka 4,5 cm, délka 40 cm) po jasně osvětlené dráze směrem k tmavému boxu. Délky kroků byly měřeny ručně jako vzdálenost mezi dvěma otisky tlapek. Z každého běhu byly měřeny tři nejdelší délky kroku (odpovídající maximální rychlosti). Otisky tlapek na začátku (7 cm) a na konci (7 cm) běhu byly vyloučeny kvůli změnám rychlosti. Z analýzy byly vyloučeny běhy, ve kterých experimentátor pozoroval myši zastavující se nebo zjevné zpomalení. Hodnocení chování bylo provedeno 3 dny před první injekcí MPTP a 7. a 14. den ECH(echinakosid)nebo ošetření vozidla.
4.4. Perfuze a zpracování tkání
Na konci experimentu byla polovina zvířat (n{{0}}) v každé skupině usmrcena pod 10procentní anestezií z předávkování chloralhydrátem (360 mg/kg ) poté perfundovány intrakardiální infuzí fyziologickým roztokem (0,9 procenta) a následně 4 procenty paraformaldehydu (PFA), pH 7,4. Po intrakardiální perfuzi byly mozky odebrány a následně fixovány ve 4% PFA po dobu 24 hodin při 4 stupních, zalité v parafínu a nařezány na 5 µm koronální řezy zahrnující celou kompaktní část substantia nigra (SNpc) a striatum (ST) (předozadní úrovně: Bregma -2,92 mm až -3,64 mm a plus 0,02 až plus 0.{20}} mm) pomocí atlasu myšího mozku (Franklin a Paxinos, 1996).
Dalších 5 zvířat v každé skupině bylo usmrceno cervikální dislokací a tkáň jejich ventrálního středního mozku a striatum byly rychle rozřezány na ledu (Jackson-Lewis a Przedborski, 2007), zmrazeném v kapalném dusíku a skladovány při -80 stupních až do použití.
EchinakosidvCistanchemáNeurotrofníaneurozáchranaúčinky naParkinsonovichoroba
4.5. Tyrosinhydroxyláza a Nissl imunohistochemie
Imunohistochemie mozkových tkání byla provedena tak, jak bylo popsáno dříve (He et al., 2008; Yokoyama et al., 2008) s menšími úpravami. Stručně řečeno, jedna sada řezů přes SNpc (skládající se ze 14–15 řezů) byla připravena pro barvení Nissl (kresylová violeť) pomocí rutinních postupů, zatímco další sada přes SNpc a jedna sada přes ST (sestávající z 15–16 řezů) byla zpracována. pro imunohistochemii tyrosinhydroxylázy (TH). Posledně jmenované části byly inkubovány s 0,3% peroxidem vodíku (H2O2) po dobu 10 min při pokojové teplotě, aby se odstranila endogenní peroxidázová aktivita, a poté umístěny do blokovacího pufru obsahujícího 10 procenta kozího séra s 0,2 procenta Triton X-100 v 0,01 M PBS (pH 7,2) po dobu 30 minut při 37 stupních. Při každém ošetření byla sklíčka promyta alespoň třikrát 0,01 M PBS, každé po dobu 5 minut. Poté byly inkubovány při 4 stupních přes noc s myší anti-TH monoklonální protilátkou (Sigma, USA) v ředění 1:2000 v 0,01 M PBS obsahujícím 1 procento kozího séra a 0,2 procenta Triton X-100. Druhý den byly řezy ošetřeny po dobu 30 minut biotinylovaným anti-myším IgG a poté zpracovány komplexem streptavidin-peroxidáza (ABC kit, Vector, USA). Reakce peroxidázy byla vizualizována pomocí 0,05 procenta diaminobenzidinu (DAB) s 0,03 procenta H2O2 v pufru Tris-HCl. Řezy přes SNpc byly kontrastně obarveny kresylovou violetí (Sigma, USA) a také pro anatomickou referenci. Pro kontroly byly řezy zpracovány tak, jak je popsáno výše, kromě toho, že nebyla použita žádná primární protilátka. Kontrolní řezy byly imunonegativní
4.6. Kvantifikace TH-imunoreaktivních neuronů a vláken
Každý 10. řez (celkem 14–15 řezů) přes SNpc odpovídající Bregmě -2,92 mm až -3,64 mm byl analyzován pomocí mikroskopu Olympus BX51 s kamerou DP71 (Olympus, USA). Po vymezení SNpc při nízkém zvětšení (4× objektiv) podle atlasu myšího mozku byly Nissl-obarvené a TH-imunoreaktivní buňky na pravé straně spočítány dvěma pozorovateli, kteří byli slepí vůči léčbě při větším zvětšení (20× objektiv) . TH-pozitivní (TH a kresyl violeť pozitivní) a Nissl-obarvené (kresyl violet pozitivní) buňky s jádrem byly spočítány, aby se zajistilo, že léčebné účinky souvisejí se zvýšením TH buněk spíše než s up-regulací enzymu. Všimněte si, že analýzy TH-imunoreaktivních profilů byly omezeny na SNpc a tak vyloučily ventrální tegmentální oblast.
Optická hustota (OD) striatálních dopaminergních vláken byla analyzována na počítači pomocí softwaru Image-Pro Plus podle dříve popsané metody optického disektoru (Burke, et al., 1990; Wu et al., 2{ {5}}02). Průměrné značení pro každou oblast bylo vypočteno na pěti automaticky odpovídajících řezech mozku stejného zvířete odpovídajících Bregma plus 0,38 mm– plus 0,50 mm v atlasu myšího mozku (n= 5 každá skupina). Pravá strana striatálních snímků byla pořízena při stejném zvětšení (objektiv 10x) a OD barvení tak byla hodnocena pro celou oblast řezů automaticky. Intenzity pozadí odebrané z corpus callosum bez TH barvení byly odečteny od každého měření.
4.7. Test TUNEL
Sériové mozkové koronální řezy přes SNpc odpovídající Bregma -2,92 mm až -3,64 mm byly shromážděny pomocí atlasu myšího mozku (Franklin a Paxinos, 1996). Nejméně jeden z každých 10 řezů (celkem 14–15 řezů) z každého zvířete byl zpracován pro in situ koncové značení barvení fragmentované DNA (TUNEL) pomocí In situ Cell Death Detection Kit, AP (Roche, Německo) podle pokyny a literatura výrobce s drobnými úpravami (Novikova et al., 2006; He et al., 2008). Negativní kontroly byly provedeny paralelně bez terminální deoxynukleotidyltransferázy. Řezy byly nakonec kontrastně obarveny hematoxylinem. Celkový počet TUNEL pozitivních buněk na jednom sklíčku (celkem 14–15 řezů, pravá strana) od každého zvířete byl spočítán naslepo pod světelným mikroskopem při 20násobném zvětšení objektivu v rámci anatomických hranic SNpc.
4.8. HPLC
Striatální tkáň byla testována na hladiny DA a jeho metabolitů pomocí vysokotlaké kapalinové chromatografie (HPLC) Coulochem III systémů s elektrochemickou detekcí (ESA Inc., Chelmsford, MA), jak bylo dříve popsáno s menší modifikací (Petroske et al., 2{{ 4}}{{10}}1; Schneider a kol., 2006). Stručně řečeno, striatum bylo vypreparováno a zváženo (levá strana), umístěno do plastových zkumavek, homogenizováno sonikací po dobu 10 s v 0,4 M kyselině chloristé a centrifugováno při 15, 000 otáčkách za minutu po dobu 20 minut při 4 stupních. Supernatanty byly filtrovány přes 0,0{11}}μm millipore filtr. Mobilní fáze sestávající ze 100 mM NaH2P04, 50 mM kyseliny citrónové, 6 procent methanolu, 1,7 mM kyseliny 1-oktansulfonové, 50 uM EDTA, 10 procent acetonitrilu byla dodávána rychlostí 0,6 ml/min při 25 stupňů ke koloně s reverzní fází. Alikvoty 20 ul roztoku supernatantu byly injikovány pomocí HPLC autosampleru s chladicím modulem nastaveným na 4 stupně. Data byla kalibrována externím standardem. Hladiny dopaminu a jeho metabolitů byly vypočteny a vyjádřeny jako ng/mg hmotnosti vlhké tkáně.
4.9. PCR v reálném čase
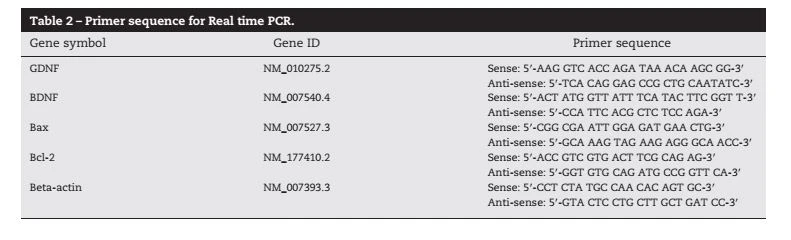
Celková RNA byla izolována homogenizací zmrazené tkáně ventrálního středního mozku (levá strana) v 1 ml činidla Trizol (Invitrogen, USA) s následnou precipitací isopropanolem (n= 5). Pelety byly promyty 70% ethanolem a suspendovány ve vodě bez RNázy a koncentrace RNA byla stanovena pomocí GeneQuant RNA/DNA kalkulátoru (Amersham Biosciences, NJ). RNA (1 ug) byla vzata jako templát a celková syntéza cDNA byla provedena za použití PrimeScriptTM RT reagent Kit (Takara, Japonsko). Amplifikace SYBR Green PCR byla provedena v zařízení Realplex4 S Real-time PCR (Eppendorf, Německo; Premix Ex TaqTM, Takara). Jako endogenní kontrola byl -aktin značen reportérovým barvivem. Podmínky termocyklického profilu byly následující: 95 stupňů 3 minuty počáteční denaturace, poté 40 cyklů 95 stupňů 15 s denaturace, 61 stupňů 15 s žíhání, s konečným prodloužením 72 stupňů 45 s. Relativní násobky změn byly stanoveny metodou 2− ΔACt, jak bylo popsáno dříve (Livak a Schmittgen, 2001). Sekvence primerů byly následující v tabulce 2. Všechny primery byly navrženy podle relevantní literatury a syntetizovány společností Genemed Company.
4.10. Western blot
Pro analýzu Western blot byly izolované tkáně ze striata (pro test DAT a -aktin) nebo ventrálního středního mozku (pro test GDNF, BDNF, Bax, Bcl-2 a -aktin) homogenizovány v pufru RIPA (5{{9} } mM Tris pH 7,4, 150 mM NaCl, 1 procento NP–40, 0,5 procenta deoxycholátu sodného, 0,1 procenta SDS a orthovanadičnanu sodného, fluoridu sodného, EDTA, leupeptinu) a odstředěno při 13, 000 otáčky za minutu při 4 stupních po dobu 5 min. Celkový obsah proteinu v supernatantu byl stanoven pomocí soupravy BCA Protein Assay Kit se spektrofotometrem a naředěn na vhodnou konečnou koncentraci homogenizačním pufrem a roztokem pro solubilizaci proteinu. Vzorek se vařil 3 minuty a 20 ul (obsahujícího 30 ug proteinu) každého vzorku se naneslo na SDS polyakrylamidový (10 procent) gel pro elektroforézu. Gel probíhal při 80 V po dobu 2 hodin, poté byl elektroforeticky přenesen na nitrocelulózovou membránu v přenosovém pufru pomocí Trans-Blot SD (Bio-Rad) při 20 V po dobu 1,5 hodiny, poté byl blokován ponořením do TBST obsahujícího 1 procento BSA po dobu 4 hodin při teplotě místnosti a inkubovány při 4 stupních přes noc s příslušnými primárními protilátkami: králičí anti-DAT (1:200, Chemicon International Inc, USA), myší anti-GDNF, BDNF (1:200, Santa Cruz Biotechnology, USA), myší anti- Bax, Bcl-2, -actin (1:1000, Santa Cruz). Po trojím propláchnutí v TBST po dobu 10 minut byly bloty inkubovány po dobu 2 hodin při teplotě místnosti s konjugovanou anti-králičí IgG-peroxidázou (1:2000, Santa Cruz). Imunoreaktivita byla vizualizována fluorescenčním detekčním systémem ECL (GE, USA). Bloty byly skenovány pomocí KODAK In-Vivo Multispectral Imaging Systems FX (Carestream Health, USA) po dobu 5 minut expozice a snímky byly automaticky získány pomocí CCD. Intenzita proteinových pásů byla měřena denzitometrií a vyjádřena jako poměr k intenzitě -aktinu, aby se zajistilo, že změny v hladinách proteinů nebyly jednoduše způsobeny rozdíly v množství naložení vzorku (Matsunaga et al., 2006).
4.11. Statistické analýzy
Všechna data byla uvedena jako průměr ± SEM. Pro statistické účely byla provedena jednocestná ANOVA následovaná post-hoc analýzou Tukeyho HSD a Student–Newman–Keulsova vícenásobného srovnávacího testu. Hodnota p< 0.05="" was="" considered="" statistically="">
Poděkování
Tato práce byla podpořena Vědeckotechnickým podpůrným programem, čínským ministerstvem vědy a technologie (č. 2006BAI04A11-3) a sponzorstvím vedoucích lékařů ze strany městské samosprávy Šanghaje (č. 2007- 057). Děkujeme profesoru Fang Huangovi a profesorovi Danianovi Zhuovi za jejich vedení k experimentům a rukopisu.
EchinakosidvCistanchemáNeurotrofníaneurozáchranaúčinky naParkinsonovichoroba
Od: ' Neurotrofické a neurozáchranné účinkyEchinakosidv modelu subakutní myši MPTPParkinsonovichoroba' odQing Zhao a kol
---BRAIN RESEARCH 1346(2010)224-236


