

Osteopontin mléka pro vývoj střev, imunity a mozku u předčasně narozených prasat
Jun 14, 2022
Pro více informací prosím kontaktujtedavid.wan@wecistanche.com
Abstraktní
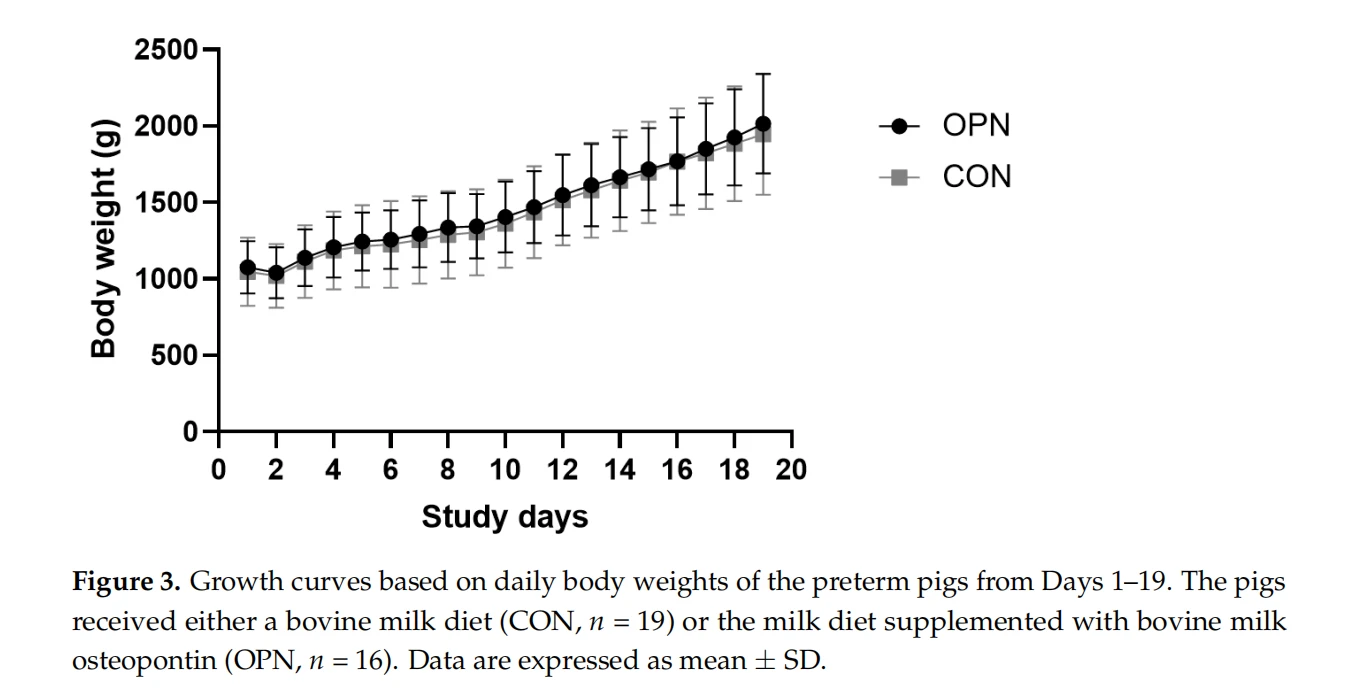
Nedostatečná hladina mléčného osteopontinu (OPN) v kojenecké výživě může částečně odpovídat za vývojové rozdíly mezi kojenci krmenými umělou výživou nebo mateřským mlékem. Podporujeme mléčnou dietu doplněnou o hovězí mlékoOPNzlepšuje vývoj střev, imunity a mozku a testováno na modelu předčasně narozených prasat. Předčasně narozená prasata narozená císařským řezem (90% březost) byla krmena syrovým hovězím mlékem (CON, n{1}}) nebo stejnou stravou doplněnou fyziologicky relevantní dávkou OPN (46 mg/(kg:d), n{ {3}}). Během studie byly hodnoceny koncové body související s klinickými výsledky, systémovou imunitou a neurokognitivním vývojem a 19. den byly odebrány střevní tkáně. Vzorec růstu, časný motorický vývoj a většina systémových imunitních parametrů byly podobné mezi OPN aOŠIDITprasata. Prasata OPN měla vyšší poměry klků ke kryptám než prasata CON a vyšší počet monocytů a lymfocytů v den 8. Střevní trávicí a absorpční funkce a kognitivní výkon (T-labyrint test) byly u OPN a CON prasat podobné. Na závěr doplnění stravy sOPNnad bazálními hladinami hovězího mléka vyvolalo menší zlepšení struktury střeva a systémové imunity bez jakýchkoli účinků na kognitivní výkon. Zbývá určit minimální hladiny OPN v kojenecké výživě pro zajištění optimální adaptace v bezprostředním novorozeneckém období.
Klíčová slova: osteopontin; bioaktivní mléčný protein; předčasně narození novorozenci; zdraví střev; systémová imunita; vývoj mozku; poznání

Kliknutím sem se dozvíte více o Cistanche
1. Úvod
Optimalizace hladin bioaktivních bílkovin v kojenecké výživě může pomoci snížit zavedené rozdíly ve vývoji a odolnosti vůči chorobám mezi kojenci krmenými výživou a mateřským mlékem[1-3]. Osteopontin (OPN) je kyselý protein s vysokou glykosylací a fosforylací, který je považován za důležitý pro stimulaci vývoje v bezprostředním novorozeneckém období a je hojně přítomen v raném mateřském mléce[4-6]. Koncentrace OPN v mléce se výrazně liší mezi druhy a v lidském mléce jsou dokonce rozdíly mezi jednotlivými matkami vysoké. Pokles během období laktace se zdá být konzistentním pozorováním [5,7]. V multicentrické studii byl medián hladiny OPN 160 mg/l přibližně 13 týdnů po porodu [7]. Nejvyšší 25procentní hladina OPN v lidském mléce byla 230-495 mg/l, což je mnohem více než průměrné hladiny uváděné pro hovězí mléko (~18 mg/l) nebo kojeneckou výživu (~9 mg/l)[ 4]. V současné době je hovězí mléko OPN komerčně dostupné a lze jej tedy přidávat do kojenecké výživy k dosažení hladin podobných hladinám v lidském mléce.
Vzhledem k vysoce konzervovanému místu pro vazbu integrinu arginin-glycin-aspartát (RDG) v OPN lze očekávat, že biologické účinky budou u různých druhů podobné [8]. Fragment obsahující sekvenci RDG je vysoce odolný vůči rozpadu v důsledku glykosylací v blízkosti motivu vázajícího integrin [9], čímž podporuje bioaktivní potenciál nativního mléčného OPN ve střevě. In vitro je mléčný OPN schopen stimulovat proliferaci střevních buněk a vyvíjet antibakteriální aktivity jako součást komplexu s laktoferinem (LF), dalším důležitým bioaktivním mléčným proteinem [10,11]. Příznivé účinky mléčného OPN ve střevě byly také prokázány in vivo. Střevní vývoj u novorozených opic makak rhesus byl zlepšen bovinním mlékem OPN a transkriptom jejuna u zvířat krmených umělou výživou s přídavkem OPN byl podobný jako u kojených protějšků [12]. Dietní mlékoEfekty OPN, jak lokálně ve střevě, tak i systémově po menší střevní absorpci u kojenců, byly částečně připisovány jeho schopnosti stimulovat endogenní hladiny OPN [5,13,14]. OPN se nachází ve většině tělesných tkání a tekutin, kde kromě účasti na buněčné proliferaci, migraci, adhezi a opsonizaci vykonává řadu funkcí, jako je biomineralizace a imunitní modulace [8,10,15,16]. OPN je známo, že reguluje rovnováhu Th1/Th2, která je u novorozenců vychýlena směrem k polarizaci Th2 [17]. OPN má vlastnosti podobné cytokinům a může stimulovat imunitu typu Th1 indukcí exprese IL-12 a inhibicí produkce IL-10, Th2cytokinu, v makrofázích [18]. Kromě toho může OPN podporovat zrání mozku a potenciálně přispívat ke zlepšení kognitivních funkcí u kojených dětí oproti kojencům s umělou výživou [19-21]. Na podporu toho vykazovala myší mláďata krmená OPN lepší schopnost učení a vyšší hladiny exprese proteinů souvisejících s myelinizací, včetně myelinového bazického proteinu a glykoproteinu asociovaného s myelinem, a OPN také zesiloval myelinizaci in vitro [14,22,23]. U donošených prasat bylo několik oblastí mozku ovlivněno zvýšeným relativním objemem po suplementaci stravy s hovězím mlékem OPN, ale nebyly pozorovány žádné účinky na kognitivní parametry [24].
Předčasně narozené děti (narození<37 weeks="" of="" gestation)="" are="" particularly="" diet-sensitive="" due="" to="" their="" relatively="" immature="" gut,="" immune="" system,="" and="" brain.="" such="" infants="" are="" susceptible="" to="" developing="" both="" short-and="" long-term="" complications="" such="" as="" necrotizing="" enterocolitis="" (nec),="" feeding="" intolerance,="" infections,="" and="" impaired="" neurodevelopment="" [25-28].="" bovine="" milk="" opn="" supplementation="" has="" previously="" been="" shown="" to="" reduce="" nec="" severity="" in="" formula-fed="" preterm="" piglets="" [29],="" and="" other="" milk="" factors="" have="" proven="" to="" support="" brain="" structure="" and="" cognitive="" development,="" particularly="" in="" preterm="" newborns="" [30,31].="" on="" this="" background,="" we="" hypothesized="" that="" preterm="" newborns,="" fed="" a="" standard="" milk="" diet="" with="" relatively="" natural="" bioactivity,="" would="" benefit="" from="" further="" opn="" supplementation.="" following="" an="" initial="" in="" vitro="" demonstration="" of="" opn="" antimicrobial="" activity,="" we="" used="" diet-sensitive="" preterm="" pigs="" [32-34]to="" investigate="" if="" an="" opn-enriched="" bovine="" milk="" diet="" would="" improve="" gut,="" immunity,="" and="" brain="" development="" in="" the="" first="" three="" weeks="" after="" preterm="">
2. Materiály a metody 2.1. Antibakteriální test in vitro
Nejprve byl k posouzení biologické aktivity použit antibakteriální test [35]OPNkvantifikací jeho schopnosti inhibovat růst nebo zabíjet stafylokoka, tj. běžného neonatálního grampozitivního patogenu [36]. Stejné neporušené nepasterizované hovězí mléko, které bylo použito jako základ pro enterální dietu ve studii prasat, bylo postupně rozmraženo a odstřeďováno při 500 x g a 3 000 x 8,4 stupních po dobu 15 minut, přičemž se pokaždé odsála vodná vrstva, aby se odstranil obsah tuku. minimalizace ztráty mléčných bílkovin [37]. Po testování sterility odstředěného hovězího mléka,OPNprášek (Lacprodan⑧ OPN-10, Arla Foods Ingredients, Viby, Dánsko) byl rozpuštěn v koncentracích 1,6 (stejné jako množství přidané v den 1 ve studii prasat do mléka OPN), 2,8, 5, 10 a 20 g /L, čímž bylo vytvořeno 6 testovacích diet, včetně nedoplňovaného odstředěného hovězího mléka, které byly až do analýzy skladovány v alikvotech po 1 ml při -80 stupni. Zmrazené střední logaritmické kultury [35] S.epidermidis (WT1457 [38], laskavě poskytnuté Dr. Xiaoyang Wang, University of Gothenburg, Švédsko) byly rozmraženy, centrifugovány při 3200×g a resuspendovány ve sterilním fyziologickém roztoku před inkubací s 6 testovacích diet (kromě komerčně dostupné mléčné výživy pro předčasně narozené děti, zahrnuté jako negativní kontrola [1]) ve vypočítané dávce 10 stupňů a 106 CFU/ml po dobu 2, 4, 6 a 24 hodin při 37 stupních. Byly stanoveny konečné inokulační dávky a růst bakterií v testovaných dietách a kojenecké výživě po různých inkubačních dobách [35]. Byly provedeny nezávislé triplikáty antibakteriálního testu.
2.2. Zvířata a experimentální design
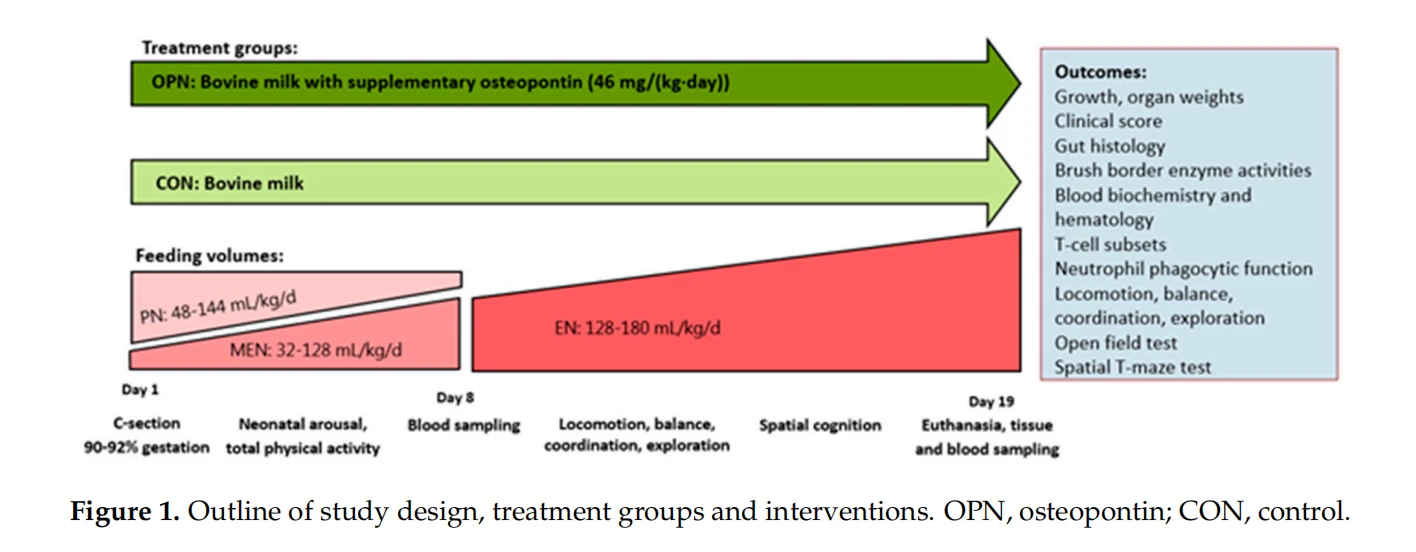
Všechny postupy na zvířatech byly schváleny a prováděny na základě licence (číslo licence 2014-15-0201-00418) vydané Dánským inspektorátem pokusů na zvířatech. 48 selat (dánský Landracex Yorkshire Duroc) od dvou komerčně chovaných prasnic bylo porodeno předčasně císařským řezem v přibližně 90% březosti (celý termín: 117 ± 2 dny). Po úspěšné resuscitaci a ještě v anestezii mateřskými anestetiky bylo chirurgické zavedení zavedeného umbilikálního arteriálního katétru pro usnadnění parenterální výživy (PN) a orogastrické sondy pro usnadnění enterální výživy (EV) provedeno, jak bylo popsáno dříve 32]. Šest selat byla utracena ihned po narození z důvodu neúspěšné resuscitace a následně byla ze studie vyloučena. Celkem bylo 42 selat stratifikováno podle pohlaví a porodní hmotnosti a rozděleno do jedné ze dvou skupin: jedna skupina dostávala syrové hovězí mléko doplněné OPN(OPN, n=21) a kontrolní skupina dostávala nesuplementované syrové hovězí mléko(OŠIDIT, n=21)(obrázek 1). Mateřská plazma byla infundována ve 3 bolusech (celkem 25 ml/kg) přes pupeční katetr během prvních 24 hodin, aby byla zajištěna pasivní imunizace. Prasata byla chována individuálně po celou dobu studie 19 dnů. Od 1-5 dnů byli chováni ve ventilovaných vyhřívaných inkubátorech (plus okysličování během prvních 24 hodin) a 5. a 11. den byli přemístěni do větších klecí. Všichni kliničtí výzkumníci byli zaslepeni k dietnímu ošetření během experimentálního období.
2.3. Výživa a krmení
Enterální strava podávaná všem prasatům byla založena na nepasterizovaném neporušeném hovězím mléce odebraném ve dvou dávkách z místní farmy pro krávy v Jersey a skladovaném při -20 stupni. Hovězí mléko bylo obohaceno o minerály a vitamíny (15 g/l Pediatric Seravit, Nutricia, Utrecht, Nizozemsko) a elektrolyty (6 g/l Revolyte Nutrition, Gunnar Kjems ApS, Kodaň, Dánsko). Tento mléčný základ sloužil jako kompletní enterální strava pro selata ve skupině CON. U prasat ve skupině OPN byla základna hovězího mléka dále doplněna hovězím mlékem OPN (Lacprodan⑧ OPN-10) se středním přídavkemOPNkoncentraci 319 mg/l(IQR 272-445), aby se získala denní fixní přídavná dávka OPN 46 mg/(kg·den). Koncentrace je v rozmezí OPN u lidského mléka [4]. Koncentrace OPN v odebraném hovězím mléce byla 91 mg/l, měřeno kapalinovou chromatografií-tandemovou hmotnostní spektrometrií (LC-MS/MS, Alphalyse A/S, Odense, Dánsko). Doplňková dávka OPN byla vybrána tak, aby byla v horní hranici rozmezí lidského mléka, aby se zajistil rozumný rozdíl od kontrolní diety s kravským mlékem. Denní přípravky enterální stravy byly vyrobeny a skladovány při 4 stupních až do použití (<24 h).="" pigs="" received="" gradually="" increasing="" volumes="" of="" en="" from="" 32="" ml/(kg.="" day)="" on="" day="" 1="" to="" 180ml/(kg:="" day)on="" day="" 15="" and="" until="" euthanasia.="" the="" enteral="" diets="" were="" given="" as="" boluses.="" during="" the="" daytime,="" the="" boluses="" were="" given="" every="" second="" hour,="" and="" during="" the="" night="" every="" third="" hour="" until="" day="" 9.="" thereafter,="" the="" feeding="" frequency="" was="" reduced="" to="" every="" third="" hour,="" day="" and="" night.="" the="" en="" was="" given="" through="" the="" orogastric="" feeding="" tube="" until="" day="" 5="" when="" pigs="" were="" taught="" to="" drink="" from="" troughs.="" the="" pn="" was="" given="" as="" a="" continuous="" infusion="" in="" decreasing="" amounts="" from="" days="" 1-8="" (144-148="" ml/(kg.="" day))to="" counterbalance="" the="" small="" enteral="" volumes="" the="" piglets="" can="" cope="" with.="" the="" pn="" solution="" was="" a="" commercially="" available="" human="" parenteral="" nutrition="" product="" (kabiven,="" fresenius="" kabi,="" uppsala,="" sweden)="" adjusted="" to="" the="" requirements="" of="" piglets="" as="" previously="" described="" [32].="" after="" removal="" of="" the="" orogastric="" feeding="" tube="" on="" day="" 11="" and="" onwards,="" all="" pigs="" had="" free="" access="" to="">

2.4. Klinické hodnocení a odběr tkání
Během období studie byla prasata pečlivě sledována (alespoň každé 3 hodiny) a klinická skóre byla přidělována dvakrát denně, jak bylo popsáno dříve [33]. Na základě klinické indikace byla zahájena příslušná léčba, např. podání intramuskulárních analgetik (meloxicam: Metacam, 5 mg/ml Boehringer Ingelheim, Ingelheim am Rhein, Německo nebo butorfanol: Torbugesic Vet, 10 mg/ml, Zoetis, Parsippany, NJ, USA). V případech nedostatečné odpovědi na léčbu byla prasata usmrcena. Tělesné hmotnosti byly měřeny každý den a průměrný přírůstek tělesné hmotnosti vyjádřený jako g/(kg.d) byl vypočítán podle vzorce: (hmotnost při eutanazii-hmotnost při narození)/(průměrná tělesná hmotnost × životnost). Dvakrát denně byly výkaly hodnoceny následovně: 1 (pevné výkaly), 2 (měkké/pastovité výkaly), 3 (krémové výkaly) a 4 (průjem). V případě průjmu byl mezi krmením podáván perorální roztok elektrolytu (Revolyte Nutrition), aby se zabránilo dehydrataci. Profylaktická perorální antibiotika (metronidazol: Flagyl, 40 mg/ml, Sanofi-Aventis, Paříž, Francie; amoxicilin, 500 mg, s kyselinou klavulanovou, 125 mg: Bioclavid, Sandoz GmbH, Kodaň, Dánsko; gentamicin: Gentocin Vet, 4,35 mg/ml , Scanvet, Fredensborg, Dánsko) byly podávány dvakrát denně od Dnů 8-10 po odstranění umbilikálního arteriálního katétru. Podle indikace byla terapeuticky podávána stejná kombinace perorálních antibiotik. V den 19, 60 minut před eutanazií, byl prasatům podán poslední standardizovaný bolus jejich příslušné stravy. Prasata byla anestetizována intramuskulární injekcí zolazepamu/tiletaminu (Zoletil 50,25 mg/ml zolazepamu a 25 mg/ml tiletaminu, Virbac, Carros, Francie), ketaminu (Ketaminol, 50 mg/ml, MSD Animal Health, Kenilworth, NJ , USA) a butorfanol (Torbugesic Vet) a poté byly usmrceny pentobarbitalem sodným (Euthanimal, 400 mg/ml, Scanvet) intrakardiální injekcí. Bezprostředně po eutanazii byly vypreparovány a zváženy vnitřní orgány, a to jak celé orgány, tak specifické oblasti orgánů (např. plný/prázdný žaludek, tenké střevo, tlusté střevo, celý mozek, oblasti mozku, játra, slezina, ledviny, plíce a srdce). Frakce mozkové vody byla odhadnuta vážením levé mozkové hemisféry před a po dehydrataci po dobu 14 dnů při 50 stupních. Každá z pěti gastrointestinálních oblastí (žaludek, proximální tenké střevo (Prox), střední tenké střevo (Mid), distální tenké střevo (Dist) a tlusté střevo byly hodnoceny makroskopicky a bylo jim přiřazeno skóre NEC [39]. Vzorky tkání z každé gastrointestinální oblasti byly odebrány a rychle zmraženy v kapalném dusíku nebo fixovány ve 4% formaldehydu a skladovány při -80 stupni až do dalších analýz. Návrh studie a výsledky jsou znázorněny na obrázku 1.
2.5. Struktura střevní sliznice a aktivity enzymů na hranicích kartáčků
Struktura sliznice v tenkém střevě byla hodnocena měřením výšky klků a hloubky krypt histologických řezů tkání Prox, Mid a Dist fixovaných v paraformaldehydu a barvených hematoxylinem a eosinem, jak bylo popsáno dříve [40]. Imunohistochemické barvení na Ki-67 replikátů řezů Prox, Mid a Dist bylo použito k hodnocení proliferace enterocytů ve sliznici tenkého střeva, jak bylo popsáno dříve [41]. Čtyři obrazy každého replikátu byly získány systematickým náhodným způsobem pomocí světelného mikroskopu (Ortho-plane, Leitz, Německo), připojeného ke kameře a čočce objektivu 10x. Analýza obrazu byla provedena pomocí Fiji: Image] (NIH Image, Bethesda, Maryland) a celková plocha Ki-67-pozitivně obarvených jader byla vypočtena jako zlomek celkové plochy jader. Aktivita 6 enzymů kartáčového lemu (maltáza, sacharáza, laktáza, aminopeptidáza N (ABN), aminopeptidáza A (APA) a dipeptidylpeptidáza IV (DPPIV)) byla stanovena v homogenátech středních tkání pomocí spektrofotometrie [42].
2.6. Biochemie krve, hematologie a systémová imunita
Vzorky krve pro biochemické a hematologické parametry byly analyzovány 1. den z pupečníku během císařského řezu, 8. den z průchodných umbilikálních arteriálních katétrů nebo alternativně z jugulární žíly a 19. den ze srdeční punkce během eutanazie. Plazma pro biochemii získaná heparinizovaným krevním vacutainerem (BDDiagnostics, Oxford, UK) následovaná centrifugací (2500 x g, 4 stupně po dobu 10 minut) byla analyzována za použití systému ADVIA 1800 Chemistry System (Siemens Healthcare GmbH, Erlangen, Německo). Plná krev pro hematologii a počty imunitních buněk získaná EDTA-potaženým krevním vakuátorem (BD Diagnostics) byla analyzována pomocí ADVIA 2120i Hematology System (Siemens Healthcare GmbH).
Testy související se systémovou imunitou ke studiu krevních podskupin T-buněk, funkce neutrofilní fagocytózy a imunitních kompetencí ex vivo stimulací krve Toll-like receptor (TLR) byly provedeny na vzorcích plné krve odebraných do heparinizovaného krevního vakuovače (BD Diagnostics) na dvou dny; 8. den z umbilikálních arteriálních katétrů nebo alternativně z jugulární žíly a 19. den z jugulární žíly. Charakterizace podskupiny T-buněk v krvi byla měřena, jak bylo popsáno dříve [43]. Stručně, erytrocyty byly lyžovány pomocí 1 X BD FACS Lysing solution (BD Biosciences, Franklin Lakes, NJ, USA) a leukocyty byly inkubovány s fixačním/permeabilizačním pufrem (Invitrogen, Carlsbad, Kalifornie) po dobu 30 minut při 4 stupních ve tmě. Po promytí permeabilizačním pufrem (Invitrogen) byly buňky blokovány vepřovým sérem (ThermoFisher Scientific, Waltham, MA, USA) po dobu 15 minut 4 stupně ve tmě a následně obarveny čtyřmi fluorescenčně značenými monoklonálními protilátkami; PE-Cy7-konjugovaná myší anti-prasečí CD3 protilátka (klon BB23-8E6-8C8, BD Biosciences), FITC-konjugovaná myší anti-prasečí CD4 protilátka (klon MIL17, Bio- Rad Laboratories, Hercules, Kalifornie), PE-konjugovaná myší anti-prasečí CD8 protilátka (klon MIL12, Bio-Rad Laboratories) a APC-konjugovaná potkaní anti-myší FOXP3 protilátka (klon JFK-16s, ThermoFisher Scientific). Vzorky byly analyzovány pomocí průtokového cytometru BD Accuri C6 (BDBiosciences) a populace T-buněk (CD3 plus lymfocyty), cytotoxických T-buněk (CD3 plus CD4-CD8 plus lymfocyty), pomocných T-buněk ( Byly identifikovány CD3 plus CD4 plus CD8-lymfocyty) a regulační T-buňky (CD3 plus CD4 plus FoxP3 plus lymfocyty). Fagocytární funkce krevních neutrofilů byla analyzována průtokovou cytometrií pomocí pHrodo Red Escherichia coli(560/585 nm)Sada pro fagocytózu biočástic pro průtokovou cytometrii (ThermoFisher Scientific)34]. Fagocytární rychlost byla indikována procentem neutrofilů projevujících fagocytózu v populaci neutrofilů (pHrodo plus) a fagocytární kapacita neutrofilů byla indikována střední fluorescenční intenzitou (MFI). K posouzení systémové zánětlivé odpovědi na ex vivo Gram- negativní bakteriální výzva, 294 μl plné krve bylo inkubováno s agonistou TLR4 (lipopolysacharid (LPS), E.coli O127:B8, Sigma Aldrich, St.Louis, MI, USA) po dobu 5 hodin při 37 stupních, 5 procent CO2. Stimulovaná a nestimulovaná krev byla poté centrifugována při 2000 x g, 4 stupně po dobu 10 minut a plazmatické supernatanty byly analyzovány na tumor nekrotizující faktor (TNF) a interleukin (IL)-10 pomocí ELISA (Porcine Specific Duoset Kits, R&D Systems, Abingdon, UK), podle pokynů výrobce. Vzorky plazmy byly před analýzou zředěny 2-2,5krát. Pro výpočet středních hladin a poměrů cytokinů byly zahrnuty pouze vzorky s hladinami absorbance cytokinů ve standardním rozmezí. Nicméně vzorky s hladinami absorbance cytokinů nižšími než nejnižší standard, ale vyššími než slepý pokus, dostaly libovolnou hodnotu poloviny nejnižší detekované hladiny na destičce a byly zahrnuty do statistické analýzy.
2.7. Raný motorický vývoj, chování a kognice
Doba do prvního postavení a první chůze po narození byla měřena jako odhad osvojení základních pohybových dovedností. Infračervené kamery citlivé na pohyb instalované nad každou domácí klecí nepřetržitě zaznamenávaly motorickou aktivitu prasat od 1. dne ve 21:00 odpoledne, kdy se prasata plně zotavila z mateřských anestetik, do 11. dne[33]. Průměrný podíl aktivního času během hodiny byl vypočítán ze záznamů 12-hodinových intervalů během dne (9:00 do 21:00 večer) a v noci (od 9:{12 {{ 20}minutová doba záznamu s prasaty v náhodném pořadí. Prasatům bylo přiděleno celkové skóre v reálném čase dvěma zaslepenými pozorovateli na základě čtyř objektivních parametrů: kontakt s podlahou, kontakt se stěnou, pokusy o útěk a počet kroků. Získaná videa byla následně analyzována pomocí EthoVision XT10 (Noldus Information Technology, Wageningen, Nizozemí). Výsledkem byla celková ujetá vzdálenost a vypočtená rychlost pro každé prase. Po přiměřeném vizuálním vývoji a období zvykání byla prostorová kognice každého prasete hodnocena v randomizovaném pořadí během dnů 12-18 pomocí standardizovaného kognitivního testu prostorového T-bludiště [44]. Učení a paměť závislé na hippocampu byly testovány během 1-2 akvizic denně, z nichž každá sestávala z 10 pokusů. Pro prasata byly použity vizuální podněty z extra-bludiště, aby našly pevnou odměnu za mléko. Střídavé výchozí pozice prasat byly použity, aby se zabránilo ego-centrickým mechanismům odezvy a mléko bylo umístěno do obou ramen odměny. Pro maskování čichových signálů bylo mléko dostupné pouze v jedné z paží. Počet správných voleb na akvizici byl zaznamenán během standardní fáze (Akvizice 1-6, dny 12-17) a fáze rušení (Akvizice 7-9, dny 17-18). V reverzní fázi byla odměna mléka změněna na opačné rameno. Jako kritérium učení bylo definováno minimálně 80 procent správných voleb (8 správných z 10 pokusů) [30].
2.8. Statistická analýza
Pro všechny statistické analýzy byl použit statistický software R (verze 3.6.0). Pro antibakteriální test byly rozdíly v růstu S. mezi 6 testovanými dietami a kojeneckou výživou během 2-24 h inkubace analyzovány pomocí lineárního modelu se smíšenými účinky (funkce Ime) s inokulační dávkou, časem a testovací dietou /vzorec jako fixní efekty (včetně interakce mezi posledními dvěma) a experimentální období jako náhodný efekt, po kterém následuje párová srovnání v každém časovém bodě (ls znamená balíček). Nepřetržitá opakovaná měření ze studie prasat (tj. tělesná hmotnost, aktivita v domácí kleci, správná volba v kognitivním testu prostorového T-bludiště a parametry tenkého střeva měřené v několika oblastech) byla analyzována pomocí lineárního modelu smíšených účinků (funkce me). včetně vhodné korelační struktury a prase jako náhodného efektu. Balíček usnadnil následná srovnání v každé oblasti tenkého střeva. Coxův proporcionální model rizika (funkce) byl použit pro nepřetržité údaje o čase do události (tj. získávání základních motorických dovedností a první výskyt průjmu). Všechna ostatní spojitá data byla analyzována pomocí vícenásobného lineárního regresního modelu (lm funkce). Holmova korekce byla aplikována na všechna data biochemie krve, aby se opravila vícenásobné srovnávací testování a kontrolovala chybovost v rodině. Diskrétní data od času do události (tj. procento prasat, která dosáhla kritéria učení v T-bludišti) byla analyzována pomocí zobecněného vícenásobného lineárního regresního modelu (funkce) s binomickou odezvou a komplementární log-log linkou. Pohlaví, vrh a porodní hmotnost byly před studií identifikovány jako biologicky relevantní potenciální zmatky, a proto byly zahrnuty jako fixní efekty ve všech výše zmíněných modelech. Navíc pro všechny biochemické a hematologické parametry krve byly základní hladiny naměřené v den 1 před randomizací skupiny zahrnuty jako fixní účinky v odpovídajících modelech vícenásobné lineární regrese. Ověření modelu lineárních regresních modelů bylo provedeno grafickým zobrazením normality a homoskedasticity reziduí a proložených hodnot a v případě potřeby byly provedeny transformace dat (log nebo sqrt), aby byly splněny tyto předpoklady. Pro proměnné, které nemohly odpovídat normálnímu rozdělení, byl aplikován neparametrický Mann-Whitney test. Regresní modely s kategorickými proměnnými odezvy byly validovány zkoumáním kumulovaných reziduí pomocí testu dobré shody (balíčku). Pokud není uvedeno jinak, nezpracovaná data jsou prezentována jako průměr ± SD a p-hodnoty<0.05 are="" considered="" statistically="">
3. Výsledky
3.1 Antibakteriální test in vitro
Byly hodnoceny účinky odstředěného hovězího mléka doplněného OPN v různých koncentracích na růst a životaschopnost S. a porovnány s kojeneckou výživou. Po 4, 6 a 24 hodinách inkubace s kojeneckou výživou se koncentrace S. zvýšila přibližně 10, 50 a 1×10 plus-násobně, v tomto pořadí, pro obě inokulační dávky (10) a 10 stupňů FU ). Nebyly žádné rozdíly mezi 6 testovanými dietami a výživou před 4 hodinami inkubace s inokulační dávkou 105 CFU (obrázek 2). Nicméně zjevný baktericidní účinek testovaných diet na bázi hovězího mléka byl zřejmý ve srovnání s kojeneckou výživou, protože koncentrace S. v nich zůstala statická během 1-4 h inkubace. Po 4 hodinách inkubace po stejné inokulační dávce byly počty bakterií nižší ve všech 6 testovaných dietách ve srovnání s umělou výživou (přibližně 10krát, p < 0,01).="" suplementace="" opn="" vykazovala="" na="" dávce="" závislé="" dlouhodobé="" bakteriostatické="" účinky="" proti="" s.,="" protože="" počty="" bakterií="" po="" 6="" hodinách="" inkubace="" byly="" významně="" nižší="" ve="" zkušebních="" dietách="" obsahujících="" 4="" nejvyšší="" dávky="" opn=""><0.05,10>očkovací dávka). Pouze nedoplněné odstředěné hovězí mléko ztratilo na okamžik svou schopnost zabránit růstu bakterií, když se inkubovalo po dobu 6 hodin (očkovací dávka 105 CFU). Po 24 hodinách inkubace byly počty bakterií nižší ve všech 6 testovaných dietách ve srovnání s umělou výživou (p<001, 105="" cfu="" inoculation="" dose).="" all="" 6="" test="" diets="" exerted="" bacterial="" inhibitory="" effects="" (initially="" bactericidal)="" against="" s.,="" inoculated="" at="" 10°cfu,="" at="" all="" tested="" time=""><2 h="" of="" incubation=""><0.07,>2 h inkubace Str<>
3.2. Klinické výsledky a výsledky růstu
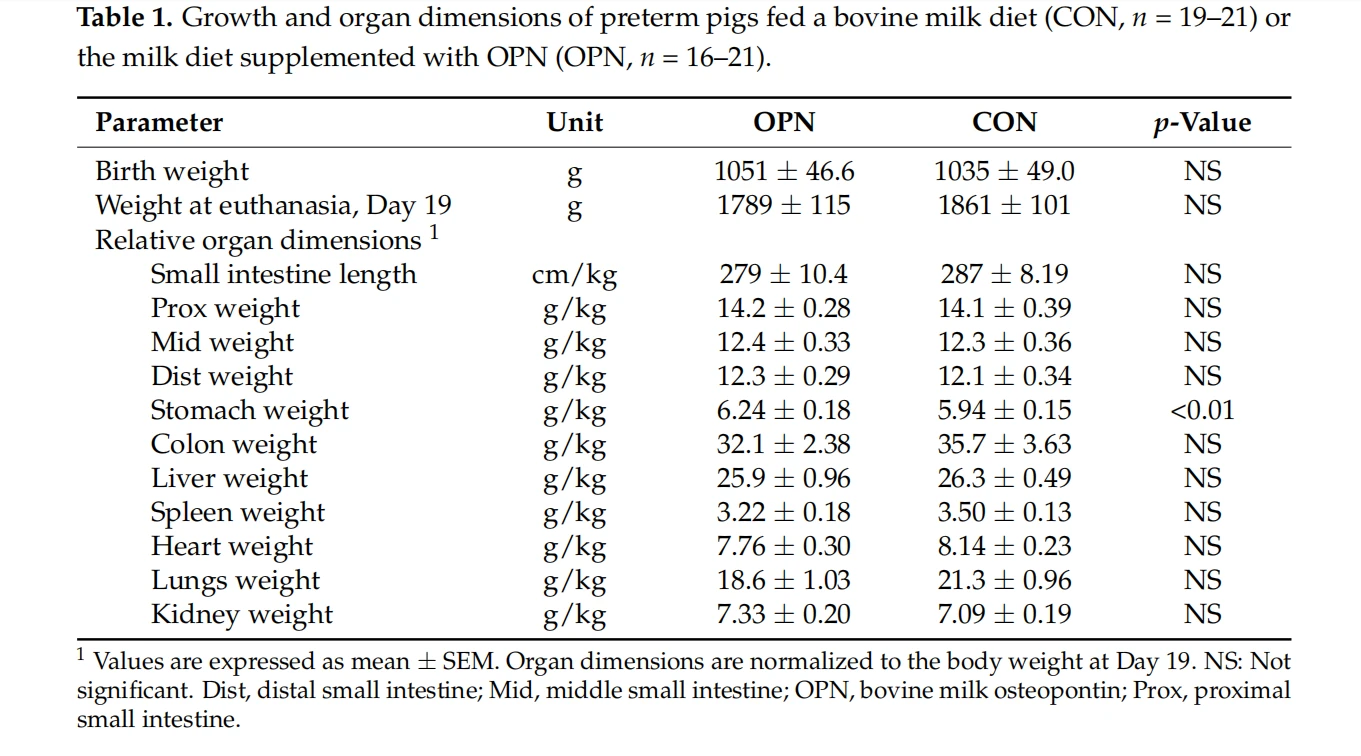
Sedm prasat (5/21 OPN ve srovnání s 2/21 CON, p=0.4) ze 42 prasat bylo utraceno/uhynulo v důsledku nezralosti/iatrogenních komplikací na začátku experimentu(
3.3. Struktura a funkce střev
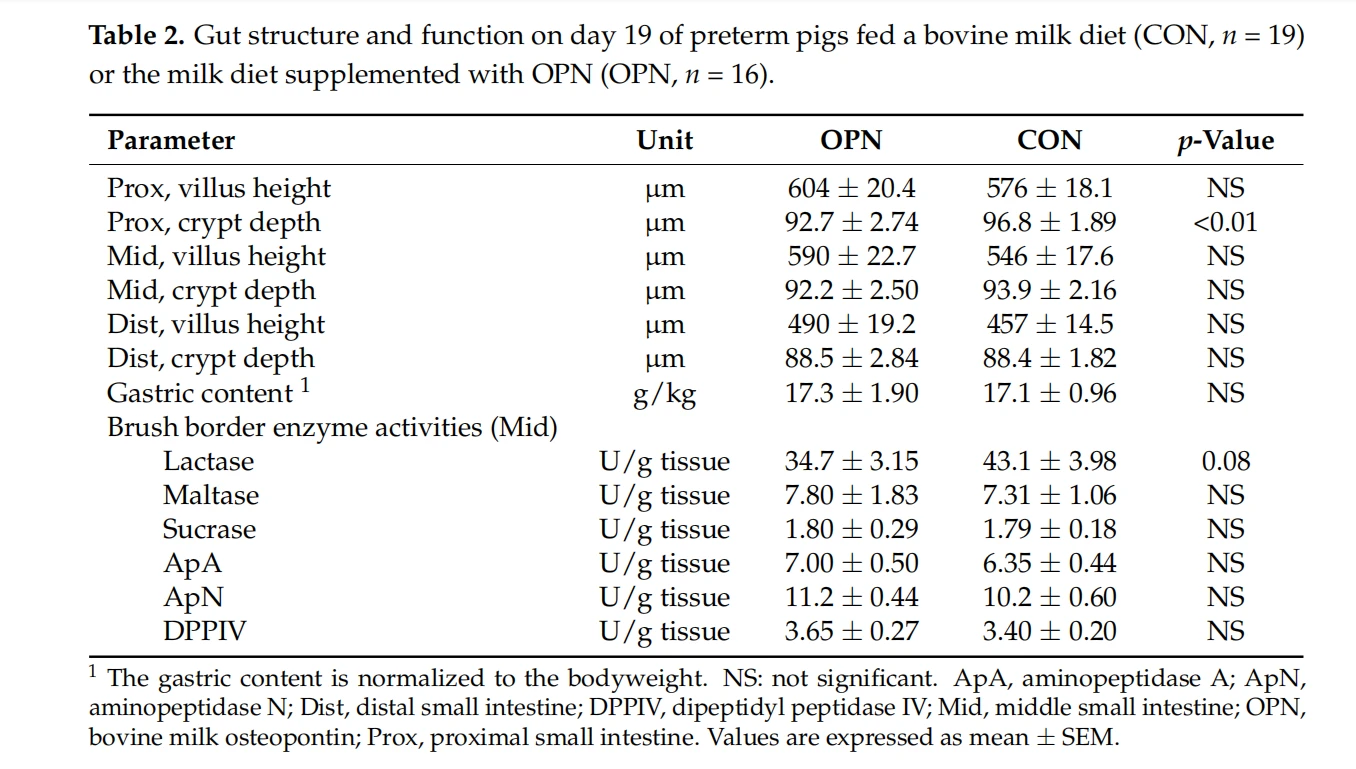
Výška klků a hloubka krypt, hodnocené v proximální, střední a distální části tenkého střeva, byly u obou skupin podobné (tabulka 2). Ve srovnání s CON byl v OPN naměřen celkově vyšší poměr klků ke kryptám ve třech oblastech tenkého střeva (p<0.05, figure="" 4a).="" similar="" amounts="" of="" proliferative="" enterocytes="" were="" observed="" between="" the="" two="" groups,="" indicated="" by="" the="" same="" relative="" area="" of="" ki-67="" positive="" stained="" nuclei="" in="" the="" three="" small="" intestinal="" regions="" (figure="" 4b,="" c).="" further,="" the="" gastric="" emptying="" ability="" indicated="" by="" the="" gastric="" content="" weights="" at="" euthanasia="" as="" well="" as="" the="" activity="" of="" lactase,="" maltase,="" sucrase,="" apa,="" abn,="" and="" dppiv="" measured="" in="" the="" middle="" part="" of="" the="" small="" intestine="" were="" comparable="" between="" the="" groups="" (table="">
3.4. Biochemie krve, hematologie a systémová imunita
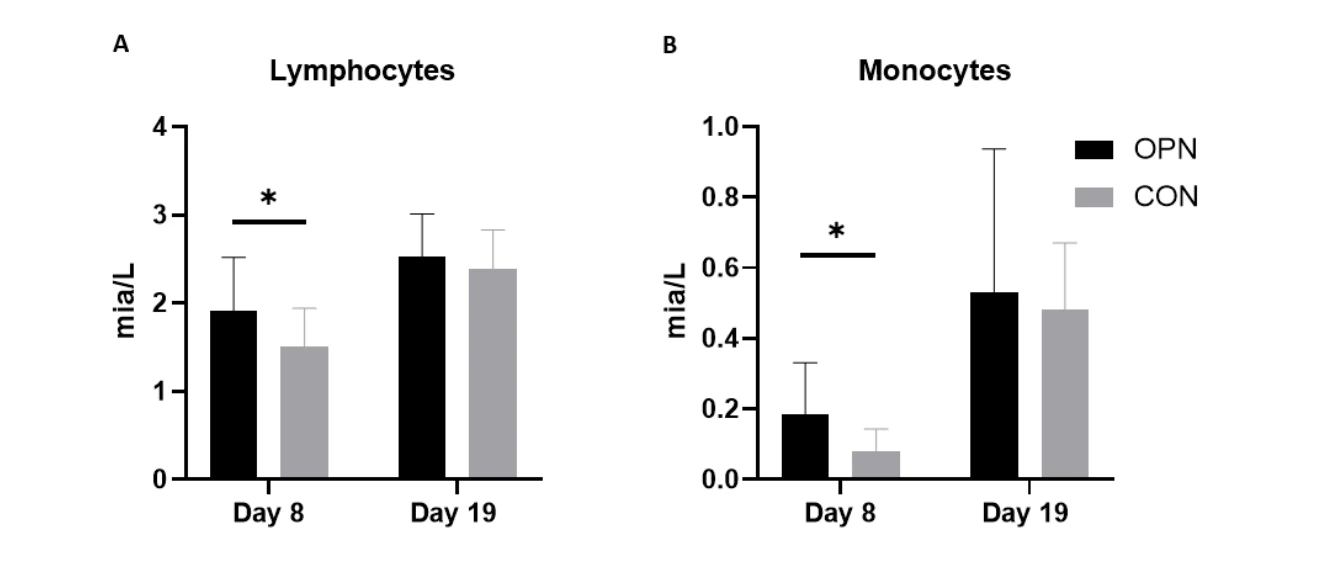
Vzorky pupečníkové krve odhalily vyšší celkový počet leukocytů a bazofilů v den 1 (str<0.05)of pigs="" later="" assigned="" the="" opngroup="" relative="" to="" pigs="" assigned="" the="" con="" group.="" no="" other="" immune="" cell="" counts,="" blood="" biochemistry,="" or="" hematology="" variables="" differed="" between="" the="" two="" groups="" prior="" to="" receiving="" their="" specific="" dietary="" interventions(data="" not="" shown).="" blood="" biochemistry="" variables="" measured="" on="" days="" 8="" and="" 19="" did="" not="" differ="" between="" groups(table="" s1,="" supplementary="" materials),="" and="" accompanied="" hematology="" parameters="" and="" immune="" cell="" counts="" are="" presented="" in="" table="" 3.="" compared="" with="" con="" pigs,="" opn="" pigs="" had="" a="" higher="" lymphocyte="" and="" monocyte="" count="" on="" day=""><0.05, figure="" 5a,="" b).="" the="" lymphocyte="" and="" monocyte="" count="" increased="" from="" day="" 8="" to="" day="" 19,="" with="" no="" final="" differences="" between="" the="" groups(figure="" 5a,="" b).="" the="" remaining="" immune="" cell="" counts="" and="" nonimmune-related="" hematological="" parameters="" were="" similar="" between="" opn="" and="" con="" pigs="" (table="" 3).="" innate="" and="" adaptive="" immune="" parameters="" were="" evaluated="" on="" days8="" and="" 19.="" on="" day="" 8,="" the="" blood="" neutrophil="" phagocytic="" rate="" and="" capacity="" were="" similar="" between="" opn="" and="" con="" (table="" 3).="" conversely,="" on="" day="" 19="" they="" had="" a="" higher="" frequency="" of="" neutrophils="" exerting="" phagocytosis="" compared="" with=""><0.05). the="" phagocytic="" capacity="" was="" though="" not="" different="" between="" groups="" (figure="" 5c,="" d).="" the="" t-cell="" subset="" characterization="" on="" days="" 8="" and="" 19="" did="" not="" reveal="" any="" differences="" between="" t="" helper="" cells,="" cytotoxic="" t="" cells,="" and="" regulatory="" t="" cells="" in="" the="" two="" groups="" (table="" 3).="" a="" representative="" facs="" gating="" is="" shown="" in="" figure="" s1,="" supplementary="" materials.="" the="" tlr4-mediated="" il10="" and="" tnf-α="" cytokine="" production="" of="" full="" blood="" from="" days="" 8="" and="" 19="" was="" evaluated.="" tnf-α="" and="" il10="" were="" detected="" at="" similar="" levels="" between="" opn="" and="" con="" in="" unstimulated="" plasma="" obtained="" on="" day="" 8="" and="" there="" were="" no="" group="" differences="" in="" the="" response="" to="" lps="" stimulation="" indicated="" by="" a="" similar="" tnf-α/il10="" ratio(table="" s2,="" supplementary="" materials).="" tnf-α="" was="" not="" detectable="" in="" unstimulated="" plasma="" obtained="" on="" day="" 19="" from="" either="" group.="" however,="" both="" groups="" responded="" equally="" to="" lps="" stimulation,="" indicated="" by="" similar="" tnf-α="" and="" il-10="" plasma="" levels="" (table="" s2,="" supplementary="">
3.5. Strukturální a funkční výsledek mozku
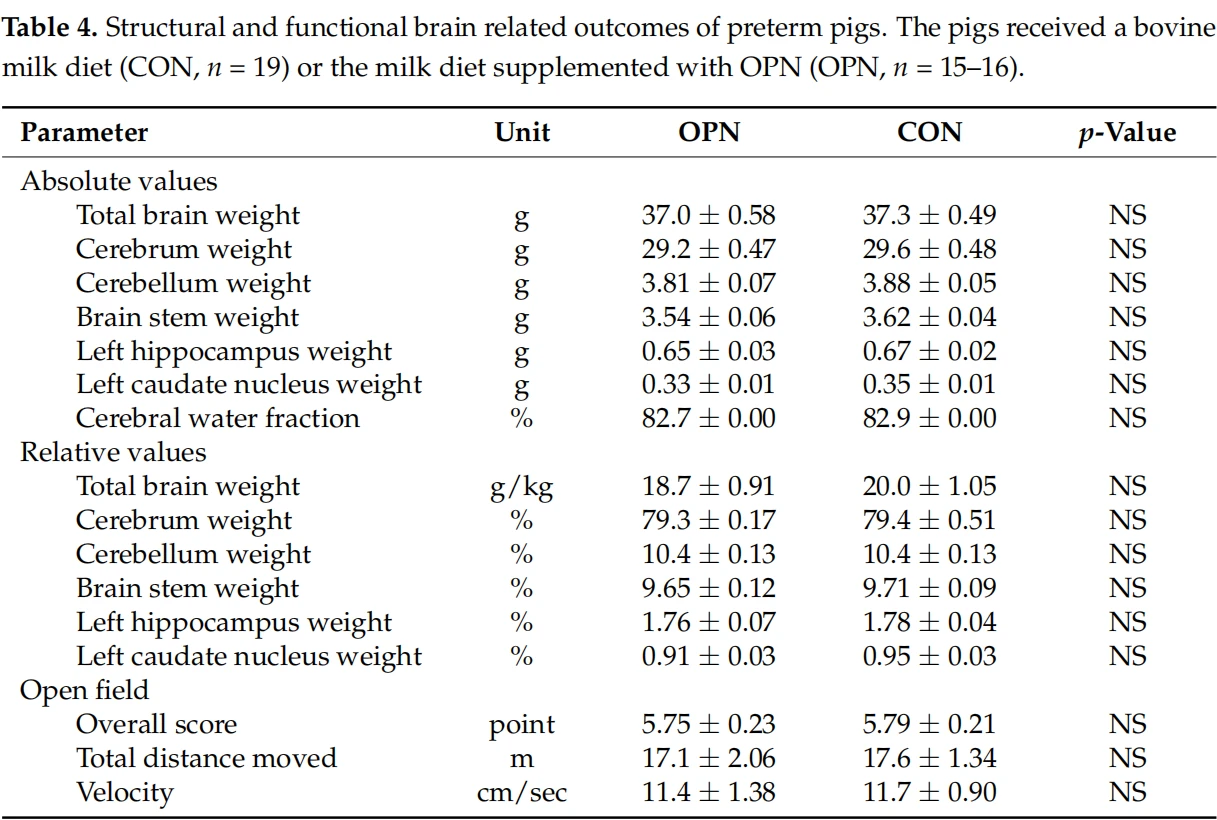
Strukturální výsledky související s mozkem, včetně absolutních a relativních hodnot celkové hmotnosti mozku, regionálních hmotností mozku a obsahu mozkové vody, byly podobné mezi skupinami OPN a CON (tabulka 4). Nebyly pozorovány žádné rozdíly v raném motorickém vývoji, protože čas do prvního postavení, první chůze a prvního dobrovolného příjmu plného mléčného bolusu, jakož i podíl aktivního času v domácích klecích byly měřeny kamerami citlivými na pohyb z Days { {3}}, byly podobné mezi OPN a CON (obrázek 6A-D). Průzkumné chování prasat hodnocené v aréně na otevřeném poli v den 9 bylo mezi oběma skupinami srovnatelné, protože celkové skóre, celková vzdálenost a rychlost byly podobné (tabulka 4). Dále byla podobná kognitivní výkonnost pozorována během standardní a reverzní fáze v kognitivním testu prostorového T-labyrintu provedeném během 9 akvizic od 12- do 18 dnů (obrázek 7A, B). Průměrný podíl správných voleb se v průběhu času u obou skupin v obou fázích zvýšil (obr. 7A). Ve standardní fázi dosáhly OPN i CON předem definovaného učebního kritéria v Akvizici 5 (80 procent správných voleb, obr. 7A). Všechna prasata dosáhla kritéria učení a nebyl žádný rozdíl v době potřebné k dosažení kritéria učení (obrázek 7B).

4. Diskuze
Multifunkční účinky OPN, zejména pokud jde o jeho proliferační, imunitní regulační a antibakteriální aktivitu, ale potenciálně také v podpoře vývoje mozku, mohou pomoci zlepšit zdraví a vývoj orgánů citlivých novorozenců a kojenců. Vysoké hladiny OPN v raném mateřském mléce a odpovídající plazmatické koncentrace OPN kojenců obhajují dostatečný přísun OPN v bezprostředním novorozeneckém období, kdy jsou kojenci krmeni lidským mlékem [5]. Naopak, nižší koncentrace OPN v hovězím mléce a kojenecké výživě 4 poskytuje příležitost ke zvýšení obsahu OPN v mléčné výživě a suplementace OPN může pomoci snížit vývojové rozdíly, které existují mezi umělým mlékem a mateřským mlékem. -krmené kojence [2,3]. V této studii jsme prokázali, že suplementace OPN ke stravě s hovězím mlékem s bazálním obsahem OPN byla dobře tolerována, ale byla pozorována pouze malá zlepšení ve struktuře střeva a systémové imunitě a nebyly pozorovány žádné další účinky na strukturu a funkci mozku. Základ z hovězího mléka byl vybrán tak, aby zajistil relevantní bioaktivní základní stravu ve srovnání s mléčnou recepturou, která má kromě nižšího obsahu OPN také sníženou bioaktivitu. Mléčný OPN je uznáván jako důležitý biologicky aktivní syrovátkový protein, především díky své schopnosti modulovat imunitu a stimulovat buněčnou proliferaci [18,45]. Schopnost OPN tvořit komplexy s kladně nabitým laktoferinem nacházejícím se v mléce může přidat další funkční vlastnosti přispívající k obraně proti patogenům ve střevech kojenců [10]. OPN-laktoferinový komplex se nachází v lidském a hovězím mléce, ale může být tvořen i z jednotlivých proteinů [10]. Abychom dokumentovali bioaktivní potenciál OPN ve stravě na bázi hovězího mléka, zpočátku jsme testovali in vitro antibakteriální schopnost OPN z hovězího mléka přidaného v různých koncentracích do sterilního odstředěného Jersey mléka. Naše výsledky ukazují, že mléčné diety doplněné OPN vykazují krátkodobou i dlouhodobou antibakteriální schopnost v závislosti na dávce tím, že inhibují růst S. epidermidis, běžného neonatálního patogenu způsobujícího pozdní sepsi po translokaci střeva [46,47 ]. To poskytuje příležitost stimulovat vývoj střev pomocí OPN suplementace novorozenecké mléčné stravy. Optimální dietní hladiny OPN v mléčných dietách jsou nejasné a variabilita obsahu OPN v mateřském mléce je velká, a to jak mezi matkami a zeměmi, tak i během období laktace [7. Předchozí studie na zvířatech převážně zkoumaly účinky přidání OPN do kontrolní stravy bez OPN v hladinách srovnatelných s průměrným obsahem lidského mléka [14,22,24]. V této preklinické studii na prasatech jsme se zaměřili na klinicky relevantní aspekt přidání většího množství OPN do stravy s bazální hladinou OPN pro dosažení vysokých hladin v lidském mléce. Suplementace OPN v této studii zvýšila denní dávku OPN na dávku představující příjem u kojenců od matek s relativně vysokou koncentrací OPN mléka a daleko nad rámec toho, co je normálně přijímáno z kojenecké výživy[4]. Ukázalo se, že obsah OPN ve shromážděném mléce z Jersey má vyšší obsah OPN, než byl dříve měřen v mléce skotu. Je důležité poznamenat, že použitá metoda LC-MS/MS se liší od metody ELISA použité v předchozích studiích [48]. Nedostatek kognitivních účinků v současné studii může spočívat ve skutečnosti, že kontrolní prasata již dostávají OPN v koncentracích 91 mg/l, které jsou přirozeně přítomné v mléce z Jersey, a další suplementace OPN nepřináší žádné další výhody. Zjistili jsme, že suplementace hovězího mléka s OPN byla dobře tolerována a měla menší účinky na dozrávání střev a imunitního systému, zatímco strukturální a funkční parametry mozku se nezměnily. Obě prasata OPN a CON vykazovala rychlost růstu srovnatelnou nebo vyšší, než jaká je normálně pozorována u předčasně narozených selat v podobných studiích s dietou s hovězím mlékem [49-51]. Rychlost růstu a relativně dobrý klinický stav s nízkým NEC skóre dosaženým u těchto předčasně narozených prasat poskytly optimální podmínky pro dokumentaci dietních účinků na změny orgánových funkcí a kognitivní vývoj mozku u citlivých novorozenců.
Mezi lidskými, kravskými a prasečími OPN sekvencemi je vysoká podobnost [52] a všudypřítomná povaha OPN je u prasat dobře zavedena. OPN je exprimován různými zdravými prasečími tkáněmi s největším výskytem v ileální tkáni [53], ale koncentrace vepřového mléka nejsou známy. Již dříve jsme prokázali menší prospěšné střevní účinky přípravku obohaceného o OPN u předčasně narozených selat ve vztahu k zotavení z prenatálního zánětu [43]. Společně to zdůrazňuje použití selete jako preklinického modelu pro zkoumání účinků doplňování stravy OPN. Ve srovnání s CON měla OPN prasata vyšší poměr klků ke kryptám v tenkém střevě. Podobný morfologický rozdíl byl hlášen na základě duodenálních vzorků od 10-denních myších mláďat kojených divokými matkami nebo OPN knock-out matkami doplněnými OPN z hovězího mléka ve srovnání s myšími mláďaty, která nedostávala žádný OPN[22]. Předchozí studie předčasně narozených prasat korelovaly zvýšené výšky klků se zvýšenou absorpční kapacitou živin, např. galaktózy [51,54], což může být rozhodující pro zajištění optimálního růstu. Pomocí prasečí buněčné linie IPEC-J2 jsme již dříve in vitro prokázali schopnost OPN zvyšovat buněčnou proliferaci v závislosti na dávce [43]. Zlepšená struktura hrubé střevní sliznice pozorovaná u OPN prasat v současné studii nemohla být vysvětlena zvýšením proliferativních enterocytů na základě Ki-67 barvení v tenkém střevě a nevedla ke změně aktivit trávicích enzymů. Dřívější nálezy u novorozených opic makak rhesus krmených umělou výživou s OPN ukázaly, že střevní změny s profily genové exprese jejuna jsou podobnější jako u kojených protějšků [12]. Stejná vývojová trajektorie týkající se počtu imunitních buněk byla pozorována u prasat OPN a CON. Počet všech imunitních buněk, kromě počtu bazofilů a eozinofilů, s podobně nízkými hladinami u donošených selat [34], vzrostl od 8. do 19. dne, což ukazuje na zvýšenou schopnost obou skupin vyvolat dostatečnou imunitní odpověď na potenciální patogen. Hladiny cirkulujících monocytů a lymfocytů u OPN prasat v den 8 byly vyšší ve srovnání s CON prasaty, ale ne v den 19. Protože klinický stav byl u prasat v obou skupinách podobný a skóre NEC nízké, hladiny monocytů a lymfocytů pravděpodobně souvisí hlavně s léčbou účinky a naznačují zrychlený imunitní vývoj u OPN prasat. Vyšší podíl cirkulujících monocytů byl také pozorován v randomizované kontrolované studii u šestiměsíčních kojenců, kterým byla podávána výživa s přidaným hovězím mlékem OPN v koncentracích 65 mg/l a 135 mg/l ve srovnání s kojenými kontrolami [55]. OPN je schopen interagovat s imunitními buňkami prostřednictvím svého receptoru a působit jako chemotaktické činidlo pro IL-1-aktivované monocyty, které mohou být fyziologicky relevantní během zánětu [16]. OPN může dále hrát roli ve vrozené imunitě zprostředkováním fagocytózy prostřednictvím integrinového receptoru, ox 2, exprimovaného na povrchu monocytů [16]. Zbývá prozkoumat další studie zkoumající roli OPN na funkci monocytů a jak se to promítá do přínosu pro kojence krmené umělou výživou.
Charakterizace podskupiny T-buněk byla provedena ve dnech 8 a 19, aby se dále popsala populace lymfocytů, ale neodhalila žádné rozdíly ve frakcích podskupin mezi těmito dvěma skupinami v tomto bezprostředním novorozeneckém období. Kojenci, kteří dostávali kojeneckou výživu doplněnou o OPN (65 nebo 130 mg/l), vykazovali zvýšený podíl T-buněk v prvních šesti měsících života ve srovnání s kojeneckou základní mlékou [55]. Tato odpověď se nemusí vyvinout již v prvních týdnech života nebo relativně vysoká hladina OPN v našem základním hovězím mléce (91 mg/l) může omezit další změny. Počet T-buněk, pomocných T-buněk a cytotoxických T-buněk se mezi OPN a CON nelišil, a proto nemůže vysvětlit rozdíly v cirkulujících lymfocytech mezi těmito dvěma skupinami v den 8. V této studii jsme barvili na CD3, CD4, CD8 a Foxp3 a zbývá prozkoumat, zda by vyšší počet lymfocytů mohl pocházet z vyššího počtu B-buněk nebo zvýšeného počtu přirozených zabíječských buněk. Zrání systémové imunity po narození zahrnuje posun v rovnováze Th1/Th2, kde obrana proti bakteriálním infekcím vyžaduje vychýlení Th1 [17]. OPN je silný chemoatraktant s vlastnostmi podobnými cytokinům a je známo, že reguluje rovnováhu Th1/Th2 [18]. V této studii nebyla rovnováha Th1/Th2 krátce po narození modulována stravou indikovanou podobným poměrem TNF-/IL10 v den 8. Protože hladiny TNF-o nebyly detekovány v nestimulovaných vzorcích plazmy od 19. dne, TNF-/IL10 poměr v tomto okamžiku nelze vypočítat. Nedávno studie na zvířecích modelech [14,22,24] zkoumaly roli mléčného OPN v neurovývoji během kojeneckého věku. Pomocí modelu knockout myší OPN bylo prokázáno, že mléko s hladinami OPN podobnými lidskému mléku zlepšuje vývoj motorických dovedností a paměťových schopností závislých na hipokampu u 30-denních myších mláďat ve srovnání s kontrolními skupinami s nedostatkem OPN. Tyto funkční mozkové výsledky dietního OPN souvisejícího s mlékem byly spojeny se zvýšenými hladinami endogenního mozkového OPN a vyšší proliferací a diferenciací nervových/gliálních antigenních dvou buněk na oligodendrocyty, což vedlo ke zvýšené expresi proteinů souvisejících s myelinem. V podobném experimentálním uspořádání vykazovala mláďata myší divokého typu kojená OPN knockout matkami a dostávající doplňkové hovězí mléko OPN(12 ug/g) větší paměťovou schopnost než nedoplňované kontroly [22]. Souhrnně tyto výsledky naznačují, že mléčný OPN hraje důležitou roli v neurokognitivním vývoji a že OPN u hovězího mléka může mít takové příznivé účinky napříč druhy. Zjistili jsme podobný vývoj v získávání základních motorických dovedností, aktivit v domácí kleci a explorativního chování na otevřeném poli mezi skupinami. Skupinové výkony v testu prostorového T-bludiště dále naznačovaly podobné učení a paměť, a tím i kognitivní schopnosti závislé na hippocampu. Naše zjištění jsou v souladu s nedávno provedenou studií, která srovnávala dvoudenní donovaná selata, která dostávala formuli dietu na bázi sójového proteinu bez OPN nebo doplněnou 250 mg/l OPN z hovězího mléka [24]. Mezi těmito dvěma skupinami, které byly hodnoceny během nového úkolu rozpoznávání objektů provedeného 30. den po narození, byly patrné pouze omezené rozdíly v chování. To znamená, že přinejmenším u zdravých, předčasně narozených prasat suplementace mlékem OPN dále nezlepšuje vývoj související s mozkem, jak bylo měřeno pomocí nové rozpoznávání objektů. Podobně jako u testu prostorového T-labyrintu [44] je nový úkol rozpoznávání objektů považován za závislý na hippocampu, a proto mohou být tyto behaviorální testy citlivější blíže k době maximální rychlosti růstu hipokampu, ke kterému dochází u samců a samic prasat. přibližně v 8. a 3. týdnu po porodu [56]. Není známo, zda dlouhodobé kognitivní zlepšení po suplementaci mléčného OPN v raném věku, jak bylo prokázáno ve studiích na myších modelech [14,22], mohlo být dokumentováno u prasat v pozdějších časových bodech.


Pokud jde o strukturální vývoj mozku, bylo již dříve pomocí zobrazování magnetickou rezonancí dokumentováno, že suplementace OPN ve stravě zvýšila počet regionálních objemů mozku po normalizaci na celkové objemy mozku [24]. V této studii jsme nezjistili žádné dietou vyvolané rozdíly v regionálních hmotnostech mozku, ani v absolutních hmotnostech, ani ve vztahu k celkovým hmotnostem mozku. Proto jsme neprováděli podrobnější analýzu, jako je měření hladin genové exprese proteinů příbuzných myelinu, např. myelinového bazického proteinu a glykoproteinu asociovaného s myelinem [14,23]. Již dříve bylo zdokumentováno, že exogenní OPN má neuroprotektivní vlastnosti tím, že zmírňuje intracerebrálním krvácením indukovaný neurozánět, což vede ke zlepšení neurologického skóre [57I. Oprávněný je další výzkum, aby se zjistilo, zda je OPN v mléce schopen udělit příznivé strukturální a funkční účinky mozku během systémových zánětlivých stavů, které často zažívají předčasně narozené děti [26]. To bylo mimo rozsah současné studie.
5. Závěry
Na modelu předčasně narozených prasat citlivých novorozenců jsme ukázali, že bioaktivní mléčná strava skotu doplněná o další OPN z hovězího mléka je dobře tolerována a indukuje menší zlepšení struktury střeva a systémové imunity bez dalších účinků na strukturální nebo funkční vývoj mozku. Suplementace OPN nad rámec toho, co je přijímáno z bazálního hovězího mléka, čímž se dosahuje úrovně na vysoké fyziologické úrovni toho, co kojenci přirozeně dostávají z lidského mléka, může mít proto omezené účinky na střeva, imunitu a vývoj mozku u citlivých novorozenců v bezprostředním novorozeneckém období. . Zbývá zjistit více informací o výhodách doplňování mléka OPN do kojenecké výživy na bázi hovězího mléka pro stimulaci vývoje ohrožených novorozenců.


