Mechanismus celkových glykosidů Cistanche Tubulosa ovlivňující proliferaci a apoptózu buněk HepG2: Zaměření na expresi proteinů souvisejících s Wnt/-cateninovou cestou
Aug 21, 2025
Abstraktní: Prozkoumat inhibiční účinekcelkové glykosidy Cistanche deserticola(TG) na buňkách HepG2 a jeho mechanismu. V tomto článku byly různé koncentrace (0, 3,5, 10,5, 21, 31,5, 42 ug/ml) TG ošetřeny po dobu 24 hodin na buňkách rakoviny jater HepG2 a životaschopnost buněk HepG2 byla detekována pomocí testu CCK8. K detekci apoptózy buněk HepG2 byla použita metoda dvojitého barvení Hoechst33342/PI a Annexin V-FITC/PI. Fenomén buněčné migrace byl detekován testem buněčné migrace. Mezitím byly průtokovou cytometrií detekovány změny progrese buněčného cyklu. A exprese -fetoproteinu (AFP), -kateninu, Disheveled (Dsh) a GSK-3 byla detekována westernovým přenosem. Výsledky ukázaly, že TG může snížit proliferaci buněk HepG2 způsobem závislým na koncentraci, s pouze 31,04% životaschopností buněk, když TG byl 42 ug/ml. Kromě toho by TG mohl poškodit buněčnou strukturu a indukovat buněčnou apoptózu a míra apoptózy by mohla být až 32,44 % při detekci AV/PI. Kromě toho by TG mohl také podporovat nekrózu buněk a omezovat migraci buněk. Mezi léčenou skupinou a kontrolní skupinou byly významné rozdíly. Mezitím by vysoká koncentrace TG mohla zastavit buňky HepG2 ve fázi G2/M. Nakonec, ve srovnání s kontrolní skupinou, relativní exprese -cateninu a Dsh klesla, zatímco GSK-3 vzrostla ve skupinách léčených TG. Závěrem lze říci, že TG by mohl inhibovat růst buněk HepG2 ovlivněním progrese buněčného cyklu, podporou apoptózy a omezením buněčné migrace. Mechanismus může být prostřednictvím signální dráhy Wnt/-catenin, která aktivuje GSK-3 k degradaci -cateninu k dosažení inhibice rakoviny jater.
Klíčová slova: Cistanche deserticola; celkové glykosidy; buňka HepG2; proti hepatomu; Wnt/ -Catenin signální dráha

Hlavní chemické složky Cistanche deserticola
Cistanche deserticola mapatří k léčivé a potravinově homologní látce a je vytrvalou bylinnou parazitickou rostlinou čeledi Orobaceae.Má účinky antioxidační, proti únavě, proti stárnutí, proti nádorům, ochraně jater, endokrinní regulaci, zlepšení schopnosti paměti a proti osteoporóze. Je známý jako „Pouštní ženšenPo potvrzení, že se deserticola deserticola v roce 2018 stala léčivou a potravinově homologní látkou, vzbudila velkou pozornost. Může nejen hrát klinickou aplikační hodnotu čínské bylinné medicíny, ale také ovlivnit nutriční intervenční účinek potravin.Ukazuje také velký potenciál ve vývoji nových přírodních přípravků proti rakovině jater [2-3]. Nutriční výzkum a funkční účinky deserticola deserticola potravin jsou stále hlubší [4].
V posledních letech se uvádí, že Cistanche deserticola působí protinádorově. Ye a kol. [5]zjistili, že echinacea extrahovaná ze soli Cistanche deserticola může inhibovat proliferaci buněk HepG2 snížením exprese TREM2 a blokováním signální dráhy PI3K/AKT; Někteří vědci zjistili, že fenylethanoidní glykosidy z Cistanche deserticola mohou inhibovat proliferaci buněk HepG2 [6]; Echinosid má určitý inhibiční účinek na proliferaci buněk rakoviny ledvin 786-O [7] a buněk rakoviny tlustého střeva SW480 [8]; V jiné studii bylo prokázáno, že fenylethanoidní glykosidy z Cistanche deserticola snižují poškození jater u myší s nádorem H22 a zlepšují imunitní funkce snížením hladin AFP, čímž nepříznivě ovlivňují růst nádoru [9]. Jak odvar z Cistanche deserticola [10], tak polysacharid [11] mohou procházet signální dráhou Wnt/- - - - -Catenin zlepšuje klinické příznaky Parkinsonovy krysy a hraje neuroprotektivní roli. Studie navíc zjistily, že echinacea může inhibovat Wnt tím, že signální dráha Wnt/ -Catenin hraje roli proti rakovině prsu [12]; Kromě toho může také snížit THP-1 buňky při lidské akutní leukémii - - - - -expresi proteinu katenin [13]. Signální dráze Wnt/ - Wnt/ -Catenin byla po celou dobu věnována značné pozornosti [14]. Uvádí se, že ji lze pozorovat u 20 % - 35 % případů HCC [15] – Aktivace kateninu. Přibývá důkazů, že signální dráha Wnt/ - -Catenin hraje důležitou roli ve výskytu a rozvoji rakoviny jater [16], ale zda celkové glykosidy Cistanche deserticola regulují Wnt/. Existuje několik zpráv o antihepatomovém účinku signální dráhy Cateninu. Celkové glykosidy extraktu z Cistanche deserticola, včetně fenylethanoidových glykosidů a dalších glykosidů [17], byly studovány v tomto experimentu studiem proliferace, apoptózy, migrace a souvisejících hladin proteinové exprese buněk HepG2 indukovaných celkovými glykosidy z Cistanche deserticola (TG), aby bylo možné prozkoumat mechanismus, mechanismus rakoviny jater, inhibovat TG a inhibovat potenciál rakoviny jater a inhibovat TG. určitý vědecký základ pro další obohacení klinické aplikace Cistanche deserticola v oblasti rakoviny jater.

Fenylethanolglykosid je hlavní aktivní složkou Cistanche deserticola
1. Materiál a metody
1.1 Materiály a nástroje
Buňky HepG2 (Human Hepatocellular Carcinomas) byly zakoupeny z Cell Center Institutu základní medicíny, Peking Union Medical University, Čína.Celkové glykosidyPrášek z extraktu cistanche(hmotnostní frakce větší nebo rovna 75 %, v kombinaci s echinakosidem a stranou bazénu, poskytnutá společností Inner Mongolia Sankou Biotechnology Co., Ltd.) byly rozpuštěny v médiu DMEM na odpovídající koncentrace TG pro následující experimenty.
Fetální bovinní sérum bylo zakoupeno od Gibco, USA; Protilátky (smíšený roztok penicilin-streptomycin gentamicin), médium DMEM-H, souprava pro detekci buněčné apoptózy a buněčného cyklu, roztok Annexin V-FITC/barvivo a roztok barviva pro apoptózu Hoechst 33342/PI byly zakoupeny od Genview; Souprava pro stanovení koncentrace 0,25% trypsinu a BCA proteinu byla zakoupena od Beijing Dingguo Changsheng Biotechnology Co., Ltd; Králičí anti-Catenin protilátky byly zakoupeny od ABClonal; Králičí anti-Dsh (ADAR1) protilátka byla zakoupena od Bios; Králičí anti GSK3 protilátky a králičí anti-AFP protilátky byly zakoupeny od Affinity. Inkubátor buněk CO2 (Innova CO-170), nízkoteplotní vysokorychlostní stolní centrifuga (3K15, Sigma, Německo), multifunkční přístroj pro značení enzymů (INFINITE M NANO TECAN), fluorescenční mikroskop (C-SHG1, Nikon, Japonsko), průtoková cytometrie (FACSCALIBUR, BD, USA), zařízení pro elektroforézu 27015EN, USA (043BR57802, BIO-RAD, USA).
1.2 Experimentální metoda
1.2.1 Pasáž buněk
Buňky HepG2 byly kultivovány v kompletním médiu DMEM obsahujícím 10 % fetálního hovězího séra a 1 % trojitých antibiotik (100 U/ml penicilinu, 100 mg/ml streptomycinu a gentamicinu) v 5% C02 buněčném inkubátoru při 37 stupních. Poté, co buňky vyrostly do konfluence 80 % až 90 %, byly štěpeny 0,25 % trypsinem (-EDTA) a subkultivovány v poměru 1:2 až 4. Po 2-3 dnech buněčného růstu byly buňky z logaritmické růstové fáze odebrány pro subkultivaci nebo následné experimenty.
1.2.2 Účinek TG na morfologii buněk HepG2
Buňky HepG2 z logaritmické růstové fáze byly odebrány a naočkovány na 24jamkovou destičku s koncentrací buněk 5 na jamku × 104 kusů/ml, poté, co buňky přilnuly ke stěně, přidejte TG na konečnou koncentraci 0, 3,5, 10,5, 21, 31,5, 42 μ4 hodin G/ml, pozorovanou buněčnou kulturu, d ml na jamku morfologie každé skupiny pod světelným mikroskopem.
1.2.3 Účinek TG na proliferaci buněk HepG2
Odeberte buňky HepG2 ve stádiu logaritmického růstu a upravte koncentraci buněk na 1 × 10⁴ kusů/jamku, naočkujte do 96jamkových destiček, přidejte 100 μl na jamku μ 50. Inkubujte v buněčném inkubátoru. Poté, co buňky přilnou ke stěně, jsou ošetřeny léky podle 1.2.2 výše a každá skupina má šest reperforací, kultivovaných po dobu 24 hodin. Míra přežití buněk byla měřena pomocí metody CCK8 a hodnota absorbance (OD) byla měřena při vlnové délce 450 nm. Míra přežití buněk a míra inhibice buněk byly vypočteny pomocí následujícího vzorce.
Ve vzorci slepá skupina obsahuje pouze kapalinu CCK8, zatímco kontrolní skupina obsahuje léčebnou skupinu 0 μG/ml, experimentální skupina: 3,5, 10,5, 21, 31,5, 42 μG/ml léčebná skupina.
1.2.4 Účinek TG na buněčný cyklus HepG2
Vezměte buňky z logaritmické růstové fáze a stiskněte 5 x Buněčná hustota 105 buněk na jamku byla naočkována do šestijamkové destičky a systém 2 ml na jamku obsahující 5 x 10⁵ buněk byl umístěn do kultivačního boxu a podroben působení léčiva, jak je popsáno v 1.2.2 výše. Po kultivaci byly provedeny následné operace podle návodu kitu.
1.2.5 Účinek TG na migraci buněk HepG2:
Vyberte buňky z logaritmické růstové fáze a položte je na šestijamkovou destičku. Systém 2 ml na jamku obsahující 6 x 10⁵ buněk byl odstraněn, když byla adheze buněk a agregace buněk nad 90 %. Proveďte protidrogovou léčbu podle 1.2.2 výše. V 0 h náhodně vyberte 5 zorných polí pod mikroskopem pro fotografie, umístěte je do inkubátoru k další kultivaci na 24 hodin, pořiďte snímky pod optickým mikroskopem, použijte software Image J k analýze škrábatelné oblasti buněk a vypočítejte rychlost migrace podle následujícího vzorce (2) [18].

Experiment Cistanche deserticola
1.2.6 Metoda dvojitého barvení Hoechst 33342/PI pro detekci apoptózy
Vyberte buňky z logaritmické růstové fáze a položte je na 24jamkovou destičku s 0,5 ml systémem obsahujícím 3 x 10⁴ buněk, byly ošetřeny léky podle 1.2.2 výše a byl přidán 1 ml pufru pro barvení buněk, poté 5 μl barviva Hoechst a 5 μ LPI roztoku barviva pro barvení. Inkubujte ve tmě při 37 stupních po dobu 7-10 minut, vyjměte 24jamkovou destičku, navlhčete ji PBS a fotografujte pomocí fluorescenčního mikroskopu pro pozorování.
1.2.7 Detekce apoptózy buněk HepG2 dvojitým barvením Annexinem V-FITC/PI
Vyberte buňky z logaritmické růstové fáze a položte je na šestijamkovou destičku se systémem 2 ml na jamku obsahující 2 × 10⁵ buněk, byly ošetřeny léky podle 1.2.2 výše a následné operace byly provedeny podle pokynů k soupravě, přidáním 5 μl Annexinu V-FITC a 5 μl PI barvícího roztoku bylo inkubováno při 4 stupních ve tmě a detekce apoptózy.
1.2.8 Vliv TG na expresi proteinu v buňkách HepG2
Stiskněte 2 × 10⁶ buněk/buňku bylo ošetřeno léky podle 1.2.2 výše, s použitím 80 μl lyzátu (RIPA: PMSF=100:1) lyzovaných proteinů a poté pomocí elektroforézy SDS-PAGE k oddělení každého vzorku proteinu (50 vzorků na jamku μg) Dokončete přenos proteinu do PVST TB roztoku pomalu pomocí ledové lázně, membrána PVST TB v pásce s ledem uzavřete třepací stůl BSA při pokojové teplotě po dobu 1 hodiny a přidejte protilátku (AFP, GSK3) v poměru - Catenin, Dsh), inkubujte při 4 stupních přes noc a poté inkubujte PVDF membránu se zředěnou sekundární protilátkou při pokojové teplotě po dobu 1-2 hodin. GAPDH se používá jako interní reference. Po vyvinutí a fixaci PVDF membrány pozorujte změny v expresi cílového proteinu [6].
1.3 Analýza dat
K vyjádření byla provedena jednofaktorová analýza významnosti ANOVA za použití statistického softwaru SPSS 25.0. Experimentální data průtokové cytometrie byla analyzována pomocí Flowjo. Pro kreslení použijte Graphpad Prism 8.0.2. P<0.05 indicates a statistically significant difference, while P<0.01 indicates a highly significant difference.
2.Výsledky a analýza
2.1 Účinek TG na morfologii buněk HepG2

Obrázek 1 Buňky HepG2 ošetřené různými koncentracemi TG po dobu 24 hodin (200x)
Během procesu apoptózy se nejprve bude postupně zmenšovat a deformovat její objem a následně budou adherentní buňky pomalu podléhat procesům, jako je smršťování, zaoblování, odlupování a intracelulární pyknóza chromozomů. Některá jádra podstoupí rozbití, marginalizaci a tvorbu apoptotických váčků. Jak je vidět na obrázku 1, 3,5 a 10,5 μ Když byly buňky HepG2 ošetřeny g/ml TG, objem buněk se postupně snižoval; A pak vizuálně pozorujte 21 μ Při g/ml se jádro začalo zmenšovat a objem se zmenšil; třicet jedna bodů pět μ Při g/ml byly buňky doprovázeny plovoucími a buněčnými zbytky; čtyřicet dva μ Při g/ml buněčná membrána zcela praskne, buňky podléhají lýze, dochází k nekróze a hranice je nejasná. Buňky jsou ve stavu blížícího se kolapsu a smrti.
2.2 Účinek TG na proliferaci buněk HepG2

Obrázek 2: Účinek TG na proliferaci buněk HepG2
Poznámka: * představuje totéž jako 0 .μ Rozdíl byl významný v g/ml (P<0.05), and * * indicates a significant difference (P<0.01).
Jak je vidět z obrázku 2, po 24 hodinách léčby různými koncentracemi TG je proliferace buněk HepG2 omezena na různé stupně. Ve srovnání s mírou přežití buněk v kontrolní skupině vykazuje míra přežití buněk v léčené skupině klesající trend se zvyšující se koncentrací, což je 96,95 %, 92,59 %, 92,78 %, 77,24 %, 31,04 %, a koncentrace je 3,5, 10,5 a 21, v uvedeném pořadí, zatímco v g/m nebyl žádný významný rozdíl, zatímco v g/m nebyl žádný významný rozdíl. μ G/ml a 42 μ Při g/ml byl významný rozdíl (P<0.01), with an IC50 of 37.77 after TG treatment μ g/mL. CCK8 test results indicate that when TG concentration is 21 μ When the concentration is above g/mL, the inhibitory effect on HepG2 cells is better.
2.3 Účinek TG na buněčný cyklus HepG2
Jak je znázorněno na obrázku 3, po 24 hodinách léčby různými koncentracemi TG bylo zjištěno, že jak se koncentrace zvyšovala, fáze G0/G1 se postupně snižovala, což představovalo 59,9 %, 56,7 %, 56 %, 54 %, 33,4 % a 29,1 %, v tomto pořadí s významným poklesem; Podíl fáze S byl 14,3 %, 15,8 %, 16,8 %, 18,7 %, 25,1 % a 27,6 %, v tomto pořadí, s různým stupněm zvýšení; 3,5-21 ve srovnání s kontrolní skupinou (23,88 %) μ Při g/ml má fáze G2/M malou změnu, což představuje 25,85 %, 24,92 % a 25,33 %, v tomto pořadí. Když je TG 31,5 μG/ml a 42 μ Při g/ml se významně zvýšil, 37,89 %, respektive 39,42 %. Tento test zjistil, že TG v nízkých koncentracích (3,5-21 μG/ml), neinhibuje dělení a proliferaci buněk hlavním způsobem, který ovlivňuje buněčný cyklus, a při vysokých koncentracích (31,5 μG/ml a 42 μG/ml) může vyvolat zástavu buněk v S fázi a G2/M fázi, a tím inhibovat buněčnou proliferaci. Současně, když je TG 31,5 μG/ml a 42 μAt g/ml, subG1 se také zvýšil, což je v souladu s výzkumem Sun Qian et al. [19], že deriváty artemisininu mohou při vysokých koncentracích zvýšit subG1 pík buněk HepG2. Zjistil také, že se zvýšením koncentrace artemisininu se zvyšuje podíl buněk fáze G2/M. Výsledky buněčného cyklu naznačují, že TG může podporovat inhibici progrese buněčného cyklu, a tím indukovat buněčnou apoptózu.
2.4 Vliv TG na migraci buněk HepG2

Obrázek 4: Účinky různých koncentrací TG na migraci buněk HepG2
Poznámka: * představuje totéž jako 0,μ Rozdíl byl významný při g/ml (P<0.05), and * * indicates a significant difference (P<0.01).
Metastázy rakovinných buněk jsou jedním z klíčů k léčbě rakoviny a úzce s ní souvisí i recidiva rakoviny. Aby se zjistilo, zda TG může inhibovat migraci buněk HepG2, byla k pozorování migrace buněk použita metoda scratch. Jak je znázorněno na obrázku 4, se zvýšením koncentrace TG se 24hodinová mobilita postupně snižuje a je zřejmý inhibiční účinek. pozorováno Mobilita je 14,82 %, 13,42 %, 12,66 %, 10,11 %, 8,46 %, 7,24 %, 21 μG/ml vykazovala významné rozdíly (P<0.05), 31.5 μ G/mL and 42 μ G/mL showed a significant difference (P<0.01). The results of this experiment indicate that TG can inhibit the migration of liver cancer cells, thereby limiting the metastasis of cancer to other tissues.
2.5 Metoda dvojitého barvení Hoechst 33342/PI pro detekci apoptózy
Nukleární barvení bylo provedeno pomocí Hoechst 33342 k detekci kondenzace chromatinu [20]. Normální buňky vykazovaly nízkou modrou, apoptotické buňky vykazovaly vysokou modrou/nízkou červenou a nekrotické buňky vykazovaly nízkou modrou/vysokou červenou. Jak je vidět z obrázku 5, ve srovnání s kontrolní skupinou byla ve skupině léčené TG pozorována koncentrace chromatinu a jaderná fragmentace. Současně, když byl TG na 3,5-21, bylo pozorováno, že μ V rozmezí g/ml se modrá fluorescence postupně zvyšovala, což naznačuje, že TG hlavně inhibuje buněčnou proliferaci prostřednictvím apoptózy při nízkých koncentracích; A nad 21 μ Při g/ml se červená fluorescence zvyšuje, což naznačuje, že TG hlavně poškozuje a ničí buněčnou strukturu, aby zabíjel buňky ve vyšších koncentracích. Výsledky tohoto experimentu ukazují, že léčba TG může vyvolat apoptózu a nekrózu buněk HepG2.
2.6 Dvojité barvení annexinem V-FITC/PI k detekci účinku TG na apoptózu buněk HepG2

Obrázek 6: Účinek TG na AV/PI dvojité barvení buněk HepG2
Poznámka: * znamená totéž jako 0 μ. Rozdíl byl významný v g/ml (P<0.05), and * * indicates a significant difference (P<0.01).
Pro další stanovení účinku TG na HepG2 buňky indukujícího apoptózu jsme použili metodu dvojitého barvení Annexin V-FITC/PI k barvení buněk HepG2. Jak je znázorněno na obrázku 6, se zvýšením koncentrace vykazuje rychlost apoptózy vzestupný trend, 0, 3,5, 21, 41 uM. Apoptotické rychlosti g/ml byly 5,63 %, 7,65 %, 10,93 % a 32,44 %, v závislosti na dávce. Výsledky ukázaly, že TG může vyvolat apoptózu zničením membránové integrity buněk HepG2. Tento výsledek je v souladu s výsledky AV/PI barvení buněk HepG2 diskutovanými Qi Xinxin et al. [6].
2.7 Vliv TG na expresi proteinu v buňkách HepG2
Poznámka: * znamená totéž jako 0 μ. Rozdíl byl významný v g/ml (P<0.05), and * * indicates a significant difference (P<0.01).
Alfa-fetoprotein (AFP) se používá jako sérový marker pro diagnostiku a testování účinnosti primárního karcinomu jater [21]. Jak je vidět z obrázku 7, ve srovnání s kontrolní skupinou se hladina exprese AFP v léčené skupině snížila, což naznačuje, že TG může do určité míry inhibovat výskyt rakoviny jater, ale pravděpodobnost zvrácení rakoviny jater je velmi malá. Kromě toho Dsh - hladina kateninu klesala lineárně se zvýšením koncentrace léčiva; GSK-3 Postupně se zvyšuje, ale ne v závislosti na dávce. Proto se spekuluje, že TG může regulovat Dsh - -katenin a GSK-3 relativní expresi prostřednictvím klasické signální dráhy Wnt/- -kateninu k indukci apoptózy v buňkách HepG2.
3 . Diskuse a závěr
Rakovina jater je jedním z nejčastějších zhoubných nádorů v Číně a řadí se také mezi tři nejčastější nemoci s úmrtností[22]. Mezi hlavní léčebné metody rakoviny jater patří chirurgická resekce, transplantace jater, chemoradioterapie a imunoterapie [23–25]. Uvádí se, že v roce 2016 byla incidence rakoviny jater v Číně 9,57 % a úmrtnost až 13,92 % [26]. "Vzhledem k nespecifickým příznakům časné rakoviny jater, jakmile se příznaky objeví, jsou většinou ve středním a pozdním stádiu. Proto jsou lidé aktivnější v používání tradiční čínské medicíny k léčbě rakoviny jater [27]." Lidé se domnívají, že přírodní sloučeniny mají nejmenší molekulární toxicitu a prokázaly se prospěšné pro léčbu rakoviny jater, takže aktivně zkoumají nové přírodní sloučeniny na rakovinu jater.

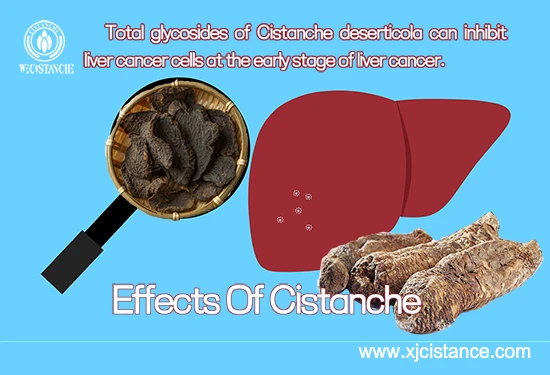
Celkové glykosidy Cistanche deserticola mohou inhibovat buňky rakoviny jater v časném stadiu rakoviny jater
Kliknutím sem zobrazíte produkty Cistanche Enhance Immunity
【Požádejte o více】 E-mail:cindy.xue@wecistanche.com / WhatsApp: 0086 18599088692 / Wechat: 18599088692
Mnohočetné účinky Cistanche deserticola v posledních letech přitahují velkou pozornost a postupně se staly jedním z horkých míst ve vývoji zdravé výživy a výzkumu léčiv. Buněčná morfologie a experimenty CCK-8 potvrdily, že určitá koncentrace TG může zničit buněčnou morfologii a inhibovat růst a proliferaci buněk HepG2 a koncentrace je přímo úměrná rychlosti inhibice buněk.
Buněčný cyklus označuje celý proces, kterým buňka prochází od dokončení jedné mitózy do konce dalšího dělení. Dělí se na dvě fáze: mezifázi a dělení. Průtoková cytometrie využívá fluorescenční barviva k rozlišení fáze G0/G1, fáze S a fáze G2/M. Prostřednictvím detekce buněčného cyklu bylo zjištěno, že po ošetření různými koncentracemi TG bylo zjištěno, že při vysokých koncentracích TG (31,5 μG/ml a 42 μG/ml) může blokovat buňky ve fázi G2/M a ovlivnit aktivitu buněk HepG2, což vede k cytotoxicitě, a tím inhibuje buněčnou proliferaci. Během progrese rakoviny rakovinné buňky z primárních nádorů napadají přilehlé normální tkáně, metastazují do vzdálených míst a tvoří nové kolonie. Odhaduje se, že celkem 90 % mortality související s rakovinou je způsobeno metastázami [28]. Signální dráha Wnt je zapojena do procesu transformace epiteliálních buněk na mezenchymální a transformace mezenchymálních buněk na epiteliální buňky, aby podpořily metastázy rakoviny. U hepatocelulárního karcinomu (HCC) jsou vysoké hladiny - -kateninu spojeny se zvýšenými metastázami a špatnou prognózou [29]. V této studii bylo zjištěno, že rychlost migrace buněk HepG2 ošetřených TG po dobu 24 hodin postupně klesala se zvyšující se koncentrací v závislosti na koncentraci.To ukazuje, že TG může řídit migraci rakovinných buněk a zabránit dalšímu šíření rakoviny, pravděpodobně prostřednictvím snížení signální dráhy Wnt - exprese kateninu.Obecně se postižená jádra zdají menší; Některé chromatiny se koncentrují nebo agregují na periferii, zatímco jiné mají typické vlastnosti, jako je fragmentace jaderného chromatinu a tvorba apoptotických tělísek [30-31]. Hoechst 33342 je modré fluorescenční barvivo, které může pronikat buněčnou membránou a má nízkou toxicitu pro buňky. Některé studie zjistily, že morfologické charakteristiky apoptotických buněk, včetně jaderné koagulace a fragmentace, byly pozorovány u buněk HepG2 barvených Hoechst 33342 [32]. V tomto experimentu bylo zjištěno, že po 24 hodinách působení TG se podíl buněk s koagulací chromatinu a fluorescenčních jaderných fragmentů zvýšil v závislosti na koncentraci, což je v souladu s výsledky studie Yang et al. [33] o apoptóze buněk HepG2 vyvolané gingerolem. Použitím metody dvojitého barvení Annexin V-FITC/PI k detekci buněk HepG2 ošetřených TG po dobu 24 hodin bylo zjištěno, žerychlost apoptózy buněk se postupně zvyšovala se zvyšováním koncentrace.
Natal glykosidy Cistanche deserticol
Dsh, - - -Catenin a GSK-3, typický Wnt/ - - -Disheveled (Dvl/Dsh) je důležitým regulátorem v signální dráze Cateninu, což je klíčový protein v signální dráze Wnt a může přenášet signály Wnt do downstream efektorů [34]. V klasické signální dráze Wnt je Dsh přivolán do buněčné membrány receptorem Frizzled, který působí jako protoonkogen a je spojen s inhibičním faktorem somatické osy (Axin), genem adenomatózní polypózy coli (APC) a GSK-3 vazbou za vzniku degradačního komplexu, který inhibuje vstup GSK-3 ano - degradace Catennucle phosphory a funkce [34-36]. - -Katenin je exprimován hlavně v buněčné membráně normálních buněk a souvisí s buněčnou adhezí. Podílí se také na přenosu informací signálních drah Wnt, reguluje buněčnou proliferaci a diferenciaci. Když je signální dráha Wnt abnormálně aktivována, - redistribuce kateninu může být jedním z důvodů vzniku nádoru [37]. Údajně ji lze pozorovat u 20 % - 35 % případů HCC [15] - Aktivace kateninu. Současně je také možné potlačit Wnt tím, že/ - -Catenin signalizační dráha aktivuje autofagii k inhibici proliferace buněk HepG2 [38]. Tato studie zjistila, že po léčbě TG se buňky HepG2, Dsh - hladina Cateninu lineárně snižovala se zvýšením koncentrace léčiva; GSK-3 Postupně se zvyšuje, ale ne v závislosti na dávce. Lze tedy odvodit, že TG prochází signální dráhou Wnt/- -Catenin, aby indukoval apoptózu v buňkách HepG2.
Celosvětově nejpoužívanějšími biomarkery primárního karcinomu jater jsou - Alfa-fetoprotein (AFP) [39]. AFP hraje důležitou roli v časném sledování, patologické klasifikaci, výběru léčby a prognóze pacientů s primárním karcinomem jater. Bez ohledu na metodu léčby, když je hladina AFP vyšší než 400 ng/ml, povede to ke špatnému přežití [40]. Detekcí hladiny exprese AFP proteinu v buňkách ošetřených TG,bylo zjištěno, že TG může účinně snižovat expresi AFP, což ukazuje, že TG může hrát roli při inhibici buněk rakoviny jater v časném stádiu rakoviny jater.

Čaj Cistanche
v souhrnucelkové glykosidy Cistanche deserticola inhibují proliferaci a růst buněk HepG2 tím, že ovlivňují progresi buněčného cyklu, ničí buněčnou strukturu, podporují apoptózu a omezují migraci buněk.Mechanismus účinku může být prostřednictvím signální dráhy Wnt/ - Wnt/ -Catenin, která aktivuje GSK-3 Degradaci - -Katenin může inhibovat rakovinu jater. Je zapotřebí další výzkum. V budoucnu mohou odborníci a vědci hluboce prozkoumat aplikaci Cistanche deserticola ve Wnt/ - Upstream a downstream proteinové molekuly signální dráhy Cateninu se používají k ověření cílových genů a dále prozkoumají mechanismus účinku celkových glykosidů Cistanche deserticola proti buňkám HepG2. Kromě toho může být cistanche deserticola jako léčivá a potravinově homologní látka konzumována v každodenní stravě, aby poskytla prevenci i léčbu a také poskytla určitý teoretický základ pro praktikování Great Food Outlook, podporující konstrukci „Zdravé Číny“ a zlepšení úrovně zdraví lidí.
[1] FENG D, HE Y, JIANG YJ a kol. Pokrok ve výzkumu funkce cistanches proti stárnutí[J]. Journal of Food Safety & Quality, 2021, 12(11): 4429-4437.
[2] Ma G, Chen J, Wei T, a kol. Inhibice rolí FOXA2 při migraci a invazi buněk rakoviny jater transkripčním potlačením mikroRNA103a-3p a aktivací osy GREM2/LATS2/YAP[J]. Cytotechnology. 2021, 73:523-537.
[3] LI MQ, WANG K, ZHOU X. Inhibice peptidů z fazolí mungo na proliferaci v buňce HepG2[J]. Journal of Chinese Institute of Food Science and Technology, 2018, 18(10): 52-57.
[4] HU Y, WANG S, WU X a kol. Sloučeniny získané z čínské bylinné medicíny pro léčbu rakoviny: zaměření na hepatocelulární karcinom[J]. J Ethnopharmacol. 2013, 149(3):601-612. doi:10.1016/j.jep.2013.07.030.
[5] YE Y, SONG Y, ZHUANG J, et al. Protirakovinné účinky echinakosidu u myšího modelu hepatocelulárního karcinomu a buněk HepG2[J]. J Cell Physiol. 2019, 234(2): 1880-1888. doi:10.1002/jcp. 27063
[6] QI XX, YOU SP, HE ZX a kol. Vliv fenylethanolového glykosidu Cistanche deserticola na proliferaci a apoptózu buněk HepG2 in vitro[J]. Journal of Xinjiang Medical University, 2021, 44(09): 1041-1047.
[7] XIE YT. Účinky echniakosidu na apoptózu buněk 786-O a indukční mechanismy in vitro[D]. Učitelská škola Baotou, 2020.
[8] HAN YM, JIN WM, ZENG H a kol. Účinky echniakosidu na proliferaci, invazi a metastázy buněk rakoviny tlustého střeva SW480 in vitro a in vivo[J]. Journal of Guangzhou University of Traditional Chinese Medicine, 2020,37(08):1542-1549.
[9] HU Q, YOU SP, LIU T a kol. Výzkum účinku cistanche proti rakovině jater[J]. Carcinogenesis, Te ratogenesis & Mutagenesis, 2018, 30 (03): 194-199.
[10] XU Q, QIN W, WU FZ, et al. Účinek odvaru Roucongrong (Herba Cistanches Deserticolae) na substantia nigra prostřednictvím signální dráhy Wnt/-kateninu u potkanů s Parkinsonovou chorobou vyvolanou hydrochloridem 6-hydroxydopaminu[J].202027701.
[11] YIN SL, WANG HB, YANG S. Neuroprotektivní účinky polysacharidu Cistanche Deserticola na krysy s Parkinsonovou chorobou indukované 6-HODA způsobené aktivací signální dráhy Wntt/ -catenin[J]. Chinese 10 Journal of Integrative Medicine on Cardio-Cerebrovascular Disease, 2020,18(08):1227-1230.
[12] TANG CH. Echinakosid inhibuje buňky rakoviny prsu potlačením signální dráhy Wnt/-catenin[D]. Lékařská univerzita v Chongqing, 2020.
[13] FENG L, MA QL, SHI L a kol. Echinacein inhibuje proliferaci buněk akutní myeloidní leukémie potlačením signálu SOX4/Wnt/beta-Catenin[J]. Imunologický časopis, 2020, 36 (02): 138-142.
[14] Clevers H, a kol. Wnt/ -catenin signalizace a onemocnění[J]. Cell. 2012, 149(6):1192-205.
[15] Russell JO, Monga SP. Wnt/ -Cateninová signalizace ve vývoji jater, homeostáze a patobiologii[J]. Annu Rev Pathol. 2018, 13: 351-378. doi:10.1146/annurev-pathol-020117-044010
[16] LIU CY, CHEN KF, CHEN PJ. Léčba rakoviny jater[J]. Cold Spring Harb Perspect Med. 2015, 5(9):a021535.
[17] WANG F, LI R, TU P a kol. Celkové glykosidy Cistanche deserticola podporují obnovu neurologických funkcí indukcí neurovaskulární regenerace cestou Nrf-2/Keap-1 u MCAO/R potkanů. Hranice farmakologie 2020, 11, 236.
[18] PÍSEŇ QJ. Inhibiční účinek extraktů z ovoce Akebia na adhezi, migraci a invazivitu buněk lidského hepatomu HepG2 a související mechanismy[D]. Šanghajská univerzita tradiční čínské medicíny, 2019.
[19] SUN Q, WANG J, LI Y, a kol. Syntéza a hodnocení cytotoxických aktivit derivátů artemisininu[J]. Chem Biol Drug Des. 2017, 90(5): 1019-1028.
[20] ZHAO YM, SUN LN, ZHOU HY, et al. Draslíkové kanály závislé na napětí se účastní glutamátem indukované apoptózy hipokampálních neuronů potkana[J]. Neurosci Lett. 2006, 398(1-2):22-27.
[21] GALLE PR, FOERSTER F, KUDO M, et al. Biologie a význam alfa-fetoproteinu u hepatocelulárního karcinomu[J]. Liver Int, 2019, 39(12): 2214-2229.
[22] MA G, CHEN J, WEI T, et al. Inhibice rolí FOXA2 při migraci a invazi buněk rakoviny jater transkripčním potlačením mikroRNA-103a-3p a aktivací osy GREM2/LATS2/YAP[J]. Cytotechnology. 2021, 73(4): 523-537.
[23] KAMARAJAH SK, FRANKEL TL, SONNENDAY C, et al. Kritické hodnocení systému stagingu 8. vydání American Joint Commission on Cancer (AJCC) pro pacienty s hepatocelulárním karcinomem (HCC): Surveillance, Epidemiology, End Results (SEER) analysis[J]. J Surg Oncol. 2018, 117(4):644-650.
[24] EDGE SB, COMPTON CC. Americký smíšený výbor pro rakovinu: 7. vydání příručky AJCC pro stanovení stadia rakoviny a budoucnost TNM[J]. Ann Surg Oncol. 2010, 17(6):1471-1474.
[25] VAUTHEY JN, LAUWERS GY, ESNAOLA NF a kol. Zjednodušený staging pro hepatocelulární karcinom[J]. Journal of Clinical Oncology: oficiální časopis Americké společnosti klinické onkologie. 2002, 20(6): 1527-36.
[26] ZHENG R, ZHANG S, ZENG H, a kol. Incidence a mortalita rakoviny v Číně, 2016. Journal of the National Cancer Center, 2022, 2(1), 1–9.
[27] ANWANWAN D, SINGH SK, SINGH S, et al. Výzvy u rakoviny jater a možné léčebné přístupy[J]. Biochim Biophys Acta Rev Cancer. 2020, 1873(1): 188314.
[28] CHAFFER CL, WEINBERG RA. Pohled na metastázy rakovinných buněk[J]. Science, 2011, 331(6024): 1559-1564.
[29] ZHONG Z, YU J, VIRSHUP DM, et al. Wnts a charakteristické znaky rakoviny[J]. Rakovinové metastázy Rev 2020, 39: 625–645.
[30] SYAM S, ABDUL AB, SUKARI MA, et al. Účinky girinimbinu na potlačení růstu na HepG2 zahrnují indukci apoptózy a zastavení buněčného cyklu[J]. Molekuly. 2011, 16(8):7155-7170.
[31] ZHANG X, LUO W, ZHAO W, et al. Isocryptotanshinon indukovaná apoptóza a aktivovaná MAPK signalizace v lidských buňkách rakoviny prsu MCF-7[J]. J. Rakovina prsu. 2015, 18(2):112-118.
[32] Ponselvi Induja M, Ezhilarasan D, Ashok Vardhan N. Evolvulus alsinoides methanolický extrakt spouští apoptózu v buňkách HepG2[J]. Avicenna J Phytomed. 2018, 8(6): 504-512.11
[33] YANG G, WANG SP, ZHONG LF a kol. Phytother Res. 2012, 26(11):1667-1673. doi:10.1002/ptr.4632
[34] LI J, GUO G, FAN YM, a kol. Rozcuchaný podporuje proliferaci gliomu: Experimentální studie[J]. Chinese Remedies & Clinics, 2021, 21(18): 3077-3080.
[35] Fiedler M, Mendoza-Topaz C, Rutherford TJ, Mieszczanek J, Bienz M. Disheveled interaguje s DIX doménovým polymerizačním rozhraním Axinu a interferuje s jeho funkcí při down-regulaci -cateninu[J]. Proč Natl Acad Sci USA. 2011;108(5):1937-1942. doi:10.1073/pnas.. 1017063108.
[36] SHI QQ, ZUO GW, FENG ZQ a kol. Studie protihepatomového účinku ginsenosidu Rh2 a mechanismu degradace -cateninu prostřednictvím aktivace GSK-3 [J]. Čínské tradiční a bylinné drogy, 2016,47(18):3231-3238.
[37] HE S, TANG S. WNT/ -cateninová signalizace ve vývoji rakoviny jater[J]. Biomed Pharmacother. 2020, 132: 110851.
[38] HU P, CHENG B, HE Y a kol. Autofagie potlačuje proliferaci buněk HepG2 prostřednictvím inhibice signalizace glypikan-3/wnt/-catenin[J]. Onco Targets Ther. 2018;11:193-200.
[39] GAO YX, YANG TW, YIN JM, et al. Pokrok a vyhlídky biomarkerů u primární rakoviny jater (Přehled)[J]. Int J Oncol. 2020, 57(1): 54-66.
[40] Tangkijvanich P, Anukulkarnkusol N, Suwangool P a kol. Klinická charakteristika a prognóza hepatocelulárního karcinomu: analýza založená na hladinách alfa-fetoproteinu v séru[J]. J Clin Gastroenterol. 2000, 31(4):302-308.
[41] FENG D, DUAN H, LYU YN a kol. Aplikace Cistanche Deserticola Ma ve funkčních potravinách v Číně[J]. Food Science and Technology, 2021,46(12):76-81.