Jak chování utváří mozek a mozek utváří chování: postřehy z rozvoje paměti
Mar 16, 2022
Pro více informací:ali.ma@wecistanche.com
Zdrojová paměťse v dětství výrazně zlepšuje. Předpokládá se, že toto zlepšení úzce souvisí s hipokampálním zráním. Jak předchozí studie používaly hlavně průřezové návrhy k posouzení vztahů mezizdrojová paměťa hipokampální funkce, zůstává neznámé, zda změny v mozku předcházejí zlepšeníPaměťnebo naopak. K vyřešení této mezery použila současná studie zrychlený longitudinální design (n=200, 100 mužů) ke sledování 4- a 6-letých lidských dětí po dobu 3 let. Sledovali jsme vývojové změny vzdrojová paměťa vnitřní funkční konektivitu hipokampu a posuzoval rozdíly mezi 4- a 6-letou kohortou v prediktivních vztazích mezizdrojová paměťzměny a vnitřní hipokampální funkční konektivita při absenci náročného úkolu. V souladu s předchozími studiemi došlo k nárůstu v závislosti na věkuzdrojPaměťa vnitřní funkční konektivita mezi hipokampem a kortikálními oblastmi, o kterých je známo, že se účastní kódování paměti. Nové poznatky ukázaly, že změny ve schopnosti paměti v raném věku předpovídaly pozdější propojení mezi hipokampem a kortikálními oblastmi a že vnitřní funkční konektivita hipokampu předpovídala pozdější změny ve zdrojové paměti. Tato zjištění naznačují, že behaviorální zkušenost a vývoj mozku jsou interaktivní, obousměrné procesy, takže zkušenost formuje budoucí změny v mozku a mozek formuje budoucí změny v chování. Výsledky také naznačují, že na načasování a umístění záleží, protože pozorované účinky závisely jak na věku dětí, tak na specifických ROI mozku. Tato zjištění společně přidávají kritický pohled na interaktivní vztahy mezi kognitivními procesy a jejich základními neurologickými základy během vývoje.
Klíčová slova: akcelerovaný podélný design; vývoj mozku;epizodická paměť;funkční konektivita hipokampu;rozvoj paměti; zdrojová paměť
Fengji Geng,1,3 Morgan Botdorf,2 a Tracy Riggins2
1Department of Curriculum and Learning Sciences, Zhejiang University, Zijingang Campus, Hangzhou, 310058, 2Department of Psychology,
The University of Maryland, College Park, Maryland 20742, a 3Children's Hospital, Zhejiang University School of Medicine, National Clinical
Výzkumné centrum pro zdraví dětí, Hangzhou, 310052
Prohlášení o významu
Průřezové studie ukázaly, že schopnost zapamatovat si kontextové detaily předchozích zkušeností (tj.zdrojová paměť) souvisí s vývojem hipokampu v dětství. Není známo, zda funkční změny hipokampu předcházejí zlepšeníPaměťnebo naopak. Při použití zrychleného podélného designu jsme to zjistili brzyzdrojová paměťzměny předpovídaly pozdější vnitřní funkční konektivitu hipokampu a že tato konektivita předpovídala pozdější změny zdrojové paměti. Tato zjištění naznačují, že behaviorální zkušenost a vývoj mozku jsou interaktivní, obousměrné procesy, takže zkušenost formuje budoucí změny v mozku a mozek formuje budoucí změny chování. Kromě toho se tyto interakce lišily v závislosti na věku dětí a oblasti mozku, což zdůrazňovalo důležitost vývojové perspektivy při zkoumání interakcí mezi mozkem a chováním.

Klikněte pro obchod s vitamíny Cistanche a pro paměť Cistanche
Úvod
Zdrojová paměť se v dětství podstatně zlepšuje (např. Riggins, 2014). Konkrétně s přibývajícím věkem se děti zlepšují ve vykazování a uchovávání kontextových detailů životních zkušeností (Bauer, 2007). Tento vývoj úzce souvisí s dozráváním hipokampu, jak dokládají věkové a paměťové rozdíly ve struktuře a funkci hipokampu napříč vývojem (přehled viz Ghetti a Bunge, 2012; Sastre et al., 2016; Tang et al., 2018; Riggins a kol., 2020). Předchozí studie používaly k posouzení vztahů mezi vývojem mozku a paměti hlavně průřezové návrhy, které neumožňují zkoumat skutečné vývojové změny a mohou být ovlivněny matoucími faktory, jako jsou účinky kohorty. Proto zůstává neznámé, zda změny v mozku předcházejí zlepšení paměti nebo naopak. Předchozí studie se navíc zaměřovaly buď na malé děti, nebo na děti školního věku, což ztěžuje srovnání různých vývojových období. K vyřešení těchto mezer použila současná studie zrychlený longitudinální design ke sledování 4- a 6-letých dětí po dobu 3 let. Tento návrh nám umožnil prozkoumat vývojové změny ve vnitřní hipokampální funkční konektivitě (iHFC) a posoudit rozdíly mezi 4- a 6-letými kohortami v prediktivních vztazích mezi zdrojovou pamětí a funkční konektivitou (viz obr. 1).
U dospělých se předpokládá, že vnitřní funkční konektivita odráží funkční architekturu mozku, která se objevuje jako výsledek koaktivace mezi oblastmi mozku vyvolané úkolem (Fox a Raichle, 2007). Vzorce vnitřní funkční konektivity dětí jsou pravděpodobně konstruovány podobným způsobem; hypotéza dlouhodobého formování však navrhla, že tyto vzorce konektivity se formují v průběhu času v důsledku zrání i zkušeností (Gabard-Durnam et al., 2016). Například sledováním 4- až 18-letých dětí v průběhu 2 let prospektivní analýzy ukázaly, že funkční konektivita amygdaly vyvolaná úkolem předpověděla funkční konektivitu v klidovém stavu o 2 roky později, ale ne souběžně (Gabard-Durnam a kol., 2016). Tato zjištění naznačují souvislosti mezi aktivací mozku založenou na úkolu a vnitřní funkční konektivitou u dětí i dospělých; takové asociace se však mohou v rámci vývoje lišit.
Empirická data také podporují obousměrné vlivy mezi mozkem a chováním. Za prvé, předchozí studie podporují názor, že změny chování utvářejí vnitřní funkční konektivitu založenou na úkolech (např. Jolles et al., 2016; Clark et al., 2017; Rosenberg-Lee et al., 2018). Například u 8- až 9-letých dětí posílilo 8 týdnů doučování matematiky iHFC na intraparietální sulcus (Jolles et al., 2016). Za druhé, empirické studie ukázaly, že vnitřní funkční konektivita může předpovídat zisky v kognitivních schopnostech později ve vývoji (např. Hoeft et al., 2011; Supekar et al., 2013; Evans et al., 2015). Například Supekar a kol. (2013) zjistili, že iHFC měřené před doučováním matematiky předpovídalo zlepšení výkonu po doučování během středního dětství.

Na základě těchto studií jsme prozkoumali, zda existují obousměrné vlivy mezi změnami zdrojové paměti a vnitřní funkční konektivitou z hipokampu do oblastí mozku, o kterých se uvádí, že podporují kódování kontextových informací (Geng et al., 2019). Použili jsme zrychlený longitudinální design k posouzení následujících: (a) změn souvisejících s věkem v souběžných vztazích mezi zdrojovou pamětí a iHFC; (b) prediktivní vztahy mezi ranými změnami zdrojové paměti a pozdějšími iHFC; a (c) prediktivní vztahy mezi časnými iHFC a pozdějšími změnami zdrojové paměti (obr. 1).
Předpokládali jsme, že časné zisky zdrojové paměti by předpověděly pozdější iHFC, protože se předpokládá, že dopad zkušenosti se časem nabude (Gabard-Durnam et al., 2016). Očekávalo se, že hromadící se zkušenosti s každodenními paměťovými aktivitami povedou vývojové změny v iHFC během dětství. Navíc, vzhledem k větší plasticitě na počátku vývoje (např. Tottenham a Sheridan, 2010), jsme očekávali, že změny paměti budou robustněji předpovídat pozdější konektivitu u mladší než starší kohorty.
Vzhledem k tomu, že konektivita mozku byla navržena pro utváření pozdějšího chování (např. Evans et al., 2015), předpokládali jsme, že iHFC by předpovídalo zisky ve schopnostech zdrojové paměti. Kromě toho, protože hipokampální funkce je zralejší během středního oproti ranému dětství (Geng et al., 2019), předpokládali jsme, že konektivita v 6 letech by spolehlivěji předpovídala budoucí paměť než konektivita ve 4 letech.
Materiály a metody
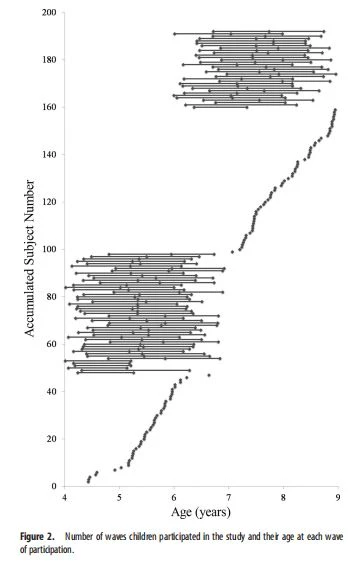
Účastníci Děti byly účastníky velké studie zkoumající vývoj paměti a mozku v raném dětství, která používala zrychlený longitudinální design (N=200, 100 mužů) (Riggins et al., 2018; Geng et al., 2019). První vlna (W1) studie zahrnovala 4- až 8-leté děti. 4- a 6-leté děti byly pozvány zpět na dvě následné vlny testování (W2 a W3; obr. 2). Celkem šlo o tři vlny a každá vlna zahrnovala mladé a staré kohorty (mladá kohorta: W1=4 let, W2=5 let, W3=6 let; stará kohorta: W{{ 17}} let, W2=7 let, W3=8 let). Tabulka 1 ukazuje počet dětí, které poskytly 3, 2 nebo 1 vlnu dat pro závěrečné analýzy v každé kohortě. Hlavními důvody ztráty neurozobrazovacích dat bylo, že se děti příliš hýbaly, během skenování usnuly, odmítaly vstoupit do skeneru nebo rodiny nesledovaly.
IQ dětí ve W1 jsme měřili pomocí subtestů slovní zásoby a blokového designu buď z Wechslerovy škály inteligence pro děti (Ed 4) (Wechsler, 2003) nebo Wechslerovy škály pro předškolní a primární inteligence (Wechsler, 2012 ). Všechny děti zahrnuté do analýz měly průměrné až nadprůměrné odhadované IQ. Nebyl nalezen žádný rozdíl mezi mladými a starými kohortami ve škálovaných skóre ve slovní zásobě (mladý: průměr=11,07, SD=2,96; starý: průměr=11,66, SD { {11}}.55; p=0.33) nebo dílčí testy blokového designu (mladé: střední=12.96, SD=2.73; staré: střední=13. 03, SD=3.00; p=0.92). Rodiče uvedli, že všichni účastníci jsou zdraví bez jakýchkoli neurologických vývojových poruch, neurologických stavů nebo psychiatrických stavů. Kromě toho rodiče uvedli, že 88,5 procenta dětí je praváků, 6,8 procenta levorukých, 3,7 procenta oboustranných a 1 procento jako neurčitelné.
Experimentální design Kódování. Během první návštěvy se děti dozvěděly nová fakta (např. „Skupina nosorožců se nazývá havárie“) z jednoho ze dvou různých zdrojů, dospělé ženy („Abby“) a loutky s mužským hlasem („Henry“) prostřednictvím digitální videa (Drummey a Newcombe, 2002; Riggins, 2014). Každý zdroj uvedl 6 faktů pro celkem 12 faktů. Prezentace faktů byla blokována podle zdroje, kdy se děti nejprve dozvěděly 6 faktů z jednoho zdroje a následně 6 faktů z druhého zdroje, a pořadí bloků bylo náhodně rozděleno mezi účastníky. Byly tam tři seznamy faktů; každý seznam se skládal z jedinečných faktů, které byly na seznamech podobné (např. „Skupina klokanů se nazývá dav“ nebo „Skupina koz se nazývá kmen“). Tyto seznamy byly náhodně rozděleny mezi účastníky. Děti byly požádány, aby věnovaly pozornost faktům, protože je budou testovat následující týden, ale nebylo jim řečeno, že budou testovány na zdroji faktů. Děti byly dotázány, zda před experimentem znaly fakta. Známá fakta byla vyloučena a nahrazena dalšími novými fakty ze seznamu stejného zdroje (k tomu však došlo jen zřídka). Každý zdroj měl 8 možných faktů, které zohledňovaly možnost, že děti budou znát 1 nebo 2 z faktů. Pokud dítě znalo 3 nebo více faktů z jednoho zdroje, celkový počet faktů, na kterých bylo dítě testováno, se snížil (ale to bylo vzácné, n=4).
Získávání. Během druhé návštěvy byly děti testovány na paměť faktů a zdrojů z první návštěvy. Děti byly požádány, aby odpověděly na 22 triviálních otázek a sdělily experimentátorovi, kde se odpovědi na tyto triviální otázky dozvěděly. Bylo jim řečeno, že se některé z otázek naučili týden předtím buď od „Abby“ nebo „Henryho“, některé se možná naučili mimo laboratoř (např. od učitele nebo rodičů) a některé možná neznají. Děti se dozvěděly 6 z 22 prezentovaných faktů od „Abby“, 6 od „Henryho“, 5 byla fakta, která děti běžně znají (např. „Jakou barvu má nebe?“) a 5 byla fakta, která děti obvykle nevěděly. (např. „Jak se nazývá barevná část vašeho oka?“). Každý seznam 22 faktů měl dvě náhodné pořadí prezentace a tyto pořadí byly mezi účastníky vyvážené. Pokud si děti nebyly schopny vybavit zdroj konkrétní otázky, bylo nabídnuto pět možností s více možnostmi: rodiče, učitel, dívka ve videu, loutka ve videu nebo to jen věděli/uhodli.
Zdrojová paměť byla vypočítána jako podíl otázek, u kterých si děti přesně vybavily nebo rozpoznaly fakt i zdroj, z celkového počtu naučených faktů (viz vzorec níže). Předpokládá se, že tato míra zdrojové paměti odráží vazbu faktů a zdrojů, což je důležitý aspekt epizodické paměti (Miller et al., 2013; Cooper a Ritchey, 2020).
Během bezúlohového skenování byl v reálném čase monitorován pohyb hlavy účastníka. Pokud účastník vykazoval nadměrný pohyb hlavy (0,2 mm v libovolném směru) během první poloviny libovolného běhu, skenování bylo restartováno a účastníkovi bylo připomenuto, aby zůstal co nejklidněji.

Předzpracování obrazových dat Do analýz bylo zahrnuto všech 210 shromážděných snímků fMRI v klidovém stavu, protože první čtyři svazky byly před sběrem dat vyřazeny z důvodu nestability počátečního signálu MR a adaptace účastníka. Předzpracování zahrnovalo následující kroky. Nejprve byla provedena korekce času řezu, korekce pohybu hlavy a vyhlazování pomocí DPABI 1.3 (Yan et al., 2016). Poté byla provedena nezávislá analýza komponent na vyhlazených datech pomocí MELODIC, sady nástrojů FSL, k odstranění komponent souvisejících s artefakty (Geng et al., 2019). Po odstranění všech komponent souvisejících s artefakty byla provedena extrakce mozku, normalizace a filtrování. Podle postupu navrženého Tillmanem et al. (2018) byla extrakce mozku na T1-váženém snímku provedena samostatně v šesti sadách nástrojů: Advanced Normalization Tools, AFNI, FSL, BSE, ROBEX a SPM8, aby byla zajištěna vysoká kvalita dat. Voxely extrahované alespoň čtyřmi sadami nástrojů byly zahrnuty do mozkové masky. K provádění koregistrace a normalizace byly použity pokročilé normalizační nástroje. Statistické analýzy byly provedeny v AFNI (Cox, 1996). Časová pásmová filtrace (0.{14}},1 Hz) a prostorové vyhlazování pomocí 5mm FWHM Gaussova jádra byly provedeny v AFNI na normalizovaných datech.
Jednotlivé oblasti semen (bilaterální přední a zadní hippocampus) byly odvozeny ze strukturálního skenu pomocí Freesurfer 5.1 (Fischl, 2012) a upraveny pomocí nástroje Automatic Segmentation Adapter Tool (Wang et al., 20 11). Hipokampus byl rozdělen na přední a zadní segmenty pomocí manuální identifikace standardních anatomických orientačních bodů. Strýčkový vrchol sloužil jako hranice mezi předním a zadním hipokampem (Duvernoy, 2005; Weiss et al., 2005). Hodnotitelé byli slepí k věku a pohlaví účastníků. Spolehlivost identifikace těchto orientačních bodů indikovala 94,60% shodu v rámci 1 řezu a 99,99% shodu v rámci 2 řezů. Vnitrotřídní korelační koeficienty byly vysoké a pohybovaly se od 0,897 do 0,985. Když se mezi hodnotiteli neshodli na správném umístění řezu, byl použit řez zkušenějšího hodnotitele.
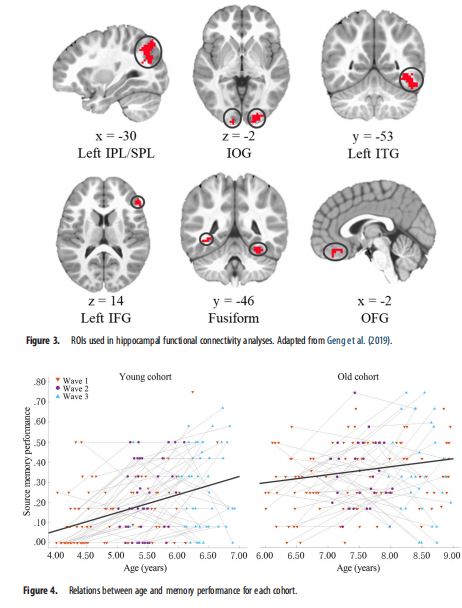
Byly vypočítány korelace mezi časovými řadami jednotlivých oblastí semen (bilaterální přední a zadní hipokampus) a celého mozku, aby se vytvořily individuální mapy funkční konektivity v klidovém stavu. Následně byla Fisherova transformace r-to-z použita k převodu r map na mapy z, aby se získaly normálně rozložené hodnoty map konektivity. Hodnoty z byly extrahovány ze 6 oblastí zájmu: dolní/superiorní parietální lalok (IPL/SPL), dolní okcipitální gyrus (IOG), levý dolní temporální gyrus (ITG), levý dolní frontální gyrus (IFG), gyrus fusiformní a orbitální frontální gyrus (OFG) (obr. 3). Tyto oblasti mozku byly definovány podle předchozího výzkumu, který ukázal, že 4- až 8-leté děti vykazovaly větší aktivaci v těchto oblastech během kódování položek (tj. obrázků zvířat a předmětů), které si následně zapamatovaly správné zdroje než ty s nesprávnými zdroji (tj. obrázky kreslených postaviček) (podrobnosti viz Geng et al., 2019). Rozdíly v aktivaci naznačují, že těchto šest oblastí mozku je kritických pro kódování kontextových informací. Proto byly tyto regiony v současné studii vybrány jako ROI.
Statistické analýzy Byly použity lineární smíšené modely vzhledem k jejich schopnosti zpracovat nevyvážená a neúplná longitudinální data. Konkrétně byla v SPSS 20.0 spuštěna řada modelů s pevnými efekty, aby se otestovaly souvislosti mezi věkem, zdrojovou pamětí a iHFC. Nejprve byly posouzeny změny ve zdrojové paměti související s věkem. Poté byly analyzovány vztahy mezi věkem, zdrojovou pamětí a iHFC ke každé ROI za účelem posouzení změn v souběžných vztazích. Dále byly modely použity ke zkoumání, zda dřívější změny ve zdrojové paměti předpovídaly pozdější iHFC s každou ROI a zda dřívější funkční konektivita s každou ROI předpovídala pozdější změny ve zdrojové paměti.
Jak je naznačeno v úvodu, nějakou dobu trvá, než se změny chování a mozku vzájemně formují. Proto jsme analyzovali vztahy paměťových změn mezi W1 a W2 k funkční konektivitě na W3 (obr. 1). Kromě toho jsme vypočítali vztahy funkční konektivity na W1 k paměťovým změnám mezi W1 a W3 (obr. 1). Dalším praktickým důvodem, proč se intervaly změn paměti mezi těmito dvěma prediktivními analýzami lišily, bylo to, že ve staré kohortě nedošlo k žádné významné změně ve zdrojové paměti mezi W2 a W3. [Další zajímavou otázkou by bylo, jak změny ve zdrojové paměti souvisí se změnami v iHFC; v aktuálním vzorku však došlo k příliš velké ztrátě dat kvůli pohybu, aby bylo možné zkoumat změny v iHFC v rámci dvou kohort. Proto se pro analýzy funkční konektivity používají data z jednoho časového bodu.]
Spojité kovariáty (věk, střední FD, změna zdrojové paměti a iHFC) v těchto modelech byly standardizovány v celém vzorku. Informační kritérium Akaike bylo použito k porovnání modelů hlavních efektů s modely, které zahrnovaly hlavní i interaktivní efekty. Modely s nejnižší hodnotou Akaike's Information Criterion byly vybrány jako nejlépe vyhovující model. Vzhledem k průměrné velikosti vzorku (viz tabulka 1) a omezenému počtu ROI nebyly korekce pro vícenásobná srovnání aplikovány. Pokud byly pozorovány interakce zahrnující kohortu (mladí vs. staří), vztah mezi mírami zdrojové paměti a iHFC byl znovu odhadnut pro každou kohortu standardizací kovariát pro každou skupinu zvlášť a přehodnocením parametrů modelu.
Výsledek
Výsledky chování
Údaje pro analýzy chování poskytlo 194 dětí (tabulka 1). Pro predikci výkonu zdrojové paměti lépe vyhovovaly modely s pevnými efekty, včetně věku, kohorty (mladí vs. staří) a interakce věkové kohorty než model, který zahrnoval pouze hlavní efekty. Věk pozitivně souvisel s výkonem paměti zdroje (b=0.051, SE=0.023, t(353)= 2.281, s.=0.023) a došlo k významné interakci mezi věkem a kohortou (b=–0,075, SE=0,031, t(353) {{17 }} 2,423, p=0,016). Když byla tato interakce zkoumána, výsledky ukázaly, že změny ve zdrojové paměti související s věkem byly větší ve skupině mladých versus starých (p, 0,001 vs p=0,028; obr. 4). Nebyly pozorovány žádné rozdíly mezi 6-letými dětmi z mladé kohorty, které byly testovány v W3, a 6-letými dětmi ze staré kohorty, které byly testovány v W1 (p . 0,90). Kromě toho jsme testovali, zda existují rozdíly ve zdrojové paměti mezi věkovými skupinami v každé kohortě. Všechna srovnání mezi věkovými skupinami dosáhla významnosti s výjimkou rozdílu mezi 7 a 8 lety (p=0,24).
Změny související s věkem v souběžných vztazích mezi zdrojovou pamětí a funkční konektivitou Pevné efekty lineárních smíšených modelů zahrnovaly subregion, věk a zdrojovou paměť jako nezávislé proměnné a iHFC jako závislou proměnnou. Průměrná FD byla také zahrnuta do modelu kvůli marginálně významnému vztahu mezi věkem a průměrnou FD, jak je uvedeno výše. Modely hlavních efektů lépe seděly než modely s interakcí paměti zdroje věku. V predikci konektivity mezi hipokampem a levým IPL/SPL, IOG, levým ITG, levým IFG, fusiformním gyrusem a OFG byly významné hlavní vlivy věku. Konkrétně se zvyšujícím se věkem rostl i iHFC (obr. 5). Hlavní efekt zdrojové paměti nebyl významný pro konektivitu mezi hipokampem a jakoukoli ROI.
Kromě toho existovaly rozdíly v konektivitě mezi předním a zadním hipokampem a fusiformou, levým ITG, IOG, OFG a levým IPL/SPL (tabulka 3). Ve všech oblastech kromě OFG byla konektivita větší pro zadní část než pro přední hipokampus. V IFG byl trendový rozdíl ve funkční konektivitě hipokampu (přední, zadní; tabulka 3).
Prediktivní vztahy mezi změnami zdrojové paměti z W1 na W2 a funkční konektivitou na W3
Opravené efekty lineárních smíšených modelů zahrnovaly subregion (přední vs. zadní), kohortu (mladý vs. starý) a změnu zdrojové paměti (definovanou jako rozdíly ve zdrojové paměti mezi W1 a W2). Průměrná FD nebyla do modelů zahrnuta, protože nebyl žádný rozdíl v žádném z parametrů pohybu (průměrná FD, absolutní pohyb a délka dat) mezi mladými a starými kohortami (str. 0.60). Modely obsahující interakci se změnou paměti zdroje kohorty vedly k lepšímu přizpůsobení modelu pro levou IFG a OFG. Naproti tomu modely hlavních efektů se lépe hodily pro ostatní čtyři ROI. Změny zdrojové paměti mezi W1 a W2 pozitivně souvisely s funkční konektivitou hipokampu W3 s levým IPL/SPL, IOG, levým ITG a gyrus fusiforme (tabulka 4; obr. 6).
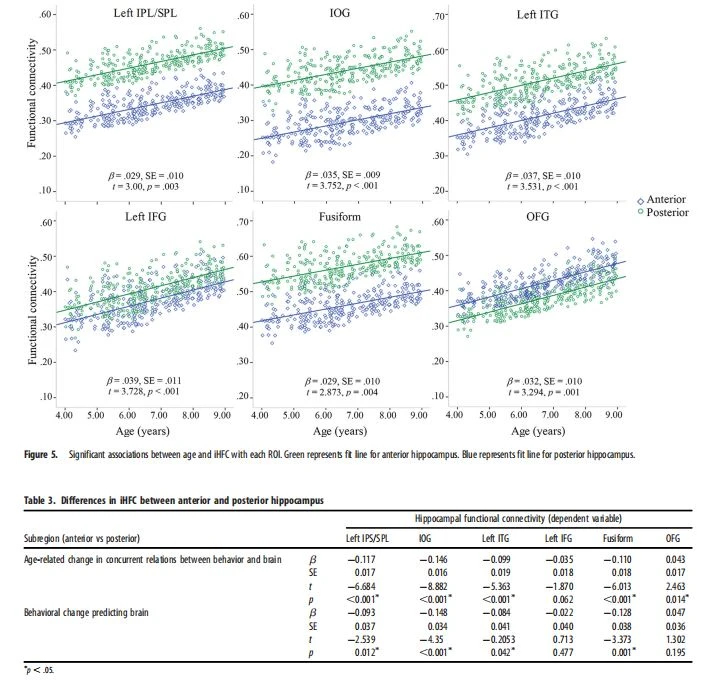
Existovaly významné interakce mezi kohortou a změnou zdrojové paměti, což předpovídalo vnitřní funkční konektivitu od hippocampu k levému IFG a OFG (tabulka 4). Ke zkoumání těchto interakcí byly použity modely fixních efektů k posouzení každé kohorty samostatně. V mladé kohortě změny zdrojové paměti významně souvisely s iHFC s levým IFG a OFG (b=0.109, SE=0.025, t( 73)=4.341, p , 0,001; b=0.068, SE=0.022, t(73)=3.117, p=0 .003). Ve staré kohortě však tyto asociace nebyly patrné (hodnoty p . 0,20). Proto pouze v mladé kohortě došlo ke zlepšení chování ve zdrojové paměti později k vnitřní funkční konektivitě mezi hipokampem a těmito kortikálními oblastmi (obr. 7). Navíc jsme znovu provedli výše uvedené analýzy se zdrojovou pamětí na W1 a W2 zahrnutou v modelech, abychom otestovali vztahy mezi změnami zdrojové paměti a pozdější funkční konektivitou hipokampu. Všechny výsledky zůstaly stejné, kromě toho, že hlavní účinek změn zdrojové paměti v levém IPL/SPL a IOG se stal nevýznamným (p=0.18; p=0.11). Zadní hipokampus navíc vykazoval větší konektivitu k fusiformnímu, levému ITG, IOG a levému IPL/SPL než přední hipokampus. Rozdíl v OFG a levém IFG nedosáhl významnosti (tabulka 3).
Prediktivní vztahy mezi funkční konektivitou na W1 a zdrojovou pamětí se mění z W1 na W3
Modely s pevnými efekty zahrnovaly iHFC ve W1 a kohortu (mladí vs. staří) jako nezávislé proměnné a změnu zdrojové paměti z W1 na W3 jako závislou proměnnou. Průměrná FD nebyla do modelu zahrnuta, protože se mezi kohortami významně nelišila (str. 0.70). Pro levou ITG a vřetenovou formu lépe vyhovovaly modely interakce. U ostatních ROI se modely hlavních efektů lépe shodovaly, ale nepřinesly žádná významná zjištění.
Interakce mezi kohortou a iHFC v levém ITG a vřetenovitém gyru významně predikovaly změnu paměti zdroje (tabulka 5). Ke zkoumání interakcí byly použity modely s fixními efekty k testování vztahů v každé kohortě zvlášť. Ve starší kohortě iHFC s levým ITG a vřetenovým gyrem souvisel se změnou paměti zdroje (b=– 0.{{10}}90, SE=0 .024, t(60)=3.76, p , 0.001; b=0.086, SE=0.029, t(60)= 2.998, p=0.004). Tato asociace však nebyla pozorována u mladé kohorty (p . 0,80). Proto pouze ve staré kohortě funkční konektivita mezi hipokampem a levým ITG a fusiformním gyrem predikovala pozdější zlepšení paměti zdroje (obr. 7).
Diskuse
Tato studie použila zrychlený longitudinální design ke zkoumání prediktivních vztahů mezi změnami zdrojové paměti a iHFC v dětství. Za prvé, zjistili jsme zvýšení výkonu zdrojové paměti související s věkem, což podporuje předchozí studie zdůrazňující rozdíly ve zdrojové paměti související s věkem v této věkové skupině (Drummey a Newcombe, 2002; Riggins, 2014). Za druhé, výsledky ukázaly, že iHFC v rámci paměťové sítě se v průběhu dětství zvýšil, což je v souladu s předchozími průřezovými studiemi, které ukazují podobné souvislosti mezi věkem a funkční konektivitou hipokampu (Blankenship et al., 2017; Geng et al., 2019). Konečně, výsledky ukázaly, že změny ve výkonu paměti předpovídaly pozdější funkční konektivitu a časná funkční konektivita předpovídaly pozdější změny zdrojové paměti.

Změny zdrojové paměti předpovídaly pozdější funkční konektivitu hipokampu
Změny zdrojové paměti na počátku života předpovídaly pozdější vnitřní propojení mezi hipokampem a kortikálními oblastmi v nepřítomnosti úkolu, což naznačuje, že chování formovalo pozdější funkční propojení. Konkrétně u všech dětí předpovídaly změny v paměti vnitřní konektivitu z hippocampu do fusiformního, levého ITG, IOG a levého IPL/SPL o 1 rok později. Navíc v mladší kohortě rané změny paměti také predikovaly funkční konektivitu hipokampu s levým IFG a OFG. V analýzách hodnotících změny v souběžných vztazích související s věkem však paměťová schopnost nesouvisela s iHFC. Tato zjištění podporují myšlenku, že životní zkušenost formuje mozek napříč vývojem, což je názor, který získal podporu i z jiných zjištění (Fox a Raichle, 2007; Gabard-Durnam et al., 2016). Například se ukázalo, že funkční konektivita vyvolaná úkolem předpovídá funkční konektivitu v klidovém stavu o 2 roky později, ale ne současně (Gabard-Durnam et al., 2016). Navíc, jak navrhuje rámec interaktivní specializace, interpretovali jsme zjištění, abychom ukázali, že změny v paměti v raném věku mohou řídit funkční integraci v rámci sítě hipokampální paměti a že tento proces trvá nějakou dobu, než se rozvine (Johnson, 2011; Poppenk et al., 2013). Jinými slovy, časné zisky paměti mohou odrážet postupné zpřesňování sítě hipokampální paměti v průběhu času, což nakonec vede ke zvýšenému iHFC i při absenci konkrétního úkolu. To je v souladu s předchozím výzkumem v jiných kognitivních doménách, který ukazuje, že aritmetický trénink indukoval změny hipokampálně-parietální konektivity ve středním dětství (Rosenberg-Lee et al., 2018).
Funkční konektivita hippocampu předpovídala pozdější změny zdrojové paměti
Konektivita z hipokampu na vřetenovou a ITG předpověděla změny paměti o 2 roky později. To však platilo pouze pro starší kohortu, takže iHFC s fusiformem a ponechané ITF v 6 letech předpovídaly změny paměti o 2 roky později. Tato zjištění podporují tvrzení, že činnost v mozku může také utvářet chování, a naznačují, že funkční integrace v rámci sítě hipokampální paměti může předpovídat budoucí vývojové přírůstky schopnosti paměti u dětí ve věku 6 let. Toto zjištění je v souladu s předchozími studiemi naznačujícími, že dřívější iHFC může předpovídat změny chování vyvolané intervencemi u typických a atypických vývojových populací (Hoeft et al., 2011; Supekar et al., 2013). Naše studie proto naznačuje, že v raném věku není interakce mezi mozkem a vývojem chování jednosměrná, ale naopak reciproční proces: změny chování utvářejí budoucí mozkovou aktivitu a mozková aktivita utváří budoucí změny chování.
Vliv načasování v interakci mezi vývojem chování a mozkem
Naše výsledky naznačují, že na načasování záleží, pokud jde o interakce mezi mozkem a vývojem chování. Konkrétně, ačkoli dřívější změny paměti předpovídaly pozdější hipokampální konektivitu s určitými kortikálními oblastmi u mladých i starých kohort, pouze v mladší kohortě se rané změny paměti týkaly funkční konektivity od hipokampu k levému IFG a OFG. Naproti tomu časná funkční konektivita s fusiformním a levým ITG významně predikovala pozdější změny paměti pouze u starší kohorty. Navrhujeme dvě možná vysvětlení těchto časových rozdílů. Za prvé, tato zjištění mohou vyplývat ze známých rozdílů ve velikosti věkových změn ve vývoji zdrojové paměti během dětství. V souladu s předchozími behaviorálními studiemi, které naznačovaly zrychlenou míru změn zdrojové paměti před šestým rokem života (Riggins, 2014), současná studie naznačuje, že změny paměti u 4-až{3}}leté kohorty byly větší podstatnější než u 6-až{5}}let staré kohorty. Větší změny paměti mohou způsobit větší změny v mozku. To může pomoci vysvětlit, proč dřívější změny paměti u mladší kohorty předpovídaly konektivitu mezi hipokampem a IFG a OFG.
Alternativně může rozdíl v načasování vyplývat ze známých rozdílů ve vývojových změnách v hippocampu během dětství. Studie na lidech a zvířatech konzistentně ukazují, že paměťová síť hipokampu zažívá významný rozvoj kolem šestého roku života (Serres, 2001; Lavenex a Lavenex, 2013). Proto může být 4-6 let citlivým obdobím pro vývoj hipokampu, který se vyznačuje větší plasticitou (Tottenham a Sheridan, 2010). Toto tvrzení je v souladu s argumentem, že tvarování funkční architektury může být zvláště výrazné během vývojových období, kdy jsou nervové systémy nejplastičtější a přístupné vlivům prostředí (Bick a Nelson, 2017). Po skončení citlivého období může zralejší hipokampální paměťová síť začít řídit vývojové změny v paměťových schopnostech. To může vysvětlovat, proč iHFC předpovědělo změny chování pouze u starší kohorty. Proto spekulujeme, že teprve poté, co mozek dosáhne určitého prahu zrání, může jeho funkce spolehlivě a konzistentně předvídat chování. Účinky načasování mohou také záviset na konkrétních oblastech mozku vykazujících funkční spojení s hipokampem. Časné změny paměti ze 4 na 5 let předpovídaly funkční konektivitu mezi hipokampem a prefrontálními oblastmi (IFG a OFG) v 6 letech. Ve starší kohortě však nebyla funkční konektivita ve věku 8 let predikována změnami chování od 6 do 7 let. Naproti tomu pouze ve starší kohortě iHFC predikovalo změny paměti o 2 roky později, a to bylo specifické pro fusiformu a ITG. Tato zjištění mohou být způsobena různými vývojovými trajektoriemi těchto nervových oblastí. Předchozí výzkumy ukázaly, že vývoj mozku probíhá v hierarchické posloupnosti od smyslových přes asociační kůry až po oblasti důležité pro kognitivní funkce (Gogtay et al., 2004; Shaw et al., 2008). IFG a OFG jsou oblasti spojené s kognicí vyššího řádu, které dozrávají později než senzorické nebo asociační oblasti. Zjištění současné studie jsou tedy v souladu s představou, že prefrontální oblasti, jako jsou IFG a OFG, jsou méně zralé, a proto více plastické, v mladší versus starší kohortě. To je také v souladu s předchozími studiemi, které naznačují, že zvýšená funkční vazba hipokampu s PFC souvisí s rozvojem paměťových schopností (Qin et al., 2014). Současná zjištění rozšiřují tuto práci a naznačují, že 4-6 let může být citlivým obdobím pro funkční integraci mezi hipokampem a frontálními oblastmi. Naproti tomu fusiformní a ITG souvisí s vizuálním zpracováním a dozrávají dříve než prefrontální oblasti. Takové rané zrání může být základem schopnosti vřetenovitých a ITG předpovídat změny chování.
Silné stránky a omezení
Současná studie má několik silných stránek. Pomocí zrychleného longitudinálního návrhu jsme sledovali vývojové změny ve zdrojové paměti, iHFC a vztazích mezi nimi. Tento návrh nám také umožnil otestovat rozdíly v načasování porovnáním dvou kohort dětí. Zaměřením se na navrhované citlivé období pro vývoj zdrojové paměti jsme byli schopni prozkoumat, jak je síť hipokampální paměti v tomto důležitém vývojovém okně zjemněna a jak souvisí se zlepšením paměti.
Tato studie má také omezení. Kvůli omezené velikosti vzorku jsme nebyli schopni prozkoumat, jak změny ve funkční konektivitě v průběhu času souvisí s pamětí. Kvůli velikosti vzorku jsme se také rozhodli neprovádět analýzy celého mozku a místo toho jsme spoléhali na ROI odvozené z úkolové studie zahrnující děti ze stejné longitudinální studie. Mohou tedy existovat i nálezy s dalšími oblastmi mozku, které nejsou zahrnuty do současného souboru ROI. Kromě toho byly ROI definovány v úloze pouze pomocí obrazového materiálu. Naproti tomu zdrojová paměť v této studii byla měřena v úloze zahrnující jak obrazový, tak verbální materiál. Není známo, zda by různé oblasti mozku byly aktivovány pro kódování kontextových informací poklepáním na vizuální versus verbální modality. A konečně, ačkoli část dětí ve vzorku poskytla data fMRI založená na úkolech k definování ROI, neměli jsme dostatek dat MRI založených na úkolech k posouzení vývojových vztahů mezi funkční konektivitou hipokampu založenou na úkolu a konektivitou měřenou bez náročného úkolu. uloženo.
Na závěr se naše studie zaměřila na mechanismy související s vývojovými změnami ve zdrojové paměti a základní hipokampální síti mezi 4. a 8. rokem věku. Výsledky naznačují, že behaviorální zkušenost a změny mozku jsou interaktivní procesy, takže zkušenost formuje změny v mozku a mozek formuje změny v chování. Naše zjištění navíc podporují a rozšiřují předchozí studie vývoje mozku tím, že ukazují, že načasování záleží na změnách chování formujících konektivitu mozku a takové rozdíly v načasování také závisí na tom, které oblasti mozku jsou zapojeny. Tato zjištění společně přidávají kritický pohled na vývoj zdrojové paměti v raném dětství a přispívají k rostoucímu množství literatury dokumentující interaktivní a složité vztahy mezi kognitivními procesy a jejich neurologickými základy ve vyvíjejícím se mozku.