Zdraví prospěšné vlastnosti extraktu ze semen vinné révy a jeho vliv na vybrané biochemické markery v krvi, játrech a ledvinách Rattus Norvegicus
Mar 10, 2022
Abstraktní:Kadmium (Cd) je těžký kov, který se vyskytuje ve všech oblastech životního prostředí, včetně potravního řetězce. V těle způsobuje oxidační stres produkcí volných radikálů, které jsou škodlivé pro buňky. Extrakt z hroznových jader (GSE) obsahuje širokou škálu biologicky aktivních složek, které pomáhají neutralizovat nepříznivé účinky volných radikálů. V této studii byly sledovány účinky GSE připraveného z polorezistentního kultivaru vinné révy Season, bohatého na fenolické látky, na biochemické markery hnědých potkanů vystavených účinkům kadmia. GSE zvýšil antioxidační aktivitu v plazmě a vledvinya játra, obsah Cd byl významně snížen při současném podávání GSE. V souladu s tím bylo zvýšení obsahu kreatininu a aktivity alaninaminotransferázy a snížení aktivity katalázy a superoxiddismutázy způsobené kadmiem zpomaleno současným podáváním GSE. Výsledky této práce ukazují, že extrakt z hroznových jader nabízí ochranný účinek proti příjmu těžkých kovů do organismu.
1. Úvod
Kadmium (Cd) je těžký kov, který se vyskytuje ve všech oblastech životního prostředí; je součástí zemské kůry, je obsažen ve vodě, hromadí se v rostlinách a je přítomen v organismech. Kromě potravního řetězce (z hlediska rostlin jsou zdrojem většina obilovin, okopanin a zeleniny, zatímco mezi živočišnými orgány jsou to především játra aledvinyjsou zdrojem), významným zdrojem kadmia pro člověka je cigaretový kouř, exhalace z různých typů spalování, hutnictví a některých elektroinstalací [1,2]. V těle se kadmium váže převážně na metalothionein, albumin a další plazmatické bílkoviny v krvi. Kadmium je nebezpečný toxický kov, který způsobuje oxidační stres produkcí volných radikálů, které jsou škodlivé pro buňky. Volné radikály mohou poškodit proteiny, lipidy, enzymy a DNA, a proto musí být před vstupem do buněk neutralizovány antioxidanty [3].
Pokud není neutralizováno, Cd způsobuje rozpad červených krvinek [4], hromadí se v organismu – zejména v játrech aledviny—a díky své podobnosti se zinkem, který je základním prvkem, snadno vstupuje do enzymatických reakcí a účastní se biochemických procesů [5]. Z organismu se vylučuje jen velmi pomalu a obtížně [6]. Je dobře známo, že antioxidanty mohou mít ochranný účinek proti oxidačnímu stresu a poškození těžkými kovy, a na této skutečnosti byla založena tato experimentální práce. Extrakt z hroznových jader (GSE) obsahuje ve své matrici širokou škálu biologicky aktivních složek [7], které pomáhají neutralizovat nepříznivé účinky volných radikálů. GSE chrání buňky před poškozením tím, že reguluje buněčné oxidační poškození, snižuje poškození orgánů, zlepšuje rovnováhu mezi oxidanty a antioxidanty a snižuje uvolňování zánětlivých mediátorů. Má také protizánětlivé, antiapoptotické a pro-proliferativní účinky [8]. Významný je zejména vysoký obsah kondenzovaného flavan-3-olu nebo prokyanidinů, které jsou zkoumány jako alternativní způsob léčby závažných onemocnění [9,10]. Obsah a složení fenolických látek z hroznových semen, stejně jako antioxidační aktivitu extraktu z semen, však mohou být ovlivněny odrůdou révy vinné, podnoží, klimatickými podmínkami nebo pěstitelskou technikou [11–13], a tedy antioxidačními vlastnostmi, např. stejně jako ochranné účinky betonového extraktu, nelze snadno předvídat. Cílem této práce bylo studium ochranného účinku GSE připraveného z polorezistentního kultivaru révy vinné Cerason na biochemické markery v krvi, plazmě, játrech aledvinyhnědých krys, které byly vystaveny účinkům kadmia.
klíčová slova:extrakt z hroznových jader; antioxidanty; kadmium; rattus norvegicus; biochemické markery; ochranný účinek; ledvina, ledvina
CISTANCHE ZLEPŠÍ FUNKCE LEDVIN/RENÁL
2. Výsledky a diskuse
2.1. Antioxidační aktivita a fytochemické složení extraktu z hroznových jader
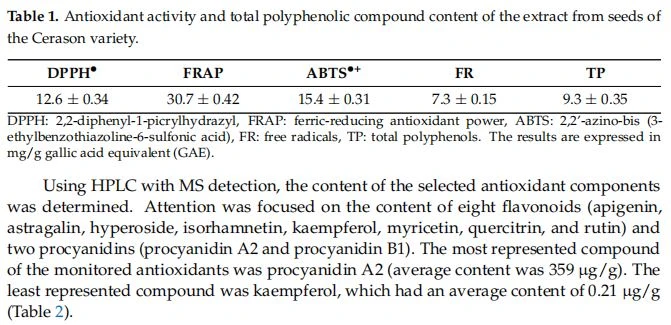
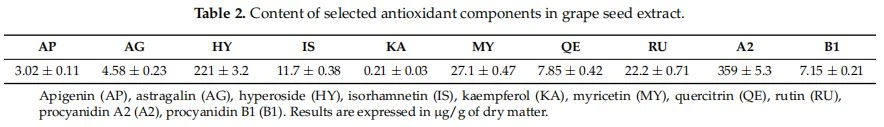
Extrakt z hroznových jader připravený z polorezistentní odrůdy Cerason byl testován na antioxidační aktivitu, celkový obsah polyfenolů a vybrané jednotlivé antioxidanty. Antioxidační aktivita byla stanovena spektrofotometricky pomocí čtyř metod založených na různých principech (DPPH• , ABTS• plus , FRAP, FR) a celkové polyfenolické sloučeniny byly stanoveny metodou Folin–Ciocalteu. V závislosti na použité metodě se antioxidační aktivita pohybovala od 7 do 31 mg/g ekvivalentu kyseliny gallové (GAE) a celkový obsah polyfenolů byl 9,3 mg/g GAE (tabulka 1). Výsledky této části experimentu poukázaly na vysoký antioxidační potenciál semen hroznů.
2.2. In vivo stanovení účinku extraktu z hroznových semen u krys
2.2.1. Stanovení obsahu kadmia v krvi, játrech a ledvináchKadmium je nejrozšířenějším toxickým kovem v krmivech. Po perorálním podání je absorbován ze střeva, transportován do jater a konjugován s thiolovými skupinami metalothioneinu (MT). Kromě toho se Cd může vázat také na albumin nebo jiné proteiny v krvi [14]. Následně se Cd hromadí v těle, je jen pomalu vylučováno z těla močí a stolicí a má biologický poločas asi 20 let. Největší množství (asi třetina) kadmia se nachází vledvinakůra. V krvi je nejvíce kadmia (asi 90 procent) přítomno v červených krvinkách. Je toxický pro širokou škálu orgánů a hlavními cíli jsouledviny, kosti a plíce [15–17]. Bylo hlášeno, že GSE snižuje koncentrace kadmia v červených krvinkách a v krviledviny,zatímco jeho obsah v játrech se údajně zvyšuje [14]. Výsledky pro obsah kadmia v krvi v této studii jsou uvedeny na obrázku 1A. Na začátku experimentu bylo v krvi zvířat nalezeno 3,2 µg/kg kadmia. Během experimentu, po 14 dnech, byla střední hodnota kadmia ve skupině s přídavkem GSE a kadmia významně vyšší než v ostatních skupinách (10,8 µg/kg, p=0,023). Po 28 dnech byla variabilita dat příliš vysoká na pozorování statistické významnosti.
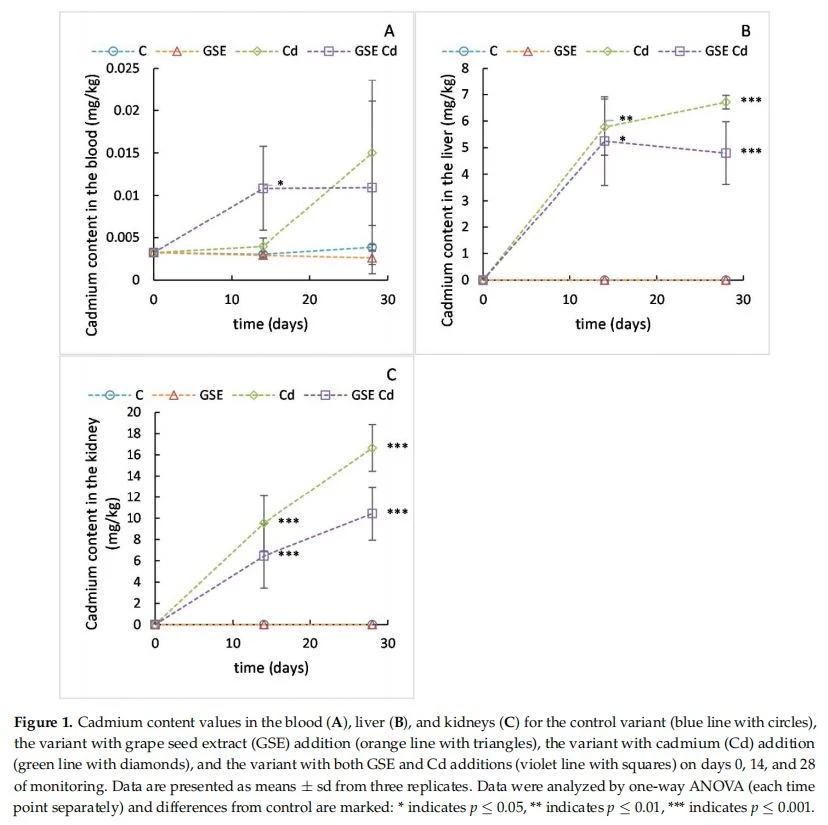
Na začátku experimentu nebylo detekováno žádné kadmium v játrech (obrázek 1B) pokusných zvířat. V souladu s tím nebylo během experimentu v játrech zvířat z kontrolní skupiny a skupiny GSE detekováno žádné kadmium. Na druhou stranu po 14 dnech experimentu byla střední hodnota kadmia ve skupině s přídavkem kadmia 5,8 mg/kg a ve skupině s přídavkem kadmia a GSE byla střední hodnota 5,2 mg/kg. Obě tyto hodnoty se významně lišily od kontrolní skupiny (p=0,002 a p=0,018 pro skupinu obsahující pouze kadmium a skupinu s kadmiem a GSE, v daném pořadí). Po 28 dnech se střední hodnota ve skupině s přídavkem kadmia zvýšila na 6,7 mg/kg, což se významně lišilo od hladiny kadmia ve skupině s přídavkem kadmia a GSE, která mírně klesla na 4,8 mg/kg (p=0.008).
Na začátku experimentu nebylo detekováno žádné kadmiumledviny(obrázek 1C) experimentálních zvířat. V souladu s tím nebylo detekováno žádné kadmiumledvinyzvířat z kontrolní skupiny a skupiny GSE během experimentu. Naproti tomu po 14 dnech byla průměrná hodnota kadmia ve skupině s přídavkem kadmia 9,5 mg/kg a ve skupině s přídavkem kadmia a GSE průměrná hodnota 6,5 mg/kg. Obě tyto hodnoty byly významně odlišné od kontrolní skupiny (p < 0,001="" pro="" obě="" skupiny).="" po="" 28="" dnech="" se="" střední="" hodnota="" ve="" skupině="" s="" přídavkem="" kadmia="" zvýšila="" na="" 16,6="" mg/kg,="" což="" se="" významně="" lišilo="" od="" hladiny="" kadmia="" ve="" skupině="" s="" přídavkem="" kadmia="" a="" gse,="" která="" se="" zvýšila="" jen="" mírně="" na="" 10,4="" mg/="" kg="" (p="0,009)." tedy="">ledvinya v játrech byl obsah Cd významně snížen podáváním GSE. GSE obsahuje fenolické sloučeniny, které dokážou chelatovat Cd, čímž snižují akumulaci Cd. Tvorba těchto chelátů pravděpodobně vedla ke snížení schopnosti proteinů vázat Cd, které tak mohlo být z těla efektivněji eliminováno [18].
2.2.2. Stanovení obsahu kreatininu a močoviny
S ohledem na akumulaci kadmia vledviny,ledvinaje jedním z nejdůležitějších cílových orgánů pro toxicitu vyvolanou Cd. Proto,ledvinamarkery kreatinin a urea byly stanoveny v plazmě. Stanovení kreatininu je dobrým indikátorem glomerulární filtrace a využívá se především ke sledování průběhunemoc ledvin. Vztah mezi koncentrací kreatininu a glomerulární filtrací je hyperbolický; s poklesem glomerulární filtrace klesá i sekrece kreatininu [19]. Zvýšený příjem těžkého kovu kadmia vede kpoškození ledvina tudíž sníženou účinnost sekrece kreatininu. V důsledku toho zvýšená hladina kreatininu v krvi indikuje aledvinovéporucha [20].
V naší studii byly hladiny kreatininu zvýšeny o Cd v souladu s dříve publikovanými výsledky [21]. Průměrná hodnota obsahu kreatininu (obrázek 2A) u pokusných zvířat na začátku experimentu byla 3.0 mg/l. Ve skupině užívající kadmium došlo k výraznému zvýšení sledovaných hodnot na 5,1 mg/l (po 14 dnech, p=0.015) a na 6,2 mg/l (po 28 dnech, p < 0.001).="" ve="" skupině,="" které="" byla="" gse="" podávána="" současně="" s="" kadmiem,="" byl="" nárůst="" tohoto="" markeru="" nižší="" (4,2="" mg/l="" po="" 14="" dnech="" a="" 5,5="" mg/l="" po="" 28="" dnech)="" a="" statisticky="" významný="" pouze="" po="" 28="" dnech="" ve="" srovnání="" s="" kontrolou="" (="" p="">< 0,001).="" zvýšení="" koncentrace="" kreatininu="" bylo="" tedy="" zpomaleno="" současným="" podáváním="" gse,="" což="" naznačuje="" snížení="" toxického="" účinku="" způsobeného="" kadmiem.="" ve="" skupině,="" která="" dostávala="" pouze="" gse,="" byly="" normální="">
Močovina je kvantitativně nejdůležitějším degradačním produktem aminokyselin a bílkovin. Vzniká v játrech z amoniaku uvolněného deaminačními reakcemi při metabolismu aminokyselin. Z organismu je vylučován především pomocíledvinyglomerulární filtrací a tubulární resorpcí [22]. V případěonemocnění ledvinrychlost produkce močoviny převyšuje rychlost její clearance, což má za následek zvýšení hladiny močoviny v krvi. Kadmium navíc inhibuje inkorporaci aminokyselin do proteinů, což způsobuje uremii [21]. Na druhé straně při selhávání jaterních funkcí dochází ke snížení syntézy močoviny a tím i její koncentrace v plazmě [20]. Koncentrace močoviny v krvi tedy závisí na obsahu bílkovin ve stravě,ledvinovévylučování a metabolické funkce jater.

V naší studii byly hladiny močoviny zvýšeny o Cd v souladu s dříve publikovanými výsledky [21]. Průměrná hodnota obsahu močoviny (obrázek 2B) u pokusných zvířat na začátku experimentu byla 207 mg/l. Ve skupině užívající kadmium došlo k výraznému nárůstu sledovaných hodnot na 329 mg/l (po 14 dnech) a 425 mg/l (po 28 dnech). Ve skupině, které byla GSE podávána současně s kadmiem, bylo zvýšení tohoto markeru jen mírně nižší – 325 mg/l po 14 dnech a 381 mg/l po 28 dnech. Obě skupiny, které dostávaly pouze kadmium a kadmium společně s GSE, se významně lišily od kontrolní skupiny po 14 (p=0,001, resp. p=0,002) a 28 dnech experimentu (p < 0,001="" pro="" oba).="" ve="" skupině,="" která="" dostávala="" pouze="" gse,="" byly="" zjištěny="" normální="">
2.2.3. Stanovení plazmatické antioxidační aktivity
Kadmium vyvolává řadu účinků spojených především s oxidačním stresem. Protože Cd není redoxně aktivní, nevytváří přímo reaktivní formy kyslíku. Nicméně jejich produkce po expozici Cd byla popsána v mnoha studiích a přezkoumána Cuypers et al. [23]. Mechanismy vedoucí k redoxním poruchám během expozice Cd zahrnují depleci redukovaného glutathionu způsobenou afinitou Cd k thiolovým skupinám, nahrazení Fe Cd v proteinech vedoucí ke zvýšeným koncentracím redox-aktivního volného Fe, mitochondriální dysfunkci a indukci NADPH oxidázy, které katalyzují tvorbu superoxidových radikálů [23]. Během oxidačního stresu mohou antioxidační sloučeniny, jako jsou fenoly, ukončit produkci nových reaktivních látek prostřednictvím jejich přeměny na stabilní radikálové formy. Proto rostlinné extrakty bohaté na fenolické látky mohou poskytovat ochranné účinky proti Cd nebo sloučeninám obsahujícím Cd [24].
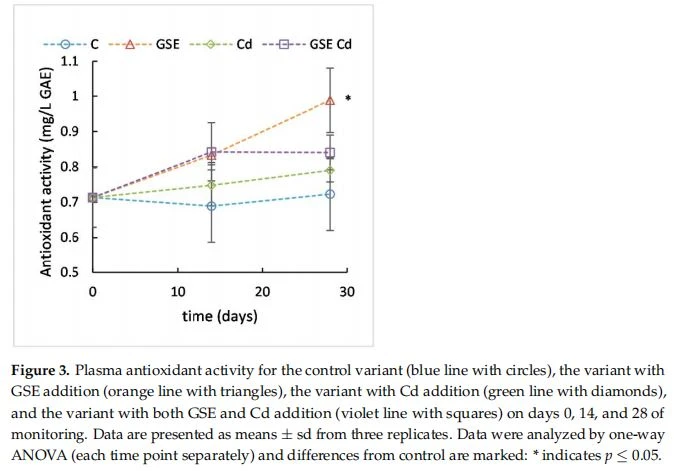
V této studii byla průměrná hodnota plazmatické antioxidační aktivity (obrázek 3) u pokusných zvířat na začátku experimentu 0,71 mg/l. Mírný nárůst byl pozorován ve všech experimentálních skupinách ve srovnání s kontrolní skupinou. Jediným významným rozdílem však byl rozdíl mezi skupinou léčenou GSE a kontrolní skupinou po 28 dnech (p=0,012), což potvrzuje pozitivní účinek GSE na antioxidační aktivitu plazmy. Dříve uváděné výsledky jsou nejednoznačné; někdy bylo zjištěno zvýšení antioxidačního potenciálu plazmy způsobené GSE [25] a někdy ne [14].
2.2.4. Stanovení aktivit ALT a AST
Oxidační stres souvisí se ztrátou funkční integrity membránové architektury způsobenou zvýšenou peroxidací lipidů. Zvýšená permeabilita cytoplazmatické membrány zase vede k úniku jaterních markerových enzymů (ALT a AST) do krve [14]. ALT a AST jsou totiž diagnosticky významné i při omezeném poškození jater v důsledku intoxikace a jejich zvýšení v séru způsobené kadmiem bylo popsáno dříve [14] a bylo potvrzeno touto studií. Průměrná hodnota aktivity ALT (obrázek 4A) u experimentálních zvířat na začátku experimentu byla 0,84 µkat/l. Ve skupině užívající kadmium byl zaznamenán významný nárůst sledovaných hodnot na průměrně 1,52 µkat/l po 14 dnech (p < 0,001)="" a="" 1,87="" µkat/l="" po="" 28="" dnech="" (p="" {{="" 13}}.004).="" ve="" skupině,="" které="" byla="" gse="" podávána="" současně="" s="" kadmiem,="" byl="" nárůst="" tohoto="" markeru="" výrazně="" pomalejší="" než="" ve="" skupině,="" která="" dostávala="" pouze="" kadmium="" (1,23="" µkat/l="" po="" 14="" dnech="" a="" 1,92="" µkat/l="" po="" 28="" dnech).="" po="" 14="" dnech="" experimentu="" se="" tato="" skupina="" lišila="" jak="" od="" kontrolní="" skupiny="" (p="0,009)," tak="" od="" kadmiové="" skupiny="" (p="0,026)," zatímco="" po="" 28="" dnech="" se="" významně="" lišila="" pouze="" z="" kontrolní="" skupiny="" (p="0.003)." ve="" skupině="" dostávající="" pouze="" gse="" se="" hodnoty="" také="" zvýšily="" na="" 1,17="" µkat/l="" po="" 14="" dnech.="" tato="" hodnota="" se="" významně="" lišila="" od="" kontrolní="" skupiny="" (p="0,024)" a="" byla="" srovnatelná="" s="" hodnotou="" skupiny="" dostávající="" gse="" i="" kadmium.="" po="" 28="" dnech="" se="" hodnoty="" skupiny="" pouze="" s="" gse="" podobaly="" kontrolní="">
Průměrná hodnota obsahu AST (obrázek 4B) u experimentálních zvířat na začátku experimentu byla 2,07 ukat/l. Ve skupině užívající kadmium bylo statisticky významné zvýšení pozorovaných hodnot zaznamenáno až po 28 dnech experimentu (3,52 µkat/L, p=0,001). Překvapivě ve skupině, které byl GSE podáván společně s kadmiem, bylo zvýšení tohoto markeru rychlejší a významně odlišné od kontrolní skupiny po 14 dnech a 28 dnech (2,67 a 2,84 µkat/l, p {{15 }}.043 pro oba), ačkoli hodnota byla po 28 dnech o něco nižší než u skupiny obsahující pouze kadmium. Varianta pouze s GSE měla normální hodnoty.

V našem experimentu bylo podávání GSE schopno zpomalit nárůst aktivity ALT. Tento účinek odpovídá výsledkům uvedeným dříve [14] a může být způsoben vychytáváním peroxidů lipidů přenosem vodíku z fenolické sloučeniny na peroxid lipidů obsahující volné radikály. Na druhou stranu z dlouhodobého hlediska byl tento efekt nízký. Nárůst aktivity AST způsobený kadmiem byl spíše urychlen podáváním GSE. Z dlouhodobějšího hlediska však došlo k mírnému poklesu aktivity AST. GSE tak může částečně kompenzovat toxický účinek Cd na buněčné membrány.
2.2.5. Stanovení SOD a CAT aktivit v játrech
Kromě přímé účasti na oxidačních reakcích inhibuje kadmium aktivitu antioxidačních enzymů jako SOD a CAT, enzymů schopných detoxikovat superoxidové radikály, respektive peroxid vodíku [14]. SOD je enzym, který účinně zháší superoxidový radikál a přeměňuje jej na méně toxický peroxid vodíku, který může být dále rozkládán katalázou nebo peroxidázou [26]. CAT je enzym, který se nachází téměř ve všech živých organismech, které jsou vystaveny kyslíku. Působí jako katalyzátor rozkladu peroxidu vodíku na vodu a kyslík [27]. Má jedno z nejvyšších konverzních čísel mezi enzymy [28] a jako antioxidační enzym je jedním z ochranných mechanismů, které vedou k udržení rovnováhy v lidském těle [29]. Mechanismus Cd-indukovaného poklesu enzymových aktivit je pravděpodobně přímá vazba Cd na aktivní místa enzymů [30].
V této studii byly také pozorovány poklesy aktivit SOD a CAT. Na začátku experimentu byla průměrná aktivita enzymu SOD v játrech (obrázek 5A) experimentálních zvířat 18,4 U/mg proteinu. Po 14 dnech experimentu byla aktivita SOD významně vyšší ve skupině dostávající GSE (21,1 U/mg) než v obou skupinách, které dostávaly kadmium (p < 0.001="" a="" p="" {{{{101}="" 9}}.009="" pro="" skupiny="" obsahující="" pouze="" kadmium="" a="" kadmium="" s="" gse,="" ale="" pouze="" ve="" skupině="" dostávající="" kadmium="" samotné="" byla="" aktivita="" sod="" významně="" nižší="" (16,7="" u/mg)="" než="" v="" kontrolní="" skupině="" (p="0" .005).="" po="" 28="" dnech="" experimentu="" se="" obě="" skupiny="" přijímající="" kadmium="" významně="" lišily="" od="" kontrolní="" skupiny="" (16,4="" u/mg,="" p="0,002" a="" 17,6="" u/mg,="" p="0,023" pro="" kadmium="" pouze="" kadmium="" a="" kadmium="" s="" gse,="" v="" tomto="" pořadí)="" a="" skupina="" léčená="" pouze="" gse="" (p="">< 0,001="" a="" p="0,005" pouze="" pro="" kadmium="" a="" kadmium="" s="" gse,="" v="" tomto="">

Na začátku experimentu byla průměrná aktivita enzymu CAT v játrech (obrázek 5B) 32,7 U/mg proteinu. Po 14 dnech experimentu byla aktivita CAT významně vyšší ve skupině dostávající GSE (33,5 U/mg) než v obou skupinách dostávajících kadmium (p=0,002 a p=0,031 pro skupiny obsahující pouze kadmium a kadmium s GSE, ale pouze ve skupině dostávající kadmium samotné byla aktivita CAT významně nižší (23,8 U/mg) než v kontrolní skupině (p=0,005). Po 28 dnech se však aktivita CAT ve skupině dostávající GSE spolu s kadmiem dále snížila na 27,1 U/mg, dosáhla hodnot skupiny obsahující pouze kadmium (25,8 U/mg) a významně se lišila od kontrolní skupiny (p { {21}}.033). Skupina léčená pouze GSE se významně lišila od obou skupin s kadmiem (p=0,026 a p=0,012 pouze pro kadmium a kadmium s GSE, v daném pořadí). Je zajímavé, že poklesy způsobené kadmiem byly zpomaleny současným podáváním GSE. U CAT byly tyto účinky GSE pozorovány již dříve [14]. Chelatační účinek fenolických sloučenin obsažených v GSE pravděpodobně snižuje schopnost kadmia vázat se na aktivní místo enzymu.
2.2.6. Stanovení obsahu MT
Kadmium nepodléhá žádným přímým metabolickým přeměnám, ale ve všech tkáních je vázáno především na metalothionein (MT). MT patří do skupiny intracelulárních, nízkomolekulárních proteinů bohatých na cystein s molekulovou hmotností 6–10 kDa. Mezi primární role MT v organismu patří udržování homeostázy zinku, detoxikace těžkých kovů a ochrana před oxidativním stresem. Exprese MT je indukovatelná mnoha exogenními a endogenními faktory, jako je UV záření, těžké kovy, stresové hormony, volné kyslíkové radikály, mediátory zánětu, infekce, traumatu a onkogeneze [31,32]. MT je z velké části syntetizován v játrech aledvinaa uvolňuje se do krve. I když je MT odpovědný za akumulaci kadmia v tkáních snížením jeho vylučování, MT chrání před akutní i chronickou toxicitou vyvolanou Cd [33]. V naší studii byl obsah MT sledován v krvi, játrech aledvina.
Průměrná hodnota obsahu MT v krvi (obrázek 6A) pokusných zvířat na začátku experimentu byla 23,9 nmol/g. Po 14 dnech byly změny minimální a po 28 dnech byla pozorována velká variabilita mezi replikáty, což způsobilo statistickou neprůkaznost (p=0,948). Střední hodnota obsahu MT proledviny(obrázek 6B) experimentálních zvířat na začátku experimentu byla 21,46 nmol/g. Hodnoty se v průběhu experimentu významně nezměnily v žádné experimentální skupině (p=0,938). Průměrná hodnota obsahu MT v játrech (obrázek 6C) pokusných zvířat na začátku experimentu byla 17,15 nmol/g. Po 14 dnech se obsah MT mírně zvýšil ve všech experimentálních skupinách a rozdíly od kontrolní skupiny byly významné pro skupinu obsahující pouze Cd a skupinu obsahující pouze GSE (p=0,008 a p=0 0,046). Po 28 dnech se obsah MT ve skupině GSE vrátil na hodnotu kontrolní skupiny, zatímco obsah MT ve skupině Cd zůstal zvýšený a lišil se jak od kontrolní skupiny, tak od skupiny GSE (p=0,046 a p=0.035). Ve skupině, která dostávala GSE spolu s kadmiem, se obsah MT významně nelišil od kontroly – což bylo v souladu s nižším obsahem kadmia zjištěným v játrech této skupiny – ve srovnání se skupinou obsahující pouze Cd (rozdíl byl významný po 28 dní experimentu).
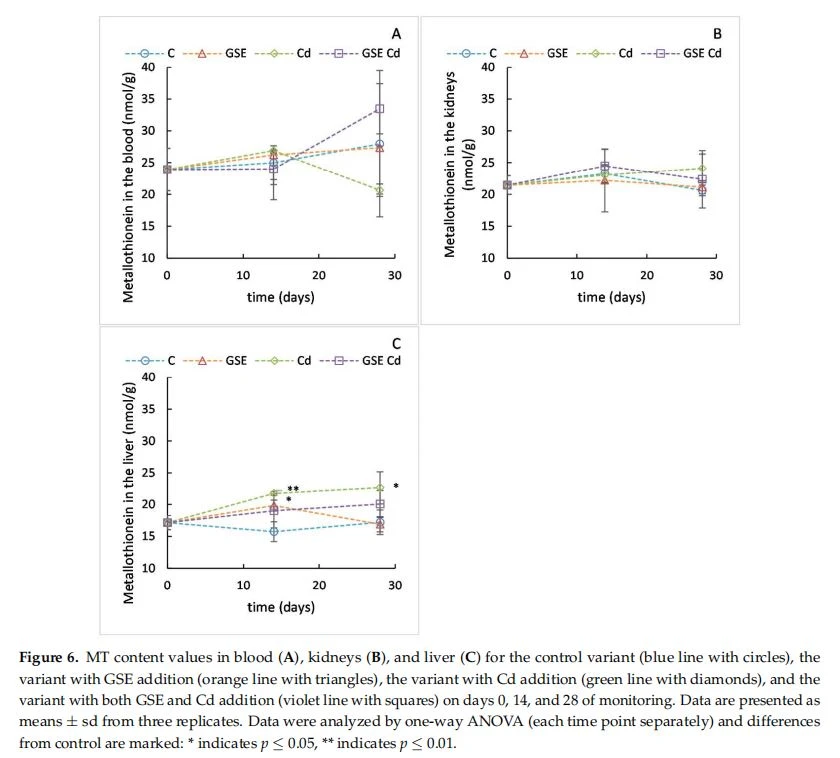
Celkově byly statisticky významné změny v obsahu MT způsobené Cd pozorovány pouze v játrech. Dříve bylo hlášeno zvýšení MT v krvi experimentálních zvířat, která dostávala kadmium [34]. V tomto případě výsledky naznačují, že k detoxikaci Cd prostřednictvím MT může docházet spíše v játrech.
3. Materiály a metody
3.1. Návrh experimentuHnědí krysy rodu Wistar (8 týdnů staré, 235 ± 3 g) byly rozděleny do čtyř skupin po šesti jedincích: A) kontrolní skupina krys dodržujících běžnou stravu (n=6); B) skupina krys, do jejichž stravy byl přidán GSE (200 mg GSE/den) (n=6); C) skupina dostávající kadmium (2 mg Cd/den – konkrétně CdCl2 rozpuštěný ve vodě) (n=6); a D) skupina, která dostávala dietu obsahující kadmium (2 mg Cd/den), ke kterému byl přidán GSE (200 mg GSE/den) (n=6). Extrakt byl odebrán ze semen odrůdy vinné révy Cerason; jeho příprava a charakterizace jsou popsány v části 3.2. (Extrakt ze semen vinné révy). Extrakt byl denně vážen v dávce 200 mg před podáním experimentálním hnědým krysám (200 mg GSE na každou krysu; 0,85 g/l kg tělesné hmotnosti). GSE byl podáván s vodou. Krysám byly podávány vlhké krmné směsi a nezávadná (kojenecká) voda ad libitum. Jednou týdně byla zvířatům vyměněna podestýlka. Po 14 a 28 dnech experimentu byla tři zvířata z každé skupiny usmrcena a jejich krev byla odebrána srdeční punkcí. Před odběrem byla intraperitoneální medikace přiřazena Fraxiparin (0,01 ml/kg) a poté byl zvířatům podán diethylether v inhalační anestezii. Vzorek krve byl poté odebrán do heparinem potažených mikrozkumavek (nebo zkumavek s EDTA – pro analýzy MT a kadmia; bez následné centrifugace) a poté následovala šetrná centrifugace (800 g/10 min) a odběr krve plazma pro další analýzu. Játra a právoledvinabyly extrahovány pro další analýzu. Studie byla provedena v souladu s Helsinskou deklarací a protokol byl schválen Odbornou komisí pro zajištění welfare experimentálních zvířat Mendelovy univerzity v Brně (pro projekt IGA-ZF/2016-AP011).
3.2. Extrakt ze semen vinné révy
Semena vinné révy (odrůda Cerason – Merlot × Seibel 13 666) byla vytříděna, vyčištěna, vysušena a rozemleta. Třídění probíhalo přes matoliny na separačním stroji, kde se oddělovala semena od slupek. Takto oddělená semena byla následně opláchnuta, prázdná semena odstraněna a zbývající semena vyčištěna. Očištěná a promytá semena byla sušena v sušičce při 50 °C po dobu 12 hodin. Následovalo mletí semen pomocí laboratorního mlýnku IKA MF 10 Basic (IKA Werke, Staufen im Breisgau, Německo). Mletá semena byla extrahována v 75% etanolu po dobu 120 h (22 ◦C, třepáno při 50 ot./min; IKA KS 260 Basic, výrobce: IKA Werke, Staufen im Breisgau, Německo) v poměru jeden díl mletých semen k deseti dílům ethanolu (m/m). Poté byl extrakt umístěn do 25ml zkumavek (Eppendorf, Hamburg, Německo) a centrifugován (Hettich MIKRO 220 Centrifuge; Hettich, Vestfálsko, Německo) při 4 ◦C a RCF 25,000×g. Ze zkumavky byl odebrán odstředěný vzorek a přenesen do destilační baňky vakuové odparky (IKA RV 10 digital VC; IKA Werke, Staufen im Breisgau, Německo), kde se odpařil ethanol. Odpařování probíhalo ve vakuu při 90 ◦C a extrakt byl přenesen do Petriho misek a lyofilizován ve vakuu při 53 ◦C (lyofilizátor Heto PowerDry PL 3000; Trigon-plus, Čestlice, Česká republika). Po přípravě byl extrakt podáván pokusným zvířatům.
CISTANCHE ZLEPŠÍ INFEKCI LEDVIN/RENÁL
3.3. Stanovení antioxidační aktivity a celkového obsahu polyfenolů
Aby byla zajištěna objektivita výsledků, byly ke stanovení antioxidační aktivity použity čtyři zásadně odlišné metody. Vzorky byly analyzovány na automatickém spektrofotometru BS-400 (Mindray, Shenzen, Čína). Všechny vzorky byly analyzovány trojmo, výsledná hodnota odpovídala průměru těchto měření. Tyto analýzy byly provedeny podle Sochora et al. [35].
3.3.1. Stanovení antioxidační aktivity metodou ABTS
Roztok pro stanovení antioxidační aktivity testem ABTS byl připraven smícháním dvou roztoků – roztoku 1:7 mM roztoku ABTS připraveného navážením m=9,60 mg na 5 ml destilované vody; a roztok 2: 4,95 mM roztok persíranu draselného připravený navážením m=1,67 mg na 5 ml destilované vody. Výsledný roztok byl zředěn 1:10 destilovanou vodou a ponechán ve tmě a chladu po dobu 12 hodin. Poté bylo 150 ul činidla R1 (7 mM ABTS a 4,95 mM persíran draselný) napipetováno do plastových kyvet, následovalo přidání 3 ul vzorku a měřeno na spektrofotometru (λ=660 nm) po dobu 12 min. Podle kalibrační křivky byla absorbance převedena na ekvivalentní obsah kyseliny gallové; antioxidační aktivita byla vypočtena z kalibrační křivky s použitím kyseliny gallové jako standardu (10–200 mg·L1) a výsledky byly vyjádřeny jako ekvivalenty kyseliny gallové.
3.3.2. Stanovení antioxidační aktivity metodou DPPH
Nejprve bylo zváženo m {{0}},35 mg radikálu DPPH. Toto množství bylo převedeno do 250ml odměrné baňky a doplněno methanolem. Poté bylo 150 ul činidla R1 (0,095 mM DPPH) napipetováno do plastových kyvet a poté bylo přidáno 15 ul vzorku, který má být měřen. Test DPPH je založen na schopnosti stabilního volného radikálu 2,2-difenyl-1-pikrylhydrazyl reagovat s donory vodíku. DPPH vykazuje silnou absorpci ve spektru ultrafialové viditelné spektroskopie (UV-VIS). Absorbance byla měřena po dobu 12 minut při λ=505 nm. Podle kalibrační křivky byla absorbance převedena na ekvivalentní obsah kyseliny gallové.
3.3.3. Stanovení antioxidační aktivity pomocí metody železité redukční antioxidační síly
Ke stanovení antioxidační aktivity pomocí metody FRAP (feric reduction antioxidant power) byly použity tři roztoky – (1) roztok TPTZ: 10 mM TPTZ (m=78,02 mg) rozpuštěný ve 25 ml 40 mM HC1; (2) roztok FeCl3: 20 mM FeCl3 (m=135,13 mg) rozpuštěný ve 25 ml destilované vody; a (3) roztok acetátového pufru: 0,02 M acetátový pufr pH 3,6 (m=775 mg octanu sodného rozpuštěného ve 250 ml destilované vody, pH upraveno kyselinou octovou). Tyto tři roztoky byly smíchány v poměru 1:1:10 (TPTZ:FeCl3:acetátový pufr). Poté bylo 150 ul činidla napipetováno do plastových kyvet a byly přidány 3 ul vzorku. Absorbance byla měřena po dobu 12 minut při λ=605 nm. Antioxidační aktivita byla vypočtena z kalibrační křivky s použitím kyseliny gallové jako standardu (10–200 mg·L1). Výsledky byly vyjádřeny jako ekvivalent kyseliny gallové.
3.3.4. Stanovení antioxidační aktivity metodou volných radikálů chlorofylu
Do plastových kyvet bylo odpipetováno celkem 200 ul činidla R1 (0,1 M HCl, chlorofylový extrakt, reakční pufr, katalyzátor) a poté bylo přidáno 8 ul vzorku. Tato metoda využívá schopnosti chlorofylinu (sodno-měděná sůl chlorofylu) přijímat a darovat elektrony při stabilní změně absorpčního maxima. Tento proces je podmíněn alkalickým prostředím a přídavkem katalyzátoru. Absorbance byla měřena po dobu 12 minut při λ=450 nm. Pro výpočet byly použity poslední naměřené hodnoty. Výsledky byly vyjádřeny jako ekvivalent kyseliny gallové.
3.3.5. Stanovení celkové koncentrace polyfenolů
Ke stanovení celkových polyfenolických sloučenin byla použita metoda Folin–Ciocalteu. Všechny vzorky byly analyzovány trojmo a výsledná hodnota byla získána jako průměr těchto měření. Vzorek o objemu 40 ul byl napipetován do kyvety (3 ml) a zředěn 1960 ul destilované vody. Následně bylo do kyvety přidáno 50 µl Folin-Ciocalteuova činidla. Směs byla důkladně protřepána a po 3 minutách bylo přidáno 300 ul 20% roztoku dekahydrátu Na2C03. Reakční směs byla třepána a inkubována při 22 °C po dobu 120 minut. Po této době byla měřena absorbance (SPECORD 210; Carl-Zeiss, Jena, Německo) při λ=750 nm proti slepému pokusu. Výsledky byly vyjádřeny jako ekvivalent kyseliny gallové.
3.4. Stanovení antioxidantů pomocí HPLC
Stanovení jednotlivých antioxidačních složek pomocí vysoce výkonné kapalinové chromatografie s hmotnostním spektrometrem. Analýzy vzorků použitých pro odhad flavonoidů a proanthokyanů byly provedeny v chromatografickém systému Agilent Technologies 12{{1{13}}}}0 (Jet Stream Technologies, Santa Clara, CA, USA) sestávajícím z následující zařízení: zásobníky mobilní fáze, odplyňovač, binární čerpadlo, zásobník vzorku s automatickým vzorkovačem a hmotnostní detektor s Agilent 6460 Triple Quadrupole LC/MS (Jet Stream Technologies, Santa Clara, CA, USA). Separace vzorků byla provedena na chromatografických kolonách Zorbax SB C18 o rozměrech 50 × 2,1 mm a velikosti částic 2,7 µm. Doba analýzy byla vždy 6 minut. Druhá rychlost nosného plynu byla 0,6 ml.min1. Organickou složkou mobilní fáze byl gradient methanolu (rozpouštědlo B) a vodná složka obsahovala 0,05 M mravenčan amonný (rozpouštědlo A). Gradient pohyblivé fáze byl následující: čas 0 min: 50 procent rozpouštědla A a 50 procent rozpouštědla B; čas 2,5 min: 100 procent rozpouštědla A a 0 procent rozpouštědla B; čas 5 min: 50 procent rozpouštědla A a 50 procent rozpouštědla B. Teplota termostatu kolony byla nastavena na 45 °C.

CISTANCHE ZLEPŠÍ BOLESTI LEDVIN/RENÁL
3.5. Stanovení vybraných biochemických markerů
Biochemické markery v krvi, plazmě, játrech aledvinaZvířata byla sledována za účelem stanovení ochranného účinku GSE proti negativním účinkům kadmia. Byly provedeny následující analýzy: (1) Plazmatické analýzy: celková plazmatická antioxidační aktivita, kreatinin, močovina, ALT, AST. (2) Krevní rozbory: MT. (3) Jaterní analýzy: SOD, CAT, MT. (4)ledvinyanalýzy: MT.
3.5.1. Stanovení celkové plazmatické antioxidační aktivity,Kreatinin, Urea, ALT a AST A BS {{0}} automatický biochemický analyzátor (Mindray, Shenzen, Čína) byl použit k analýze celkové antioxidační aktivity plazmy, kreatininu, močoviny, ALT a AST. Stanovení celkové antioxidační aktivity plazmy Ke stanovení antioxidační aktivity plazmy byla použita metoda volných radikálů [35]. Tato metoda využívá schopnosti chlorofylinu (sodno-měděná sůl chlorofylu) přijímat a darovat elektrony při stabilní změně absorpčního maxima. Tento proces je podmíněn alkalickým prostředím a přídavkem katalyzátoru. Do plastových kyvet bylo odpipetováno celkem 200 ul činidla R1 (0,1 M HCl, chlorofylinový extrakt, reakční pufr a katalyzátor), načež bylo přidáno 8 ul vzorku. Absorbance byla měřena po dobu 12 min při λ=450 nm a pro výpočet byla použita poslední naměřená hodnota. Antioxidační aktivita byla vypočtena z kalibrační křivky s použitím kyseliny gallové jako standardu a výsledky byly vyjádřeny jako ekvivalent kyseliny gallové.
Stanovení obsahu kreatininuPrincipem metody je fotometrické stanovení barevného komplexu kreatininu s alkalickým pikrátem, jehož rychlost tvorby je úměrná koncentraci kreatininu ve vzorku. Ke stanovení kreatininu byla použita diagnostická souprava od Greiner (Greiner GmbH, Pleidelsheim, Německo). Do kyvety bylo napipetováno celkem 180 ul činidla R1 (0,16 mM hydroxid sodný), poté bylo přidáno 10 ul vzorku a 30 ul činidla R2 (4 mM kyselina pikrová). Absorbance byla měřena po dobu šesti minut při λ=505 nm. Pro výpočet byla použita hodnota absorbance samotného činidla R1 se vzorkem a hodnota absorbance po 6 minutách inkubace s činidlem R2.
Stanovení alaninaminotransferázyKe stanovení ALT byla použita diagnostická souprava od Greiner (Greiner GmbH, Pleidelsheim, Německo). Nejprve bylo do kyvet automaticky napipetováno 150 ul činidla R1 (100 mM Tris pufr pH 7,5; 500 mM L-alanin, 1200 U/L laktátdehydrogenázy) a 15 ul vzorku plazmy. Následně bylo automaticky odpipetováno 30 ul činidla R2 (15 mM 2-oxoglutarát, 0,18 mM NADH) a směs byla inkubována po dobu 5 minut. Absorbance byla měřena při A=340 nm. Pro výpočet byly použity hodnoty absorbance samotného činidla R1 se vzorkem a hodnoty absorbance po 5 minutách inkubace se vzorkem. Výsledek byl převeden podle kalibrační křivky na aktivitu enzymu v ukat/l.
Stanovení aspartátaminotransferázyKe stanovení AST byla použita diagnostická souprava od Greiner (Greiner GmbH, Pleidelsheim, Německo). Nejprve bylo do kyvet automaticky napipetováno 150 ul činidla R1 (80 mM Tris pufr pH 7,8, 240 mM L-aspartát, 1200 U/L malátdehydrogenázy) a 15 ul vzorku plazmy experimentálních zvířat. Následně bylo provedeno míchání a inkubace při 37 ◦C po dobu 270 s. Dále bylo automaticky odpipetováno 30 ul R2 činidla (15 mM 2-oxoglutarát, 0,18 mM NADH) a směs byla inkubována po dobu 5 minut. Absorbance byla měřena při A=340 nm. Pro výpočet byly použity hodnoty absorbance samotného činidla R1 se vzorkem a hodnoty absorbance po 5 minutách inkubace se vzorkem. Výsledek byl převeden podle kalibrační křivky na aktivitu enzymu v ukat/l.
Stanovení močovinyKe stanovení močoviny byl použit následující postup: 200 µl činidla R1 (Tris pufr pH 7,8, ADP, ureáza a GLDH) a 200 µL činidla R2 (2-oxoglutarát, NADH) bylo automaticky napipetováno do kyvet, následoval vzorek o objemu 4 µl, poté byla směs promíchána a inkubována při 37 ◦C po dobu 30 sekund. Následně byla změřena absorbance při λ=340 nm a po dalších 60 s byla změřena absorbance znovu. Pro výpočet byly použity hodnoty absorbance po 30 s a po dalších 60 s. Hodnoty byly od sebe odečteny a výsledek byl převeden podle kalibrační křivky na obsah močoviny.
Stanovení celkových proteinů pomocí biuretové metodyStanovení celkových proteinů Biuretovou metodou je podrobně popsáno v jiné publikaci [9]. Do kyvety bylo odpipetováno celkem 180 ul Biuretova činidla (15 mM vínanu sodnodraselného, 100 mM NaI, 5 mM KI a 5 mM CuS04) a následně 45 ul vzorku. Po deseti minutách inkubace při 37 °C byla změřena absorbance při vlnové délce λ=546 nm. Principem je zde reakce peptidové vazby s Cu (II) v alkalickém prostředí za vzniku modrofialového zbarvení. Pro výpočet byla použita hodnota absorbance samotného činidla a hodnota absorbance po deseti minutách inkubace se vzorkem.
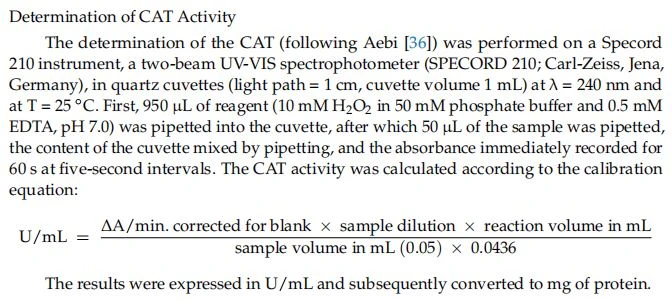
3.5.2. Stanovení superoxiddismutázy (SOD) a katalázy (CAT) Stanovení aktivity SOD, Komerční souprava (19160 SOD, Merck KGaA, Darmstadt, Německo) byla použita ke stanovení aktivity SOD (SOD, EC 1.15.1.1). Měření bylo provedeno v plastové kyvetě na automatickém analyzátoru BS 400 (Mindray, Shenzen, Čína). Nejprve bylo do kyvety napipetováno 200 µl činidla R1 (20× pufrem zředěný roztok WST) a činidlo bylo inkubováno při 37 °C po dobu 108 s (1 min, 48 s). Poté bylo odpipetováno 20 ul vzorku a po 378 s (6 min, 18 s) byla reakce zahájena přidáním 20 ul činidla R2 (167x pufrem zředěný enzymový roztok). Směs byla inkubována po dobu 72 s (1 min, 12 s) a poté byla měřena absorbance při λ=450 nm. Reakční kinetika byla měřena po dobu 180 s (3 min) a absorbance byla odečítána každých devět sekund. Přístroj vypočítal průměrný nárůst absorbance za minutu (∆A) a aktivitu SOD měřených vzorků podle kalibrační rovnice. Výsledky byly vyjádřeny v U/ml a následně převedeny na mg proteinu.
3.5.3. Stanovení obsahu metalothioneinuStanovení koncentrace metalothioneinu v krvi, játrech aledvinyhnědých krys byla provedena pomocí adsorpční přenosové stripovací techniky (AdTS) s diferenciální pulzní voltametrií (DPV). Pro analýzu byly odebrány 200 µL analyzovaného supernatantu a smíchány s 1 800 µL Brdičkova činidla v odměrné nádobě, načež bylo provedeno vlastní elektrochemické stanovení. Test byl proveden v souladu s dříve popsaným protokolem [37]. Bylo použito klasické tříelektrodové zapojení. Pracovní elektrodou byla závěsná rtuťová kapková elektroda (HMDE) s plochou kapky 0,4 mm2, referenční elektrodou byl Ag/AgCl/3 M KCl a pomocnou elektrodou platinová elektroda. Základní elektrolyt (1 mmol·L1 [CO(NH3)6]Cl3 a 1 mol·L1 amoniového pufru; NH3(aq) plus NH4Cl, pH 9,6) byl vyměněn pro každý měřený vzorek. Parametry DPV byly následující: počáteční potenciál 0,7 V, konečný potenciál 1,75 V, bublání 5 s, doba depozice 240 s, doba modulace 0.0 5 s, čas intervalu 0,25 s, potenciální krok 0,00105 V, rychlost skenování 0,0042 V/s a amplituda modulace 0,02505 V. Stanovení MT bylo provedeno na měřicím zařízení sestávajícím z autosampleru 695 připojeného k měřicí jednotce VA Stand 693 a řízeného pomocí řídicí jednotky TraceAnalyser 693 VA (vše Metrohm, Herisau, Švýcarsko). Celý měřicí systém byl ochlazen na 4 ◦C pomocí Julabo F25 (Julabo, Seelbach, Německo). Získané voltamogramy byly exportovány do programu VA Database 2.2 (Metrohm, Herisau, Švýcarsko) a analyzované vzorky byly deoxygenovány aktivním probubláváním argonu o čistotě 99,999 procent.
3.5.4. Stanovení obsahu kadmia v krvi, játrech a ledvinách rozklad vzorků Mikrovlnný extraktor Ethos One (Milestone, Sorisole, Itálie) byl použit pro rozklad jater aledvinavzorky a pro rozklad vzorků krve byl použit mikrovlnný extraktor Multiwave 3{6}}00 (Anton Paar Graz, Rakousko). Mineralizace probíhala mokrou cestou za použití 65% kyseliny dusičné (HNO3 supra čistá) (Merck KGaA, Darmstadt, Německo) a 30% peroxidu vodíku (H2O2 supra čistá) (Merck KGaA, Darmstadt, Německo) Celkem 0,4 g játra popřledvinaVzorek byl navážen do řady teflonových nádob a ke vzorku bylo přidáno 5 ml 65% HNO3, 3 ml 30% H2O2 a 2 ml Milli Q H2O. Nádoby byly uzavřeny a přístroj spuštěn podle pokynů výrobce. Mikrovlnný rozklad trval 40 minut při 210 ◦C. Následně byly vzorky chlazeny po dobu 45 minut a skladovány při 4 ◦C v PE nádobách. Celkem 0,01 g vzorku krve bylo naváženo do série skleněných nádob a ke vzorku bylo přidáno 300 ul 65% HNO3 a 200 ul 30% H2O2. Nádoby byly uzavřeny a přístroj spuštěn podle pokynů výrobce. Mikrovlnný rozklad trval 40 minut při teplotě 140 ◦C. Následně byly vzorky chlazeny 45 min a skladovány při 4 ◦C až do stanovení pomocí AAS.
Stanovení kadmia atomovou absorpční spektrometriíKadmium bylo stanoveno na zařízení Agilent 280/240 Series AA Systems (Agilent Technologies). Játra aledvinavzorky byly analyzovány v plameni acetylen-vzduch (Fa AAS) a vzorky krve elektrotermální atomizací (ETA AAS) při vlnové délce 228,8 nm. Ze standardního roztoku kadmia (Analytika Praha, Praha, Česká republika), s koncentrací 1.000 ± 0,002 g·L1. Následovalo měření roztoků kalibračních sérií a sestrojení kalibračních křivek, po kterých proběhla mineralizace krve, jater, popř.ledvinavzorky byly měřeny.
3.6. Statistická analýzaVšechna měření byla provedena trojmo. Odlehlé hodnoty byly identifikovány Grubbsovým testem a vyloučeny (celkem byly nalezeny dvě odlehlé hodnoty). Před statistickou analýzou byla data transformována logaritmickou transformací a analyzována jednocestnou ANOVA (každý časový bod samostatně) s Tukey HSD post-hoc testem. Práh statistické významnosti byl nastaven jako p <>

4. závěr
V poslední době existuje farmaceutický a ekonomický trend hledat nová léčiva mezi sekundárními metabolity rostlin, což jsou látky, které mohou pomoci chránit před řadou nemocí. Díky důležitým biologicky aktivním složkám, které semena révy vinné obsahují ve své matrici, mohou být (a již jsou) využívána pro lékařské účely. Je známo, že extrakty z hroznových jader chrání tkáně před poškozením souvisejícím s oxidačním stresem způsobeným toxickým těžkým kovem kadmiem. Tato ochrana je pravděpodobně ovlivněna fenolickým složením použitých hroznových semen. V této studii byl extrakt z hroznových jader připravený z polorezistentní odrůdy Cerason s poměrně vysokým obsahem fenolů testován na ochranné účinky proti změnám vyvolaným kadmiem. Studovaný GSE byl schopen zvýšit antioxidační aktivitu v plazmě při samostatném podávání a snížit obsah kadmia v játrech aledvinykrys při společném podávání. V souladu s tím zvýšení jaterního markerového enzymu ALT aledvinamarker kreatinin způsobený kadmiem byly GSE zpomaleny. Kromě toho poklesy aktivit antioxidačních enzymů SOD a CAT způsobené kadmiem byly zpomaleny současným podáváním GSE. Tyto výsledky ukazují, že GSE je silný ochranný prostředek proti účinkům těžkých kovů.