Účinek extraktů z Cistanche Tubulosa na samčí reprodukční funkci u diabetických potkanů indukovaných streptozotocinem-nikotinamidem
Jun 17, 2022
klíčová slova:diabetes; neplodnost;Cistanche tubulosavýpis(CTE);echinakosid(ECH);protizánětlivéaktivita;antioxidantaktivita;steroidogenezeefekty

Pro více informací o výhodách prášku z cistanche extraktu
1. Úvod
Diabetes mellitus (DM) je stav, při kterém dochází ke zvýšené hladině glukózy v krvina neefektivnost slinivky břišní při produkci dostatečného množství inzulínu nebo na neschopnost těla jej využítúčinně. Podle WHO vzrostl počet lidí s diabetem ze 108 milionů v roce 1980na 422 milionů v roce 2014 [1]. Existují čtyři hlavní kategorie: prediabetes (stadium před cukrovkou), typ 1(kde slinivka nedokáže produkovat inzulín), typ 2 (tělo nedokáže využít inzulín) a gestačnídiabetes (který se vyskytuje během těhotenství). Oxidační stres vzniká v důsledku nerovnováhy meziprodukce reaktivních forem kyslíku (ROS) a antioxidantů [2] nakonec vede k diabetickému stavu.Mezi komplikace diabetu patří selhání ledvin, poškození nervů, slepota, mrtvice, srdceútok, smrt plodu a neplodnost. [1]. Studie ukazují, že jádra spermií, deoxyribonukleová kyselina (DNA),a mitochondrie byly významně poškozeny u pacientů s cukrovkou [3]. Oxidační stres běhemtransport spermií změní proces mužského reprodukčního systému [4,5].
Proces spermatogeneze je řízen hypotalamus-hypofýza-gonadální (HPG)osa. Hormon uvolňující gonadotropin (GnRH) produkovaný hypotalamem stimulujeprodukce luteinizačního hormonu (LH) a folikuly stimulujícího hormonu (FSH). Leydigovy buňky byly nalezenysousedí se semenným tubulem a produkují testosteron pod kontrolou LH. spouštěče FSHprodukce proteinu vázajícího antigen (ABP), který pomáhá předat mužský hormon. Tedy neplodnosta další problémy vznikají hlavně kvůli poruchám, které se vyskytují v ose HPG. Správakombinace streptozotocin-nikotinamid indukuje diabetes u experimentálních potkanů. streptozotocinje chemická sloučenina toxická pro produkci inzulínu buňky ve slinivce břišní a nikotinamid je ave vodě rozpustný vitamín, který chrání buňky před úplným poškozením [6]. Cistanche tubulosaje pouštní rostlinný druh známý také jako "Rou Cong-Rong" [7]. Je to anechlorofylní parazitická rostlina, která roste hlavně na kořeniCalotropis procerastrom a ješiroce rozšířený ve vyprahlé zemi Gansu, Qinghai, Xinjiang, Mongolsko, Írán a Indie. BěžnýjménoCistanche tubulosaje "Pouštní hyacint". Je široce přijímán v čínské tradiční medicíněa dostal jméno "Ženšen pouště". Je široce používán v lékařstvíléčit morbidní leukoreu, profuzní metroragii, chronická onemocnění ledvin, zácpu, impotenci aneplodnost. Chemické složkyCistanche tubulosasestávají z netěkavých fenylethanoidových glykosidů(PHG), iridoidy, lignany, těkavé oleje, alditoly, oligosacharidy a polysacharidy [8]. Studieukazují, že echinakosid z této byliny chrání poškozené fibroblasty regulací hladin ROS [9]. Tato sloučenina má antioxidační, vazorelaxační a protizánětlivé účinkyneuroprotekce a prevence osteoporózy [10,11]. Tato studie byla zaměřena na zkoumání účinkuCistanche tubulosavýpisobsahující ECH nareprodukční dysfunkce diabetické krysy indukované streptozotocinem-nikotinamidem.
2. Materiály a metody
2.1. Materiály
ECH a CTE byly zakoupeny od Sinphar Pharmaceutical Co., Ltd (Yilan, Taiwan). Pokročilýkonečné produkty glykace (AGE) byly zakoupeny od Biovision (San Francisco, CA, USA). LC-540a TM3 buněčné linie byly zakoupeny od Food Industry Research and Development Institute(Hsinchu, Tchaj-wan). Pětitýdenní krysí samci Sprague-Dawley (SD) byli zakoupeni od společnostiNárodní centrum laboratorních zvířat (Taipei, Taiwan). Krmná laboratorní strava® byl zakoupen od PMINutrition International, Inc. (Taipei, Taiwan). Byl získán 2,2-difenyl-1-pikrylhydrazyl (DPPH).ze Sigmy (St. Louis, MO, USA). Methanol a 4-(2-hydroxyethyl)-1-piperazinethansulfonovákyseliny (HEPES) byly také zakoupeny od Sigma. Dulbeccova modifikace Eagle medium/F12 atrypsin-EDTA byly získány od GIBCO (New York, NY, USA). 3-(4, 5-dimethylthiazol-2-yl)-2,5-difenyltetrazoliumbromid (MTT), dichlor-dihydro-flfluorescein diacetát (DCFH-DA), dimethylsulfoxid (DMSO) a nitrotetrazolium (NBT) byly zakoupeny od Sigma. Glukóza enzymatickásoupravy byly získány z Kyokutoseiyaku, Tokio, Japonsko. Byly zakoupeny soupravy pro inzulín ELISAod Mercodia AB Inc., Sylveniusgatan 8A (Uppsala, Švédsko). T-PER extrakce tkáňového proteinuČinidlo bylo získáno od Thermo Scientific (Chicago, IL, USA). Anti-human/myší/krysí nukleárnífaktor-kappa B NF-κB polyklonální protilátky byly zakoupeny od Santa Cruz Biotechnology, SantaCruz, CA, USA. Polyklonální anti-myší/krysí receptor pro koncové produkty pokročilé glykace (RAGE).protilátky, polyklonální protilátky anti-lidské/myší/krysí StAR a anti-lidské/myší/krysíMonoklonální protilátky proti cytochromu P450 17A1 byly zakoupeny od Gene Tex (Irvine, CA, USA).Polyklonální protilátky proti lidským/myším/krysím CYP11A1 byly získány od společnosti Cell SignalingTechnologie (Beverly, PA, USA). Činidlo easy-Blue bylo zakoupeno od společnosti Invitrogen, Thermo FisherVědecké (Carlsbad, CA, USA). Agaróza a DNA marker 100 bp byly získány od společnosti Promega,Corporation (Madison, WI, USA). RNeasy Lipid Tissue Mini Kit byla zakoupena od QIAGEN,Hilden, Německo.

5 procent CO2 inkubátor (CO2 inkubátor, Napco 5410, Tchaj-wan). Buněčná linie TM3 byla kultivována v Dulbecco'smodifikované Eagle médium (DMEM) doplněné glukózou (4,5 g/l), pyruvátem sodným (0,5 mM),L-glutamin (2,5 mM), hydrogenuhličitan sodný (1,2 g/l), 4-(2-hydroxyethyl)-1-piperazinethansulfonovákyselina (HEPES, 15 mM) a fetální telecí sérum (FCS, 10 procent) nebo koňské sérum (5 procent) při 37◦C v 5 procentechCO2 inkubátor.
Stanovení buněčné životaschopnosti echinakosidu (ECH): 3-(4, 5-dimethylthiazol-2-yl)-2,5-Pro test životaschopnosti buněk bylo použito činidlo difenyltetrazolium bromid (MTT). Koncentrace buněkbyla upravena na 2× 10⁵buněk / ml v 96-jamkové destičce. Poté, 20µL ECH (zředěno ve 2 procentech média)byl přidán a inkubován po dobu 24 hodin při 37 °C◦C v 5% CO2 inkubátor. Později, 100µL MTT činidla bylopřidán a inkubován po dobu 4 hodin při 37◦C za tmavých podmínek. Absorbance byla měřena při 570 nm(čtečka ELISA, Dynatech MR5000, Kloten, Švýcarsko).Relativní životaschopnost buněk ( procenta )=[(Avzorek při 570 nm− Ablank při 570 nm)]/[(Aovládání na 570− Aprázdné na 570)] × 100.
Analýza obsahu druhů reaktivního kyslíku (ROS):
Počet buněk byl upraven na2 × 105buněk/mlv 12-jamkové destičce obsahující 2 procenta FBS. Potom, 50µL/ml ECH, RES a AGEsbyly přidány na destičku a inkubovány při 37◦C po dobu 24 hodin. Po 24 hodinách, 20 ,70 -dichlorfluorescein-diacetát(DCFH-DA) byl přidán a inkubován při 37 °C◦C po dobu 30 min. Po odstředění (400× g, 5 minut),
a AGE byly přidány a inkubovány při 37◦C v 5% CO2 inkubátor po dobu 24 hodin. Po 400µL z T-PERbyly přidány, seškrábány z buněk a centrifugovány při 125,000× g po dobu 20 minut (4◦C). Supernatantbyla shromážděna a uložena na−80 ◦C (−80 ◦C mraznička, Nuaire, Plymouth, MN, USA) pro další analýzu.
Pro kvantifikaci proteinu byla použita souprava bicinchoninová kyselina (BCA). Potom, 10µL standardního kyvetového roztokua 200µL BCA činidla byly přidány do 8-jamkových destiček a inkubovány při 37 °C◦C v 5% CO2 inkubátorpo dobu 30 min. Absorbance byla měřena při 562 nm. Byla provedena analýza proteinové identifikaceelektroforézou na dodecylsulfátu sodného (SDS)-polyakrylamidovém gelu (SDS-PAGE). Vzorky bylypřipravené přidáním proteinového lyzátu do proteinového nanášecího pufru a byla provedena analýza western blotk detekci specifických proteinů.
2.2.2. Analýza in vivo
Návrh zvířecího modelu: Šedesát 4-týdenních samců krys Sprague–Dawley (SD) bylo zakoupeno odNárodní centrum laboratorních zvířat (Taipei, Taiwan). Každá krysa byla umístěna samostatně v dezinfekčním prostředkunerezové klece pod řízenou teplotou (23± 1 ◦C) a vlhkost (40–60 procent) po 12 hodináchcyklus světlo/12 h tma. Jídlo a voda byly poskytovány ad libitum. Každá krysa byla v prvním domestikovánatýden a jako hlavní dieta byla podávána laboratorní dieta pro hlodavce 5001. Všechny postupy se řídily standardemInstitucionálního výboru pro péči o zvířata a jejich použití (schválení IACUC č. 101026) národníhoTaiwan Ocean University, Taiwan. Po domestikaci byli potkani rozděleni do dvou skupin: kontrolnískupina (Con), která byla krmena laboratorní dietou 5001, a skupina diabetiků, která byla krmena dietou s vysokým obsahem tuku(HFD, 40 procent) za celý experiment. Poté, co byla 4 týdny krmena HFD, diabetická skupinakrysám byl injikován streptozotocin (65 mg/kg) (STZ) k vyvolání diabetes mellitus (DM). V rámci15 minut injekce STZ byl injikován nikotinamid (230 mg/kg tělesné hmotnosti). Týden po injekci,byl proveden orální glukózový toleranční test (OGTT) pro stanovení úspěšné indukce diabetuMellitus (DM). Poté byla zvířata rozdělena do šesti skupin: kontrolní (krmená laboratorní stravou5001); skupina DM (DM plus 45 procent HFD); skupina DMR (DM plus rosiglitazon: 0,571 mg/kg tělesné hmotnosti) plus 45 procent HFD;skupina DME1 (DM plus CTE: 80 mg/kg tělesné hmotnosti) plus 45 procent HFD; Skupina DME2 (DM plus CTE: 160 mg/kg tělesné hmotnosti)plus 45 procent HFD; a skupina DME4 (DM plus CTE: 320 mg/kg tělesné hmotnosti) plus 45 procent HFD. Rosiglitazon (RSG) bylbrát jako pozitivní kontrolu. Byly použity tři dávky CTE (80, 160 a 320 mg/kg) podledoporučení tchajwanského Úřadu pro kontrolu potravin a léčiv (TFDA) funkční zdravé potravinypokyny pro hodnocení. Léčba byla podávána až do konce experimentu. Všechny pokusné krysybyli utraceni po 6 týdnech. Krev byla odebrána krysám a byla centrifugována při 3000 ot./min15 minut ve 4◦C. Supernatant byl zkoumán pro následující analýzu:Celková glukóza, triglyceridy a cholesterol

Odhodlání:
Stanovení glukózy byloprováděné glukózovými enzymatickými soupravami. Poté, 20µK tomu bylo přidáno 1 vzorků krevní plazmyčinidel a udržuje se na 37◦C po dobu 5 min. Celková koncentrace triglyceridů a celkového cholesterolu bylastanoveno pomocí triglyceridových a cholesterolových enzymatických souprav. Potom, 10µL krevní plazmy bylypřidán k činidlům a experiment byl proveden podle pokynů výrobce.Absorbance byla měřena při 510 nm.Celková glukóza/triglycerid/cholesterol v plazmě (mg/dl)=(Avzorek− APrázdný)/(AStandard− APrázdný) × 200. Ukázka: Absorbance vzorků krve, APrázdný: Hodnota absorbance souprav bez vzorku, Standard: Hodnota absorbance standardního činidla, 200: standardní činidla v koncentraci200 mg/dl.Hodnocení inzulínu, leptinu a homeostatického modelu – stanovení inzulínové rezistence (HOMA-IR):Hladina inzulínu byla stanovena pomocí souprav inzulínové ELISA. Tady, 25µK tomu bylo přidáno l krevní plazmyreagencií a absorbance byla měřena při 450 nm. Celkový obsah leptinu byl stanoven pomocíleptinový enzym imunometrický test kit. Pak 100µL plazmy byly analyzovány a absorbancebyla měřena při 450 nm za použití čtečky ELISA. Celý experiment probíhal podlepokyny výrobce. Hodnota HOMA-IR byla stanovena z modelu homeostázyhodnotící rovnice=Plazmatická koncentrace inzulínu nalačno (mU/ml)× plazmatická glukóza nalačnokoncentrace (mmol/l)/22,5.Peroxidace lipidů v plazmě: Zde bylo 0,5 ml krevní plazmy smícháno s 1 ml činidla (15 procent,w/v kyseliny trichloroctové v {{0}},25N kyselině chlorovodíkové (HCl) a 0,375 procentech,w/v kyselina thiobarbiturová v0,25 N HCl) a umístí se do vodní lázně (Water Bath, BUCHI 461, Zürich, Švýcarsko) při 100◦C pro15 min. Po ochlazení byl přidán 1 ml n-butanolu, důkladně protřepán a odstředěn při 1500× g po dobu 10 min. Supernatant byl odebrán a absorbance byla měřena při 532 nm [12]. Koncentrace malondialdehydu (MDA) (nM/ml)=[(Vzorekpři 532 nm− Ablank při 532 nm)/ (Standardpři 532 nm− Ablank při 532 nm)] × 5. Stanovení hladin plazmatického testosteronu a luteinizačního hormonu (LH): TestosteronK měření hladiny testosteronu v krevní plazmě byla použita souprava ELISA. RIA kit byl zvyklýurčit koncentraci LH. Potom, 50µBylo přidáno 1 l plazmy a byly založeny výpočtyna koncentraci hormonu LH-RP-3 (standard). Další kroky byly provedeny podlepodle pokynů výrobce.Stanovení tumor nekrotizujícího faktoru (TNF)- a Interleukin{0}} (IL-6) koncentrace:Zachycená protilátka byla zředěna 250krát v potahovacím pufru a přidána do 96-jamkové destičky (100µL/studna),a drží se na 4◦C přes noc. Supernatant byl odsát a patnáctkrát promyt promytímpufr (1krát PBS, 0,05 procent Tween 20). Po inkubaci (1 h) s 200µg testovacího ředidla byly buňkypromyt 5x promývacím pufrem a 100µL TNF- standardní roztok nebo zkušební vzorkypřidán do každé jamky a inkubován po dobu 2 hodin. Po umytí 100µBylo přidáno 1 L IL-6 detekovaných protiláteka inkubovány po dobu 1 hodiny při teplotě místnosti. Supernatant byl odsát a 5krát promyt. Pak,480 µByly přidány 1 1 enzymu avidin-křenová peroxidáza (HRP) a inkubovány po dobu 30 minut při teplotě místnosti.teplota. Supernatant byl odsát a pětkrát promyt promývacím pufrem. Pak 100µL roztoku substrátu a inkubováno po dobu 15 minut při teplotě místnosti. Později, 50µL zastávkydo každé jamky byl přidán roztok (1M kyselina fosforečná) a absorbance byla měřena při 450 nm.Analýza parametrů spermií a varlatOdběr vzorků spermií: Odběr vzorků spermií byl proveden podlemetoda dříve uvedená v [13]. Spermie byly odebrány ze supernatantu a použity prodalší analýza.Počet spermií, pohyblivost spermií a abnormální spermie: Počet spermií bylvypočteno za použití hemocytometru a roztoku trypanové modři. Pak 100µL tekutiny spermatu bylysmíchaný s roztokem trypanové modři a byl zjištěn počet spermií, pohyblivost a abnormální spermievypočítané pomocí hemocytometru a mikroskopu [14]. Nitro blue Tetrazolium NBT Redukce a lipidová peroxidace spermií a varlat: lipidperoxidace a redukce NBT byly analyzovány podle stejného postupu analýzy plazmy.
Stanovení aktivity superoxiddismutázy (SOD) a katalázy: superoxiddismutáza(SOD) aktivita byla analyzována pomocí soupravy RANSEL. Zde 0,05 ml testikulárních homogenátůbyly přidány do 1,7 ml reakčního roztoku (0.05 mM xanthin, 0,025 mM 2-(4-jodfenyl)-{{0}}(4-nitrofenol)-5-fenyltetrazoliumchlorid (INT)). Po smíchání se přidá 0,25 ml xanthinoxidázy (80 U/L)se přidá a nechá reagovat při teplotě místnosti po dobu 30 s při teplotě místnosti. Absorbance bylaměřeno při 505 nm. Koncentrace proteinu testikulárního homogenátu byla stanovena pomocíByla vypočtena souprava Bio-Rad DC pro stanovení proteinu a jeho specifická aktivita (U/mg proteinu). Kataláza(CAT) aktivita byla stanovena podle dříve publikované metody [15]. H&E (Hematoxylin a Eosin) BarveníVarle bylo namočeno v 10 procentech formalínu na 24 hodin a skladováno při 4◦C. Nakrájejte tkáně na plátkyvelikosti micro a připevněné ke sklíčku. Po fixaci (95 procent methanolu plus 5 procent kyseliny octové) byly sklíčkaponořené do hematoxylinu na 3 minuty, promyté tekoucí vodou po dobu 5 minut a poté namočené50 procent, 70 procent a 90 procent alkoholu po dobu jedné minuty. Poté byla sklíčka barvena eosinem po dobu 10 snamočený ve 100% alkoholu po dobu jedné minuty, dokud nevybledne. Nakonec bylo sklíčko namočené v xylenu na jednuminuta. Později bylo sklíčko vysušeno na vzduchu a utěsněno. Obarvená zkumavka byla umístěna do obráceného fázového kontrastumikroskop (Inverted Phase Difference Microscope, Olympus CK-2, Tokio, Japonsko) k pozorovánímorfologie.Analýza hypotalamuMyší KISS1, receptor spřažený s G-proteinem (GPR) 54, supresor cytokinové signalizace 3 (SOCS-3)a sirtuin 1 (SIRT1)genové sekvence byly identifikovány z NCBI (Národní centrum pro biotechnologieInformation) genová databáze a specifický primer byl navržen pomocí Primer 5.0 PREMIER Biosoft,Palo Alto, CA, USA). Primery použité v experimentu jsou uvedeny v tabulce1.
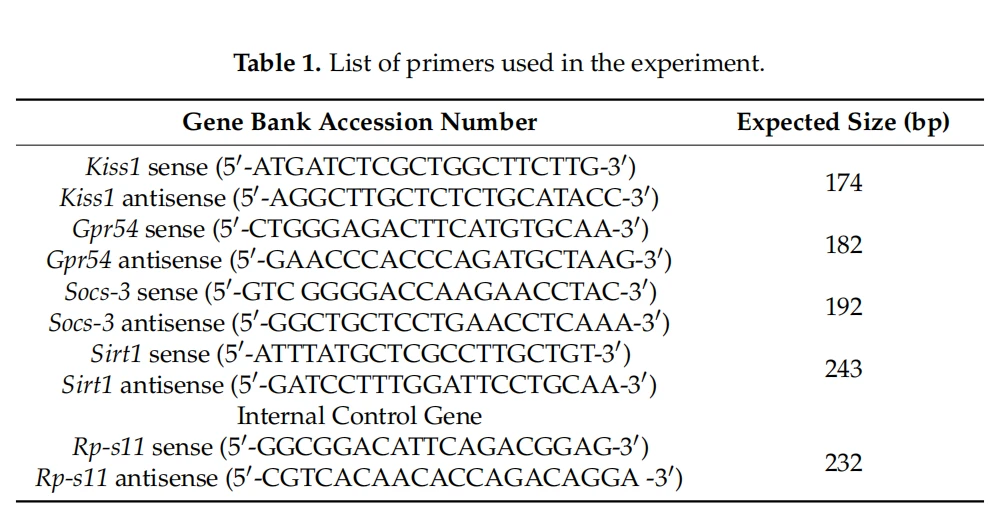
Extrakce ribonukleové kyseliny (RNA) z hypotalamu. Extrakce RNA zhypotalamu mozku byla provedena pomocí RNeasy Lipid Tissue Mini Kit. ZískanémRNA byly kvantitativně měřeny reverzní transkripcí (RT) a polymerázovou řetězovou reakcí(PCR). Komplementární DNA získaná z RT analýzy byla uložena v−20 ◦C pro pozdější použití.Extrahovaná DNA byla podrobena analýze polymerázové řetězové reakce (PCR) pomocí Taq polymerázy.Pak 5~10µByly odebrány 1 1 produktu PCR a analyzovány elektroforézou na 1,5% agarukoloidní. Snímek byl pořízen v zobrazovacím systému UVP BioDoc-It. Reverzně přepsaný komplementárníByla odebrána deoxyribonukleová kyselina (cDNA) a byla provedena PCR pomocí IQ SYBR Green SupermixKit. Později byl analyzován pomocí iQTM 5 Optical System Software. Proteiny byly extrahovány pomocí aproteinové extrakční činidlo (T-PER). Poté bylo přidáno 20 mg testikulárního homogenátu do 400µL T-PER a odstřeďována (High-Speed Centrifuge, Hettich ČR-12, Tuttlingen, Německo) při 4◦C (125,000× g) po dobu 20 minut. Následující metoda byla podobná „identifikaci a kvantifikacianalýza proteinu" v analýze in vitro.2.3. Statistická analýzaExperimentální výsledky byly vyjádřeny jako průměr± standardní odchylka (průměr± SD) adata byla analyzována pomocí Statistical Product & Service Solutions (SPSS) 11.0 software, IBM, Armonk,New York, NY, USA. Rozdíly mezi skupinami byly analyzovány jednosměrnou analýzourozptyl (ANOVA). Několikanásobná srovnání různých skupin byla analyzována Duncanovým testem vhodnotap < 0.05="" as="" the="" signifificant="">
3. Výsledky
3.1. Analýza in vitro
3.1.1. Srovnání antioxidačních aktivit ECH, CTE a RES
Dlouhodobý vysoký oxidační stres a chronické záněty jsou hlavními příčinami diabetukomplikace [16]. CTE obsahují různé fenylethanoidní glykosidy, jako je echinakosid(ECH) a akteosid, s potenciálem pro antioxidační aktivitu [17]. Vychytávání radikálů DPPHbyl proveden test pro hodnocení antioxidační aktivity ECH. Trolox a resveratrol(3,5,4'-trihydroxystilben, RES) byly použity jako standardní a pozitivní kontrola. Jak je znázorněnona obrázku1, ECH vykazovala lepší radikální vychytávací aktivitu a aktivita byla významně vyššínež u pozitivní kontroly (RES).

3.1.2. Buněčná životaschopnost ECH na LC-540 a TM3 Leydig CellsMTT test byl proveden pro hodnocení buněčné životaschopnosti různých koncentrací ECH.LC-540 Leydigovy buňky a TM3 Leydigovy buňky vykazovaly více než 80 procent životaschopnosti po ošetřeníECH (obrázek2). Ve srovnání s ostatními koncentracemi je 100-µM koncentrace (ředění 100µM ve 2 procentech FBS) ECH vykazovaly lepší životaschopnost buněk v buňkách TM3 Leydig. Výsledek naznačil, žezvýšená koncentrace ECH nepřispívá k žádné významné toxicitě pro buňky.

3.1.3. Vliv ECH na produkci AGE-indukovaného superoxidu pomocí testu NBT v LC-540 a TM3Leydig Cell
AGE způsobují oxidační poškození v těle v důsledku oxidace glukózy a tvorbyvolné radikály, jako je O2-, hydroxylové radikály a karbonylové skupiny [18]. Po stimulaci pomocí50 µg/ml AGEs, LC-540 (obr3a) a TM3 (obr3b) buňky byly ošetřeny ECH a RES(5 µM a 10µM každý). Výsledky ukázaly, že se zvýšila produkce superoxidového aniontuv kontrolní skupině (stimulované AGE), ale produkce superoxidového aniontu byla poté sníženaléčba ECH a RES. Z obrázku3bylo zřejmé, že ECH a RES snižují hladinuprodukují superoxidy a chrání buňky před oxidačním poškozením. V případě buněk LC-54010 µM ECH vykazoval téměř podobnou aktivitu jako normální skupina. Produkce superoxidu v oboubuněk byl snížen se zvýšením koncentrace jak ECH, tak RES.3.1.4. Účinek ECH na H2O2 Výroba v AGE-stimulovaných LC-540 Leydigových buňkáchPro detekci přítomnosti oxidačních látek byl proveden test DCFH-DA. Po vstupu dov buňkách je fluorescenční barvivo FL DCFH-DA oxidováno intracelulárními H2O2 a tvoří dichlorfluorescein(DCF). Jak je znázorněno na obrázku4došlo k významnému zvýšení intracelulárního H2O2 výroba vAGE-stimulovaná skupina (kontrola), zatímco přidání 10µM ECH a RES výrazně sníženyH2O2 produkci v buňkách. Administrace 10µMECH vedl k pouze asi 47,1 procenta H2O2 produkce, výrazně nižší než v kontrolní skupině.

3.1.5. Účinek ECH na RAGE a NF-κHladiny exprese proteinu B v LC-stimulovaném AGE-540Leydigovy buňky
Pro potvrzení přítomnosti RAGE v LC-540 Leydig byla provedena analýza Western blotbuňky. Účinek ECH na RAGE (obr5a) a NF-κB (obrázek5b) hladiny proteinové expresev AGEs-stimulovaných Leydigových buňkách jsou ukázány na obrázku5. Výsledky ukázaly, že 50µg/mlkoncentrace AGE indukovala vyšší RAGE a NF-κExprese B v LC-540 Leydigových buňkách a10 µM koncentrace ECH a RES významně snížila expresi RAGE a NF-κB. Vyjádření NF-κB byl významně nižší v RES a ECH než antagonisté RAGE. Takže výsledkypotvrdilo, že ECH snížilo úroveň zánětu snížením úrovně RAGE a NF-κB.

.1.6. Vliv ECH na dráhu syntézy testosteronu v AGE-stimulovaných LC-540 Leydigových buňkách.
Proces spermatogeneze a mužské neplodnosti závisí na přítomnosti testosteronu.Jak je znázorněno na obrázku6, výrazy StAR (obr6a), CYP11A1 (obrázek6b), CYP17A1 (obrázek6c), a HSD17 3 (obrázek6d) proteiny byly významně sníženy v AGE-stimulované LC-540 Leydigbuňky (kontrolní skupina). Exprese StAR, CYP11A1, CYP17A1 a HSD17 byly 3 proteinyvýznamně vzrostly, když byly přidány antagonista RAGE, RES a ECH. Zvýšenýexprese proteinů StAR a CYP11A1 byla pozorována ve skupinách léčených ECH i RES.Úroveň exprese CYP17A1 byla téměř podobná ve skupinách RES a ECH. VýrazyHSD17 3 proteinu v Leydigových buňkách ošetřených ECH byly mnohem vyšší než u RES a RAGEbuňky ošetřené antagonistou. Zvýšená exprese StAR, CYP11A1, CYP17A1 a HSD17 3 proteinyindikovala normální produkci testosteronu.
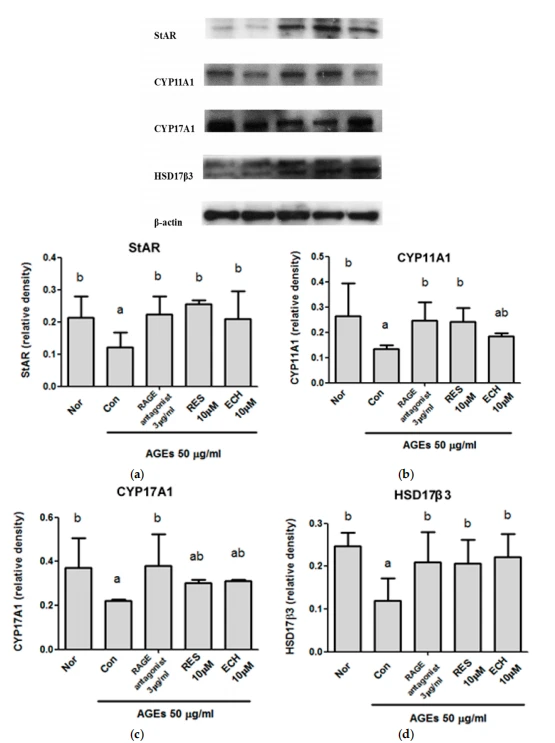
5buněk/ml a ošetření pomocí RES a ECH(10µM) byl podáván po dobu 24 hodin. -aktin byl použit jako vnitřní kontrola. Normální skupina (Nor)byla ošetřena médiem a kontrolní skupina (Con) byla ošetřena AGEs (50µg/ml).
Výsledekbyly zobrazeny jako průměr±SD (n = 3). Významné rozdíly (p < 0.05)="" were="" represented="" by="" letters="">analyzováno Duncanovým vícenásobným rozsahovým testem.