Rozdíly v kořenových exsudátech haloxylonového amodendronu napříč věky porostu a odezvou klíčení semen Cistanche Deserticola
Oct 08, 2026
Abstraktní
Abychom objasnili, jak kořen exsudujeHaloxylon ammodendron(saxaul) se liší podle stáří porostu a jakCistanche deserticolaKlíčení semen (Cistanche) reaguje na tyto rozdíly, zkoumali jsme saxové porosty staré 1, 3 a 6 let v oblasti Alar, Xinjiang, Čína. Vzorky kořenového exsudátu byly odebrány a analyzovány pomocí necílené metabolomiky založené na LC–MS, aby se charakterizovaly rozdíly ve složení. Paralelně,Cistanchesemena byla ošetřena kořenovými exsudáty z různých věkových skupin a byla stanovena rychlost klíčení semen.
Výsledky ukázaly významné rozdíly vCistancherychlost klíčení mezi ošetřeními. Tříleté ošetření exsudátem z porostu produkovalo nejvyšší míru klíčení, významně vyšší než ošetření s použitím exsudátu z jednoletých a šestiletých porostů, zatímco mezi jednoletým a šestiletým ošetřením nebyl zjištěn žádný významný rozdíl. Metabolomická analýza prokázala, že celkové metabolické profily exsudátů saxálních kořenů byly jasně rozlišitelné mezi věky porostů a největší počet diferenciálních metabolitů se vyskytl mezi 3letými a 1letými porosty. Diferenciální metabolity byly obohaceny hlavně o cukry, molekuly příbuzné vitaminu B6, flavonoidy/fenolické látky a molekuly související s lipidy. Hlavní rozdíly v drahách zahrnovaly metabolismus kyseliny alfa-linolenové, metabolismus vitaminu B6 a dráhy související s flavonoidy. Další screening pomocí integrace fenotypů klíčení ukázal, že reprezentativní rozdílné rysy konzistentní s vyšší klíčivostí byly také koncentrovány v těchto kategoriích metabolitů a drahách.
Tato zjištění naznačují jasnou chemickou diferenciaci exsudátů saxaulích mezi věky porostů a naznačují, že u tříletých porostů saxaulů se může vyvinout chemické pozadí exsudátu příznivější proCistancheklíčení semen. Výsledky poskytují teoretický základ pro vývoj a optimalizaciCistancheočkovací techniky.
Klíčová slova: Haloxylon ammodendron; Cistanche deserticola; kořenové exsudáty; metabolomika; stand-age gradient

Zavedení
Obnova suchých pouštních ekosystémů často závisí na založení a pokračující expanzi klíčových keřů [1–2].Haloxylon ammodendronje typickým druhem stromů vázajícím písek v pouštních oblastech severozápadní Číny a hraje výjimečnou roli při fixaci větru a písku, stabilizaci povrchu a údržbě vegetační struktury [3–4]. Kolem managementu a zlepšování ekologické funkce saxaulských plantáží se postupně vytvořila komplexní cesta „ekologická obnova – lesní hospodářství – využití zdrojů“ [5–7]. Mezi tyto přístupy patří očkováníCistanche deserticolasaxaulské plantáže jsou považovány za reprezentativní model rozvoje, který vyvažuje ekologické a průmyslové přínosy [8–9].
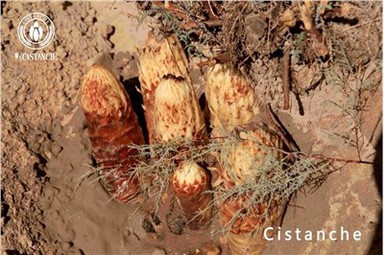
Cistanche Kultivační Základna V Xinjiang, Čína

Cistanche deserticolamá pozoruhodnou ekonomickou hodnotu a podnítil poptávku po umělé kultivaci [10–11]. Ve velkovýrobě však úspěšnost parazitární inokulace velmi kolísá, což ovlivňuje stabilitu a škálovatelnost tohoto modelu [12].
V systému saxaul–Cistanche je klíčení semen a časné rozpoznání hostitele kritickými kroky, které určují, zda lze navázat parazitický vztah [12–13].Cistanchesemena jsou extrémně malá a iniciace klíčení silně závisí na stimulaci z kořenových exsudátů hostitele [14–15]. Po vyklíčení musí semenáčky v krátké době lokalizovat kořeny hostitele a vstoupit do procesu tvorby haustoria [16]. Proto se intenzita a složení signálů hostitele přímo odráží v účinnosti klíčení a následné úspěšnosti parazitismu [16–17]. U obligátních parazitických rostlin mohou tyto signály také tvořit časoprostorovou „kombinaci podmínek“, která pravděpodobněji spustí klíčení, tj. tzv. klíčící okno [18–19].
Exsudáty kořene Saxaul obsahují několik tříd sloučenin, které se mohou účastnit procesů rozpoznávání a indukce hostitele, jako jsou chinony, organické kyseliny a molekuly související s hormony. Jejich složení je ovlivněno jak vývojovým stádiem rostlin, tak prostředím prostředí [20–21]. Předchozí studie naznačují, že kořenové exsudáty se dynamicky mění v různých ročních obdobích nebo fázích růstu, což může dále vést k rozdílům vCistancherychlost klíčení, účinnost tvorby haustoria a vznik parazitismu [22]. Z pohledu managementu plantáží gradient stáří často odpovídá vývoji kořenových systémů hostitele, akumulaci uhlíkových vstupů a stabilizaci mikroprostředí rhizosféry. V důsledku toho může chemické pozadí exsudátu podléhat systematickým úpravám [23–26].
Důkazy však zůstávají nedostatečné, pokud jde o to, jak rozdíly ve věku přetvářejí chemické spektrum exsudátů kořene saxaul a zda takové změny mohou vyvolat kvantifikovatelné reakce klíčení. Tato mezera také omezuje přímé kvantitativní pokyny pro výběr věku hostitelského porostu a plánování klíčových období řízení.
Metabolomika může odhalit změny v profilech metabolitů kořenového exsudátu. K rozlišení skupin a identifikaci rozdílných metabolitů lze použít vícerozměrné statistické metody, jako je analýza hlavních složek (PCA) a ortogonální parciální diskriminační analýza nejmenších čtverců (OPLS-DA) [27–28]. Další anotace dráhy a analýza obohacení pomáhá interpretovat směr biochemických změn [29–30]. Synchronním porovnáváním metabolomických výstupů s funkčními fenotypy (např. rychlostí klíčení semen) lze chemické rozdíly v exsudátech spojit s měřitelnými výsledky – „zda je klíčení podporováno a do jaké míry“ – což poskytuje přímější podporu pro rozhodnutí o řízení a aplikaci [31–33].
Proto se tato studie zaměřila na saxaulské porosty různého stáří v oblasti Alar na okraji pouště Taklamakan. Shromáždili jsme kořenové exsudáty z různých věků porostů pro necílené profilování metabolomiky LC–MS a provedliCistanchetesty klíčení semen za použití těchto exsudátů jako ošetření. Zkoumali jsme změny v profilech metabolitů kořenového exsudátu řízené věkem (celková separace, diferenciální screening metabolitů a obohacení dráhy) a porovnávali je s rozdíly v rychlosti klíčení. Studie poskytuje kvantitativní reference pro zlepšeníCistancheúspěch očkování a nabízí empirický metabolomický důkaz pro chemické interakce mezi hostitelem a parazitickými rostlinami v suchých oblastech.
1 Materiály a metody
1.1 Studijní oblast
Studijní oblast se nachází v přechodové zóně poušť-oáza města Alar, na severním okraji pouště Taklamakan, Xinjiang, Čína. Region má typické teplé mírné, extrémně suché klima se silnou činností větru a písku, vzácné srážky a intenzivní odpařování. Roční průměr srážek je 40,1-82,5 mm, zatímco roční průměrný výpar je 1876,6-2558,9 mm. Zdroje světla a tepla jsou bohaté a denní teplotní rozdíly jsou velké. V povrchové vegetaci převládají pouštní křoviny a řídké byliny. Saxaul je hlavním konstruktivním druhem používaným pro místní větrolamy a pásy fixující písek a region je také důležitou oblastí produkce saxaulem inokulovanýchCistanche.
1.2 Odběr a zpracování vzorků
Odběr vzorků byl proveden v dubnu 2025 (na jaře) v oblasti Alar. Kořenové exsudáty a synchronní půdní vzorky byly odebrány z saxaulských porostů ve věku 1, 3 a 6 let.Cistanchepo odběru vzorků byly provedeny pokusy s klíčením semen.
1-, 3- a 6letá standardní léčba byla označena jako AO, AT a AS. Každá léčba zahrnovala tři biologické replikáty, označené AO1–AO3, AT1–AT3 a AS1–AS3. Jednoleté porosty představují počáteční fázi založení; 3leté porosty představují bujnou růstovou fázi s aktivními rhizosférickými procesy; a 6leté porosty představují relativně stabilní etapu. Na základě rozdílů ve vývojových stádiích hostitele jsme porovnávali chemické variace kořenů a exsudátů napříč věky porostů a jejich vztah sCistancheklíčení semen.
1.2.1 Sběr kořenového exsudátu
Kořenové exsudáty byly odebírány metodou in situ polní extrakce. Na každém stanovišti byli vybráni jedinci saxaulů s podobným růstovým stavem a bez zjevných škůdců nebo chorob. Byly odebrány vzorky tří rostlin na věk porostu jako biologické replikáty. Kořeny byly pečlivě vykopány kolem základny rostliny, čímž se minimalizovalo mechanické poškození. Přilnutá půda byla jemně odstraněna; kořeny byly opláchnuty deionizovanou vodou; poté byly kořeny zabaleny a znovu pohřbeny in situ po dobu 24 hodin předběžného ošetření.
Po předběžném ošetření byly kořeny odstraněny a znovu jemně opláchnuty deionizovanou vodou. Kořenové segmenty byly obaleny navlhčeným filtračním papírem pro udržení vlhkosti, umístěny do 50ml centrifugačních zkumavek, utěsněny parafilmem a znovu pohřbeny in situ. Po 24 hodinách byly kořenové segmenty zabalené do filtračního papíru shromážděny, uchovávány na ledu a transportovány do laboratoře.
V laboratoři bylo přidáno 100 ml deionizované vody a vzorky byly třepány po dobu 30 minut pro extrakci. Extrakt byl vakuově filtrován, koncentrován za sníženého tlaku a skladován při -80 stupních pro následné LC–MS necílené metabolomické analýzy. Stejné extrakty byly také použity pro testy na ošetření semen.
1.2.2 Odběr vzorků půdy a stanovení fyzikálně-chemických vlastností půdy
Vzorky půdy byly odebírány současně s kořenovými exsudáty. Vzorky byly přirozeně vysušeny na vzduchu, nečistoty byly odstraněny a prošly 2 mm sítem pro fyzikálně-chemická měření včetně pH, celkového dusíku (TN), celkového fosforu (TP), celkového draslíku (TK), alkalicky hydrolyzovatelného dusíku (AN), dostupného fosforu (AP), dostupného draslíku (AK) a půdní organické hmoty (SOM). Podrobné metody jsou uvedeny v tabulce 1.
Tabulka 1. Půdní fyzikálně-chemické ukazatele a analytické metody
| Indikátor | Zkratka | Analytická metoda |
|---|---|---|
| pH | - | Potenciometrická metoda |
| Celkový dusík | TN | Kjeldahlova metoda |
| Celkový fosfor | TP | fúze NaOH – molybden a antimon kolorimetrie (spektrofotometrie) |
| Celkový draslík | TK | fúzní metoda NaOH |
| Alkalicky hydrolyzovatelný dusík | AN | Alkalická difúzní metoda |
| Dostupný fosfor | AP | |
| Dostupný draslík | AK | Metoda extrakce octanem amonným |
| Půdní organická hmota | SOM | Metoda oxidace dichromanu draselného |
1.3 LC–MS necílená metabolomika a předběžné zpracování dat
Vzorky kořenového exsudátu byly analyzovány pomocí ultra-vysokoúčinné kapalinové chromatografie – hmotnostní spektrometrie s vysokým rozlišením (UHPLC–HRMS) v pozitivním i negativním módu ionizace elektrosprejem. Nezpracovaná data byla před následnými analýzami podrobena extrakci píku, korekci retenčního času, zarovnání píku, zpracování chybějících hodnot a normalizaci.
Vzorky kontroly kvality a slepé kontroly byly použity k odstranění píků interference pozadí a prvků se špatnou reprodukovatelností, aby se zlepšila stabilita a srovnatelnost dat. Identifikace a anotace metabolitů byly založeny hlavně na přesné hmotnosti, retenčním čase a vzorcích fragmentace MS/MS, porovnaných s HMDB, METLIN, MassBank a mapovaných do KEGG pro analýzu dráhy. Výsledky anotací byly filtrovány podle spolehlivosti shody a byla provedena kategorizace chemických tříd a sumarizace na úrovni dráhy.
1.4 CistancheExperiment klíčení semen
1.4.1 Předúprava osiva
ShromážděnoCistanchesemena byla umístěna při 30 stupních v inkubátoru s konstantní teplotou na 1 hodinu. Povlaky semen byly odstraněny a semena byla povrchově sterilizována ve 2% chlornanu sodném po dobu 15 minut, opláchnuta třikrát sterilní destilovanou vodou a vysušena na sterilním filtračním papíru.
1.4.2 Předexperimentace a stanovení bazálních podmínek pro klíčení
Aby byla zajištěna srovnatelnost mezi ošetřeními exsudáty z různých věků porostů, byl proveden předexperiment ke screeningu podmínek přidání pro giberelin a fluridon. Na základě výsledků předtestu byla jako základní podmínka pro klíčení zvolena kombinace s lepší klíčivostí a stabilní opakovatelností: přidání 1 ml 1 g·L−1^{-1}−1 giberelinu a 1 ml 10 mg·L−1^{-1}−1 fluridonu.
1.4.3 Ošetření kořenovými exsudáty z různých věkových kategorií
Za jednotné bazální podmínky pro klíčení byly přidány stejné objemy vzorků kořenového exsudátu z 1-, 3- a 6letých saxaulských porostů pro srovnáníCistanchereakce na klíčení semen. Tato studie se zaměřila na léčebné účinky exsudátů z různých věkových kategorií porostů a nezahrnovala gradient koncentrace exsudátu.
Pro každé ošetření bylo 50 předem ošetřených semen umístěno do Petriho misek za použití metody filtračního papíru a inkubováno při 25 stupních ve tmě. Rychlost klíčení byla zaznamenána po 10 dnech. Jako kritérium klíčení byla použita délka kořene (zárodečná trubice) > 1 mm. Každé ošetření mělo tři opakování.
1.5 Statistická analýza
Po předběžném zpracování a normalizaci byla metabolomická data analyzována pomocí hierarchické shlukovací analýzy, PCA a OPLS-DA k vyhodnocení celkových rozdílů mezi stářím porostů. Diferenciální metabolity byly testovány pomocí VIP > 1 a P < 0,05. K interpretaci hlavních diferenciálních metabolických rysů byly použity Vennovy diagramy, sopečné grafy, seskupené tepelné mapy a analýzy obohacení KEGG dráhy.
Cistancherychlosti klíčení semen byly analyzovány jednocestnou ANOVA; post hoc srovnání byla provedena pomocí Tukeyova testu. Hladina významnosti byla nastavena na =0.05\\alpha=0.05 =0.05.
2 Výsledky a analýza
2.1 Fyzikálně-chemické vlastnosti půdy
Půdní fyzikálně-chemické ukazatele vykazovaly určité rozdíly mezi různými věky porostů, ale celkový rozsah změn byl omezený (tabulka 2). Půdy byly na všech plochách zásadité, s pH v rozmezí 8,35 až 8,83. Obsahy celkového dusíku, celkového fosforu, celkového draslíku a organických látek byly obecně nízké. 3leté porosty měly relativně vyšší TN, TK, SOM a AK; 6leté porosty měly mírně vyšší TP a AP; a jednoleté porosty měly relativně vyšší AN. Celkově půdní pozadí poněkud kolísalo napříč věky porostů bez konzistentního směrového trendu. Následné analýzy se proto zaměřily především na rozdíly kořenů a exsudátů a jejich korespondenciCistanchereakce na klíčení semen.
Tabulka 2. Fyzikálně-chemické vlastnosti půdy
| Zacházení | pH | TN (g·kg⁻¹) | TP (g·kg⁻¹) | TK (g·kg⁻¹) | AN (mg·kg⁻¹) | AP (mg·kg⁻¹) | AK (mg·kg⁻¹) | SOM (g·kg⁻¹) |
|---|---|---|---|---|---|---|---|---|
| AO | 8.83 | 0.129 | 0.591 | 6.76 | 11.672 | 7.171 | 159.783 | 2.660 |
| NA | 8.35 | 0.165 | 0.604 | 10.69 | 9.114 | 7.381 | 377.900 | 3.186 |
| AS | 8.82 | 0.101 | 0.649 | 7.08 | 10.697 | 8.086 | 185.962 | 2.547 |
Poznámky:AO=1-roční stát; AT=3-roční stát; AS=6-roční stánek.
2.2 Účinky kořenových exsudátů z různých věkových kategorií naCistancheKlíčení semen
CistancheRychlost klíčení semen se významně lišila mezi ošetřeními kořenovými exsudáty z různého stáří porostu (obrázek 1). 3leté ošetření exsudátu z porostu (AT) produkovalo nejvyšší míru klíčení 84,66 % ± 1,15 %. Jednoletá (AO) a 6letá (AS) léčba přinesla 80,89 % ± 2,04 % a 80,67 % ± 0,67 %, v daném pořadí. Jednosměrná ANOVA ukázala významný rozdíl mezi léčbami (P=0.022). Tukeyův post hoc test ukázal, že AT byla významně vyšší než AO (P=0.038) a AS (P=0.030), zatímco AO a AS se významně nelišily (P=0.980).

Obr. 1 Rozdíly v rychlosti klíčení semen Cistanche deserticola při ošetření kořenovým exsudátem z porostů Haloxylon ammodendron různého stáří
Tyto výsledky naznačují, že během období jarního okna kořenové exsudáty z různých stáří porostů odpovídají jasným rozdílům vCistanchereakce na klíčení semen a exsudáty z 3letých porostů vykazují silnější potenciál pro podporu klíčení. Abychom dále vysvětlili tyto rozdíly, dále jsme analyzovali celkovou separaci metabolitového profilu a různé metabolické vlastnosti.
2.3 Celkové rozdíly v kořenových exsudátech napříč věky stanovišť
2.3.1 Celková separace kořenových-exsudátových metabolických profilů
Metabolické profily kořenových exsudátů byly jasně diferencované podle stáří porostu. Globální teplotní mapa (obrázek 2) ukázala, že většina vzorků ve stejném porostu se shlukovala na stejné větvi, což ukazuje na dobrou konzistenci v rámci skupiny. Vzorky z různých věků porostů vykazovaly poměrně jasné vzorce seskupení, což naznačuje, že složení exsudátu bylo reorganizováno s věkem porostu.
Výsledky PCA (obrázek 3) ukázaly, že první dvě hlavní složky vysvětlily 46,5 % celkového rozptylu; PC1 a PC2 vysvětlily 32,1 % a 14,4 %, v tomto pořadí. Vzorky z různých stáří porostů vykazovaly odlišitelné rozložení v ordinačním prostoru. Zejména 1leté vzorky vykazovaly celkový trend distribuce odlišný od 3- a 6letých vzorků, což ukazuje na strukturální diferenciaci v celkovém složení exsudátu s věkem porostu. Přestože určitá variabilita v rámci skupiny zůstala, trend separace související s věkem byl jasný.

2.3.2 Diskriminace mezi skupinami
Pro další srovnání rozdílů mezi věky porostů byla provedena párová srovnání (AO vs. AT, AO vs. AS, AT vs. AS) na základě dat v režimu negativních iontů (obrázek 4). Všechna tři srovnání ukázala jasnou separaci a dobré shlukování biologických replikátů, což prokazuje stabilní metabolické rozdíly mezi věky porostů.
Všechny modely OPLS-DA vykazovaly dobré přizpůsobení a prediktivní výkon, s R2Y=0.998–1,000 a Q2=0.663–0,873, což ukazuje na robustní rozlišení vzorků kořenového exsudátu mezi věky porostů. Separace byla nejvýraznější mezi AS a AO, což naznačuje největší celkový rozdíl ve složení mezi 1- a 6letými exsudáty porostu. AT také vykazovala stabilní separaci od AO a AS, což naznačuje, že 3leté exsudáty již mají odlišné charakteristiky specifické pro stadium. Celkově byly profily metabolitů kořenového exsudátu vysoce rozlišitelné napříč věky porostů, což podporovalo následné analýzy různých metabolitů a jejich spojení s rozdíly v klíčení.

Obr. 3 Analýza hlavních komponent

Obr. 4 Párové srovnání skóre OPLS-DA kořenových exsudátů z Haloxylon ammodendron různého stáří
2.4 Hlavní diferenciální metabolické vlastnosti exsudátů kořene Saxaul
2.4.1 Počty diferenciálních metabolitů a sdílených vlastností
Každé párové srovnání mezi věky porostů obsahovalo určitý počet rozdílných metabolitů (obrázek 5). Největší počet se vyskytl u AT vs. AO, s 31 rozdílnými metabolity. AS vs. AO a AS vs. AT měl 24 resp. 18 rozdílných metabolitů, což ukazuje, že rozdíly mezi 3letými a 1letými exsudáty byly nejvýraznější.
Ve všech třech srovnáních bylo sdíleno sedm rozdílných metabolitů, což ukazuje na relativně stabilní sadu metabolitů reagujících na změny standardního věku. Mezitím si každé srovnání zachovalo některé jedinečné rozdílné metabolity, odrážející jasné rysy specifické pro stádium ve změnách exsudátu. Celkově byly standardní věkové rozdíly vyjádřeny nejen v počtu metabolitů, ale také ve struktuře, kde koexistovaly sdílené a pro stádium specifické rozdílné metabolity.

Obr. 5 Vennův diagram rozdílných metabolitů v kořenových exsudátech haloxylonu ammodendronu napříč věky porostů
2.4.2 Vzorce změn v diferenciálních metabolitech
Sopečné grafy a seskupené teplotní mapy naznačovaly modulární vzorce změn v kořenových exsudátech napříč věky porostů. Ve všech třech srovnáních (obrázek 6) byly významné metabolity distribuovány na obou stranách sopečných grafů, což ukazuje, jak up- a down-regulované metabolity mezi porosty. Mnoho významných rysů vykazovalo velké násobné změny a silný význam, což naznačuje, že oddělení skupin bylo společně řízeno souborem koncentrovaných metabolických posunů spíše než rozptýlenými individuálními variacemi.
Na základě anotací metabolitů byly hlavní diferenciální kategorie koncentrovány v cukrech, molekulách příbuzných vitaminu B6, flavonoidech/fenolických látkách a molekulách souvisejících s lipidy. Reprezentativní diferenciální metabolity zahrnovaly sacharózu, isopyridoxal, linolenát (18:3), PA 40:7, methylgibberellin A9 a secologanin.
AT vs. AO obsahovaly největší počet rozdílných metabolitů, což naznačuje silnější posun chemického výstupu z 1-letého na 3-leté období. Rozdíly mezi AT a AS byly také stabilní, což naznačuje, že 3letá fáze není pouze lineárním přechodem mezi 1letým a 6letým obdobím, ale má odlišné rysy specifické pro fázi. Celkově rozdíly mezi stářím porostů odrážely spíše koordinované změny mezi výše uvedenými kategoriemi metabolitů než izolované fluktuace jednotlivých metabolitů.

Obr. 6 Grafy sopek různých metabolitů v kořenových exsudátech Haloxylon ammodendron napříč věky porostů
Tepelná mapa reprezentativních rozdílných metabolitů (obrázek 7) dále ukázala dobré shlukování biologických replikátů a jasnou separaci mezi věky porostů, což ukazuje, že rozdíly ve věku porostu se odrážely přímo v profilech rozdílných metabolitů. Tříletá skupina (AT) vykazovala částečné podobnosti s AO nebo AS napříč různými moduly metabolitů, ale zachovala si své vlastní odlišné rysy. Některé metabolity dosáhly vrcholu v AT, zatímco zůstaly nižší v AO a AS; jiné byly nižší v AT, ale vyšší v AO nebo AS. Tříletá etapa se tedy neřídila jednoduchým monotónním vzorem nárůstu/snížení, ale spíše jasnou reorganizací specifickou pro etapu. Zejména molekuly související s vitaminem B6 (např. isopyridoxal, pyridoxát), flavonoidy/fenolické látky (např. kvercetin, isoquercitrin, skopolin) a molekuly příbuzné s lipidy (např. linolenát 18:3, PA 40:7, FA 18:1;O2) vykazovaly konzistentní modulární vzorce mezi jednotlivými diskriminacemi.

Obr. 7 Hierarchická shluková tepelná mapa reprezentativních diferenciálních metabolitů
2.4.3 Zapojené hlavní metabolické dráhy
Analýza KEGG dráhy ukázala, že rozdíly v exsudátech kořene saxaul související s věkem primárně zahrnovaly metabolismus lipidů, metabolismus vitamínů/kofaktorů a sekundární metabolismus související s flavonoidy (obrázek 8). Metabolismus kyseliny alfa-linolenové se objevil s relativně vysokým faktorem dopadu na dráhu, což představuje významnou dráhu související s lipidy v porovnání s věkovými rozdíly. Metabolismus vitaminu B6 také ukázal vysokou významnost, což naznačuje podstatné změny v malých molekulách souvisejících s kofaktorem a redoxní homeostázou.
V sekundárním metabolismu, biosyntéze flavonoidů, biosyntéze flavonů a flavonolů a degradaci flavonoidů byly všechny obohaceny, což naznačuje, že fenolicko-flavonoidový modul je hlavním směrem variací stand-age. Kromě toho dráhy aromatických sloučenin, jako je degradace benzoátu, vykazovaly určité odezvy. Celkově byly rozdíly v exsudátech kořene saxaul podmíněné věkem strukturovány hlavně kolem metabolismu lipidů, metabolismu vitaminu B6 a sekundárního metabolismu flavonoidů/fenolů.
2.5 Reprezentativní diferenciální metabolity screenované na základě fenotypů klíčení
Abychom dále objasnili souvislosti mezi rozdíly v exsudátech aCistanchefenotypy klíčení byly různé metabolity integrovány do vzorců rychlosti klíčení. Testy klíčení ukázaly, že ošetření AT mělo nejvyšší rychlost klíčení, zatímco AO a AS byly nižší a významně se nelišily. Tento vzorec naznačuje, že 3leté saxaulské exsudáty mohou obsahovat chemické složky příznivější pro propagaciCistancheklíčení semen.
Na základě tohoto fenotypu jsme upřednostnili metabolity, které se (i) objevily v porovnání AT vs. AO a AT vs. AS a (ii) vykazovaly trendy změn konzistentní s vyšší klíčivostí (tabulka 3). Tyto kandidátní diferenciální rysy se soustředily hlavně na cukry, molekuly související s lipidy, molekuly související s vitaminem B6 a flavonoidy/fenoly a byly spojeny s metabolismem kyseliny alfa-linolenové, metabolismem vitaminu B6 a drahami souvisejícími s flavonoidy. Tyto výsledky naznačují jasné seskupení kategorií mezi kandidátními metabolickými rysy konzistentní s vyšší klíčivostí, což naznačuje, že tyto metabolity nebo související dráhy mohou přispívat k fenotypu klíčení.

Obr. 8 Bublinový diagram faktorů ovlivňujících metabolickou dráhu
Tab. 3 Korespondence mezi rozdílnými znaky kořenových exsudátů z porostů Haloxylon ammodendron různého stáří a klíčivostí semen Cistanche deserticola
| Srovnávací skupina | Typ odezvy klíčení | Hlavní diferenciální kategorie | Rozdílové charakteristiky | Reprezentativní diferenciální metabolity |
|---|---|---|---|---|
| AT vs AO | Rychlost klíčení vAT vyššínežAO | Cukry, související s vitamínem B6, flavonoidy/fenolové kyseliny, lipidy | Významná modulární reorganizacev exsudátech at3letástát věk | sacharóza; isopyridoxal; pyridoxát; kvercetin; isoquercitrin; Linolenát (18:3) |
| AS vs AT | Rychlost klíčení vAS nižšínežNA | Cukry, flavonoidy, gibereliny | Rozdíl mezi6 leta3letástojí usignalizaceasekundární metabolismusúrovně | sacharóza; isoquercitrin; Methyl giberelin A9 |
| AS vs AO | Rozdíl v rychlosti klíčenínení významný | Vitamin B6 související, lipidy | Velké metabolické rozdílymezi1 roka6 letstojí, aležádný významný rozdíl v klíčení | Isopyridoxal atd. |
3 Diskuse
3.1 Stáří stanoviště řídí chemickou diferenciaci exsudátů kořene Saxaul
Exsudáty kořenů rostlin nejsou statické; dynamicky se přizpůsobují vývojové fázi, alokaci zdrojů a změnám prostředí rhizosféry. McLaughlin a kol. [22] ukázali, že kořenové exsudáty se v různých rostlinných druzích a časových měřítkách podstatně liší, což ukazuje na silnou časoprostorovou dynamiku. Chen a kol. [23] dále uvedli, že jak věk, tak roční období významně mění strategie exsudace kořenů a složení metabolitů na plantážích jedle čínské, což prokazuje jasné rozdíly ve věkovém stádiu v metabolických výstupech. Tyto studie podporují fyziologicko-ekologický základ pro diferenciaci chemie kořenů a exsudátů řízenou vývojovými stádii.
V této studii exsudáty kořene saxaul ukázaly jasnou diferenciaci mezi věky porostů na úrovni celkového profilu metabolitů. Shlukování teplotních map, PCA a OPLS-DA všechny prokázaly stabilní oddělení mezi věky porostů, což naznačuje, že věk porostu může řídit chemickou reorganizaci exsudátů kořenů saxaulů specifickou pro stádium. To souhlasí s existujícími znalostmi, že fáze růstu rostlin ovlivňuje složení exsudátu, a naznačuje, že v hostitelském systému saxaul–Cistanche může být variace věku porostu důležitým ekologickým faktorem utvářejícím pozadí signálů odvozených od kořenů.
Navíc změny stadia neodpovídají pouze vývojovému stádiu hostitele, ale také posunům v environmentálním pozadí rhizosféry. Hladiny půdních živin, pH, organická hmota a slanost mohou ovlivnit získávání živin rostlinami, vzorce alokace uhlíku a stabilitu rhizosféry, čímž dále regulují složení a procesy uvolňování kořenových exsudátů.
3.2 Exsudáty z 3letého Saxaul odpovídají vyššímuCistancheRychlost klíčení semen
Klíčení semen parazitických rostlin je vysoce závislé na chemických signálech pocházejících z hostitele. Nelson [16] poznamenal, že rostliny parazitující na kořenech v Orobanchaceae se typicky spoléhají na signální molekuly uvolněné z kořenů hostitele, aby detekovaly přítomnost hostitele a zahájily klíčení; takové „klíčení vyvolané hostitelem“ je klíčovým adaptivním mechanismem.
V této studiiCistanchemíra klíčení semen byla nejvyšší při 3letém saxaulském exsudátu, významně vyšší než při ošetření 1letým a 6letým exsudátem, přičemž nebyl pozorován žádný významný rozdíl mezi 1letým a 6letým ošetřením. To naznačuje, že různí hostitelé ve stálém věku pravděpodobně neposkytují pouze různá množství exsudátů, ale chemicky odlišné pozadí podporující klíčení. Skutečnost, že AT vs. AO měla nejvíce rozdílných metabolitů, naznačuje, že chemická reorganizace z 1letých na 3leté porosty byla největší v souladu se směrem vyšší klíčivosti.
Tento vzorec se může týkat rozdílů ve fázi růstu v saxaul a odpovídajících strategií alokace zdrojů. Jednoletý saxaul je v rané fázi zakládání, kde rostliny nejsou plně stabilizované, kořenové systémy a získávání zdrojů jsou relativně omezené a metabolické výstupy mohou být více zaměřeny na udržení vlastního růstu. Šestiletý saxaul je v relativně vyspělé fázi, kdy se alokace zdrojů může posunout směrem k údržbě, strukturální stabilitě a adaptaci prostředí, což vede ke stabilnějším strategiím exsudace. Naproti tomu 3letý saxaul je obecně ve fázi energického růstu, s aktivnější expanzí kořenů, příjmem živin a podzemním metabolismem, díky čemuž je pravděpodobnější, že vytvoří bohatší a variabilnější profil kořenového exsudátu. Na tomto základě může výrazná reorganizace metabolitů a vyšší rychlost klíčení při 3letém ošetření odrážet příznivější signální prostředí rhizosféry pro zahájeníCistancheklíčení semen během období jarního okna.
3.3 Hlavní diferenciální metabolické vlastnosti v souladu s odezvami klíčení
Metabolomika účinně odhaluje změny metabolitového profilu v komplexních vzorcích. Když je integrován s analýzou obohacení cesty, umožňuje identifikaci hlavních směrů změn na úrovni systému. Předchozí studie [31–33] naznačují, že kombinace výsledků metabolomiky s funkčními fenotypy, jako je klíčení semen, pomáhá zaměřit se na kandidátské metabolity nebo dráhy konzistentní s fenotypovými změnami. Pro kořenové exsudáty je strategie "fenotype-first, metabolit-tracking" zvláště užitečná pro identifikaci kandidátních metabolických rysů spojených se specifickými biologickými účinky.
V této studii fenotypově řízený screening ukázal, že reprezentativní rozdílné rysy konzistentní s vyšší rychlostí klíčení při 3leté léčbě se soustředily hlavně na cukry, molekuly související s vitaminem B6, flavonoidy/fenoly a molekuly související s lipidy, včetně metabolismu kyseliny alfa-linolenové, metabolismu vitaminu B6 a drah souvisejících s flavonoidy. Mechanisticky mohou cukry odrážet změny v zásobování a alokaci uhlíku v rhizosféře; molekuly související s lipidy se mohou týkat remodelace membránových lipidů a regulace stresových signálů; flavonoidy/fenolické látky se mohou podílet na rozpoznávání hostitele a parazita a přenosu signálu z rhizosféry; a molekuly související s vitaminem B6 mohou být spojeny s metabolickou homeostázou a tlumením stresu. Tyto metabolické kategorie vykazovaly koordinované změny ve skupině AT.
CistancheVýzkum související s hostitelem ukazuje, že fenolové kyseliny odvozené od hostitele mohou ovlivňovat indukční procesy a fenolické/aromatické sekundární metabolity v kořenech hostitele mohou hrát roli v parazitických reakcích [14]. Ačkoli tato studie nemůže přímo prokázat, že jeden metabolit je rozhodujícím faktorem, který řídí zvýšenou klíčivost, změny seskupené podle kategorií pozorované ve 3leté skupině naznačují, že výhoda podporující klíčení pravděpodobněji vyplývá z koordinované reorganizace více tříd metabolitů tvořících složené chemické pozadí, spíše než z náhodného zvýšení jedné molekuly.
3.4 Praktické důsledky a omezení studie
Z hlediska produkční praxe výsledky naznačují, že během období jarního okna může mít tříletý saxaul lepší potenciál proCistancheočkování, poskytující referenci pro výběr hostitelského porostu v podlesíCistanchepěstování a možné směry technického rozvoje ke zlepšení úspěšnosti očkování.
Tato studie je však založena na jediném jarním vzorkování a závěry odrážejí především vztahy během jarního okna; přímá extrapolace na celý rok zatím není podporována. Kromě toho role půdního pozadí při utváření vlastností metabolitů exsudátu zůstává do značné míry inferenční a měla by být dále ověřena pomocí korelačních analýz, řízených experimentů nebo multiomických přístupů. Necílená metabolomika má také omezení, jako je interference izomerů a omezená spolehlivost identifikace pro některé metabolity. Molekuly související s lipidy, vitaminem B6 a flavonoidy/fenoly by proto měly být považovány za kandidátské směry spíše než za plně potvrzené klíčové indukční faktory. Konečně, praktické výsledky očkování jsou ovlivněny mnoha faktory, včetně parazitického usazení, tvorby haustorií, následného růstu, podmínek polní vody a soli a postupů hospodaření. K posílení převodu do reálné produkce je zapotřebí další práce kombinující pokusy o inokulaci v terénu, průzkumy usazování parazitů a cílenou validaci klíčových kandidátských metabolitů.
4 Závěry
Chemická reorganizace složení kořene-exsudátu saxaulského napříč věky porostů jasně odpovídala rozdílům vCistancheodpovědi na klíčení semen, zdůrazňující význam vývojového stádia hostitele při regulaci parazitických fenotypů klíčení semen. V dubnu se metabolické profily kořenových exsudátů výrazně lišily mezi věky porostů. 3leté saxaulské exsudáty vykazovaly nejvýraznější rozdíly a odpovídaly nejvyššímCistancherychlost klíčení semen. Reprezentativní rozdílné znaky konzistentní s vyšší klíčivostí byly koncentrovány hlavně v cukrech, molekulách příbuzných vitaminu B6, flavonoidech/fenolikách a molekulách souvisejících s lipidy, včetně metabolismu kyseliny alfa-linolenové, metabolismu vitaminu B6 a drah souvisejících s flavonoidy. Vztah mezi stanovištěm – exsudátem – klíčením nenásledoval jednoduché lineární zlepšení; střední věk porostu s větší pravděpodobností tvořil chemické pozadí v souladu s vyšší odpovědí na klíčení.
Autorské příspěvky
Zhao Zhen: konceptualizace, metodologie, vyšetřování, zpracování dat, analýza dat, návrh, vizualizace.
Fan Jinglong: metodika, recenze a editace, vizualizace, supervize, administrace projektu, získávání finančních prostředků.
Dong Weikang: vyšetřování, zpracování dat.
Zhou Zhibin: zdroje, dohled, získávání finančních prostředků.
Li Bingwen, Wang Shijie: metodologie, zdroje, dohled, získávání finančních prostředků.