

Definice cirkadiánní poruchy u neurodegenerativních poruch
Aug 29, 2023
Neurodegenerativní onemocnění zahrnují velkou skupinu stavů, které jsou klinicky a patologicky různorodé, ale jsou spojeny sdílenou patologií špatně složených proteinů. Hromadění nerozpustných agregátů je doprovázeno progresivní ztrátou zranitelných neuronů. U některých pacientů jsou symptomy zaměřeny na motoriku (ataxie), zatímco jiní pociťují kognitivní a psychiatrické symptomy (demence).
Neurodegenerativní onemocnění jsou skupinou běžných onemocnění nervového systému, jako je Alzheimerova choroba, Parkinsonova choroba, Huntingtonova choroba aj. Výskyt a rozvoj těchto onemocnění úzce souvisí s imunitou.
Za prvé, imunita je důležitou zárukou toho, že tělo zůstane zdravé. Imunitní systém chrání tělo před infekcí tím, že rozpozná a napadne patogeny, které napadají tělo. Zdraví imunitního systému úzce souvisí s normální funkcí různých systémů v těle.
Za druhé, výskyt a rozvoj neurodegenerativních onemocnění úzce souvisí s imunitou. Studie prokázaly, že imunita může ovlivnit imunitní odpověď a opravnou schopnost neuronů, což má důležitý dopad na zdraví nervového systému. Snížená imunita může způsobit, že nervový systém bude zranitelný vůči patogenům a autoimunitním útokům, které mohou vést k neurodegenerativním onemocněním.
Konečně existují kroky, které můžeme podniknout k posílení imunity a prevenci a oddálení nástupu a progrese neurodegenerativních onemocnění. Například: udržujte zdravý životní styl, jako je správné cvičení, vyvážená strava, zákaz kouření a zákaz alkoholu; aktivně se bránit patogenům, jako je včasné očkování, časté mytí rukou atd.; posilovat imunitu tréninkem, jako jsou rozumné vitamínové doplňky, jíst více ovoce a zeleniny a udržovat náladu Shu Chang a tak dále.
Závěrem lze říci, že neurodegenerativní onemocnění úzce souvisí s imunitou. Aktivním zlepšováním imunity lze účinně předcházet a oddálit vznik a rozvoj neurodegenerativních onemocnění. Věřím, že společným úsilím se nám podaří nastartovat zářnou budoucnost neurologického zdraví. Je vidět, že potřebujeme zlepšit paměť. Cistanche může výrazně zlepšit paměť, protože masová pasta je tradiční čínský léčivý materiál s mnoha unikátními účinky, z nichž jedním je zlepšení paměti. Účinnost mletého masa vychází z různých účinných látek, které obsahuje, včetně karboxylové kyseliny, polysacharidů, flavonoidů atd. Tyto složky mohou různými kanály podporovat zdraví mozku.

Klikněte na možnost Znát krátkodobou paměť, jak se zlepšit
Mezi společné symptomy neurodegenerativních onemocnění patří narušení cyklu spánek/bdění, ke kterému dochází na počátku trajektorie onemocnění a může být rizikovým faktorem pro rozvoj onemocnění. V mnoha případech narušení načasování spánku a dalších rytmických fyziologických markerů okamžitě zvyšuje možnost neurodegenerací řízeného narušení cirkadiánního časovacího systému. Tento přehled si klade za cíl shrnout důkazy podporující hypotézu, že cirkadiánní narušení je základním příznakem neurodegenerativních onemocnění, včetně Alzheimerovy choroby, Huntingtonovy choroby a Parkinsonovy choroby, a diskutovat o nejnovějším pokroku v této oblasti.
Přehled pojednává o důkazech, že neurodegenerativní procesy mohou narušit strukturu a funkci cirkadiánního systému, a popisuje cirkadiánní intervence, stejně jako načasované medikamentózní léčby, které mohou zlepšit širokou škálu symptomů spojených s neurodegenerativními poruchami. Také identifikuje klíčové mezery v našich znalostech.
Úvod
Termín "neurodegenerativní onemocnění" (NDD) zahrnuje velkou skupinu stavů, které jsou klinicky a patologicky různorodé. Stále existuje společná biologie, protože tato onemocnění jsou charakterizována akumulací chybně poskládaných proteinů do nerozpustných agregátů doprovázenou progresivní ztrátou neuronů. Tyto proteinové agregáty jsou tvořeny mutantním huntingtinem u Huntingtonovy choroby (HD); amyloid- a tau u Alzheimerovy choroby (AD); a chybně poskládaný -synuklein u Parkinsonovy choroby (PD) a příbuzných poruch (1). Tato onemocnění mají společné prvky kvůli toxické povaze proteinových agregátů. Existují také důkazy, že špatně složené proteiny mohou být přenášeny z buňky do buňky s agregáty sloužícími jako chemický templát pro jejich tvorbu v buňkách příjemce (2).
Kombinace selektivní zranitelnosti a šíření může vysvětlit, jak NDD ovlivňují různé sítě buněk.
Mezi společné příznaky NDD patří narušení cyklu spánek/bdění, ke kterému dochází časně v progresi onemocnění. V mnoha případech je narušeno načasování spánku a rytmické fyziologické markery, což zvyšuje možnost narušení cirkadiánního časovacího systému způsobeného NDD. Cirkadiánní hodiny jsou dočasný program, který generuje 24-hodinovou strukturu biologických procesů od genové exprese po chování. Cirkadiánní hodiny jsou autonomní, produkují rytmy i v nepřítomnosti denních signálů okolního prostředí a jsou široce distribuovány po celém mozku a těle. Systém cirkadiánního časování savců zahrnuje centrální hodiny v suprachiasmatickém jádru (SCN), které přijímají světelné informace prostřednictvím specializované cesty, stejně jako informace o dalších relevantních environmentálních podnětech, jako je načasování jídla. SCN komunikuje se zbytkem mozku několika cestami, včetně center vzrušení, autonomního nervového systému a osy hypotalamus-hypofýza-nadledviny (HPA). Vzhledem k této silné směsi výstupních drah mohou centrální hodiny regulovat rytmy v celém těle a většina tkání má buněčné autonomní molekulární hodiny. Výsledkem je široká časová struktura, která ovlivňuje všechny biologické systémy. Jedním z ústředních principů cirkadiánního pole je, že tato dočasná struktura je nezbytná pro naše zdraví (3, 4) a její narušení má náklady, které pociťujeme v celém našem těle.
Na buněčné a molekulární úrovni řídí molekulární hodinový stroj rytmickou transkripci několika genů (4). Tento cirkadiánní hodinový stroj řídí časovou regulaci klíčových biologických procesů zapojených do zpracování proteinů, které by mohly ovlivnit tvorbu agregátů (5) a také přenos špatně složených proteinů (6). Důležité je, že clearance špatně složených proteinů je řízena spánkem prostřednictvím regulace glymfatického toku (7). Z těchto důvodů mnoho výzkumníků (8, 9) upřednostňuje obousměrný model, ve kterém může probíhající patologie onemocnění ovlivnit cirkadiánní rytmy a narušené cirkadiánní rytmy mohou patologii urychlit (obrázek 1).
Termín „cirkadiánní narušení“ je široce používán v kontextu NDD, ale není dobře definován výzkumníky (10). I když existuje několik klíčových rytmických parametrů řízených cirkadiánním systémem (např. amplituda, fáze, perioda), genetici se zaměřují především na délku endogenního cyklu a my podrobně rozumíme základním molekulárním mechanismům. Měřeno za konstantních podmínek je délka cyklu generovaná systémem cirkadiánního časování přesná a kvantifikovatelná, tj. vynikající výstup pro zkoumání mutačními a reverzními genetickými strategiemi (11). Nejužší definicí bychom mohli omezit naši diskusi o pacientech s cirkadiánními poruchami a zvířecích modelech, včetně snížené amplitudy, fragmentace (ztráta normálně konsolidovaných stavů spánku/bdění) a zvýšení variability denních rytmů mezi jednotlivými cykly. Bohužel tyto příznaky mají několik možných alternativních vysvětlení. Například snížení amplitudy rytmu může být způsobeno defekty v mnoha procesech po proudu od cirkadiánního časovacího systému. To je zvláště znepokojivé v případě HD a PD, u nichž je klíčovým příznakem narušení motorického výkonu prostřednictvím okruhů bazálních ganglií. I když musíme být opatrní ve svých interpretacích, narušení časového vzorce chování nebo fyziologických rytmů zvyšuje minimálně možnost deficitů v cirkadiánním časovacím systému.

NDD-řízené deficity v cirkadiánním časovacím systému
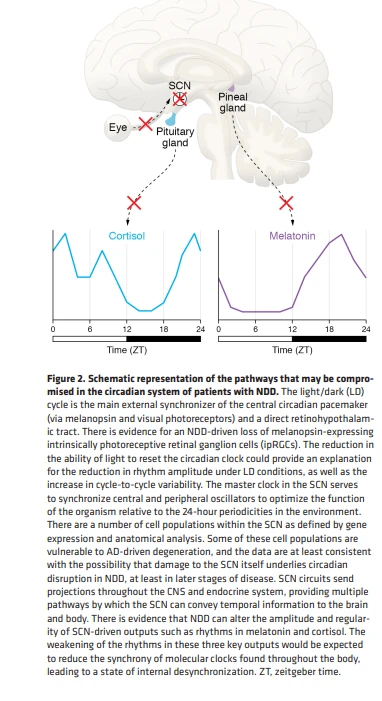
Klasicky se cirkadiánní časovací systém skládá ze světelné vstupní dráhy; centrální hodiny umístěné v SCN; a více výstupních cest (obrázek 2). Molekulární cirkadiánní hodiny jsou široce distribuovány a lokálně kontrolují časový vzor transkripce. Může být užitečné zvážit možnou dysfunkci způsobenou NDD u každé z těchto složek.
Deficity řízené NDD v detekci cirkadiánního světla
Denní cyklus světlo/tma (LD) je mocným regulátorem chování prostřednictvím přímého účinku světla a synchronizace endogenních cirkadiánních hodin (21). Světlo je detekováno vnitřně fotoreceptivními gangliovými buňkami sítnice (ipRGC), které využívají melanopsin jako fotopigment (22, 23). ipRGC mohou také reagovat na signály řízené tyčí a kuželem (24). ipRGC integrují tyto světelné informace (25) a posílají přímou projekci do centrálních cirkadiánních hodin, kde tento signál synchronizuje cirkadiánní oscilace. ipRGC jsou také částečně základem přímého dopadu světla na náladu a kognici (26, 27).
Existují důkazy, že pacienti s PD a AD mají méně ipRGC se sníženou dendritickou komplexitou (28, 29). Příspěvek tyčinek, čípků a ipRGC k pupilárnímu světelnému reflexu lze odhadnout pupilometrií. Spolehlivou metrikou funkce ipRGC je zejména postiluminační odezva zornice (PIPR) a u pacientů s PD a AD je ohrožena (30–32). Pacienti s rizikem AD mají významnou variabilitu v PIPR ve srovnání se zdravými kontrolami, což naznačuje, že tento reflex vyvolaný světlem by mohl být prediktivní (32, 33). I když je zapotřebí více práce, tento relativně jednoduchý test se může stát důležitým klinickým měřítkem pro narušení dráhy vstupu světla do cirkadiánního systému.

U HD myších modelů dochází k degeneraci ipRGC časně v progresi onemocnění (34, 35). Existuje několik způsobů, jak otestovat, jak světlo ovlivňuje cirkadiánní systém. Snad nejdefinitivnějším měřítkem je velikost fázových posunů vyvolaných světlem, když jsou myši drženy v konstantní tmě. Důležité je, že HD modely vykazují významné snížení velikosti světlem indukovaných fázových zpoždění, stejně jako delší doby pro opětovné strhávání do posunu v cyklu LD (35–37). Souhrnně přesvědčivá preklinická data naznačují, že světelný vstup do cirkadiánního systému je u HD ohrožen. Situace u PD a AD je méně jasná. Údaje o chování jsou smíšené, přičemž některé skupiny nezjistily žádný vliv na dráhu vstupu světla u dobře zavedených myších modelů pro PD (38) nebo AD (39). Na druhé straně linie apolipoproteinu E4–knockout (APOE4-KO), model AD, vykazovala významné snížení velikosti světlem indukovaných fázových posunů (40) a také zvýšenou aktivitu během světla fáze cyklu LD (39, 41). I když jsou možné jiné mechanismy, snížení schopnosti světla resetovat cirkadiánní hodiny by mohlo vysvětlit snížení amplitudy rytmu za podmínek LD, stejně jako zvýšení variability mezi cykly.
Deficity v SCN způsobené NDD
SCN hypotalamu obsahuje tzv. hlavní oscilační síť nezbytnou pro koordinaci cirkadiánních rytmů v celém těle. Několik studií se zabývalo posmrtnými strukturálními změnami v SCN u NDD (42–47). Tyto studie ukazují snížení počtu a velikosti buněk, stejně jako snížení počtu buněk exprimujících vazoaktivní střevní peptid (exprimující VIP) a buněk exprimujících arginin vasopresin (exprimující AVP) v SCN. Několika zvláště působivým studiím se podařilo změřit denní rytmy subjektů s AD a poté posmrtně prozkoumat SCN pacientů. První studie zjistila, že specifická ztráta neurotensinových neuronů SCN byla spojena se ztrátou aktivity a teplotní amplitudy u pacientů s AD (48). Práce z laboratoře Saper (49) zjistila, že amplituda cirkadiánního rytmu u subjektů s AD korelovala s počtem neuronů SCN exprimujících VIP. AD byla navíc spojena s opožděnou cirkadiánní fází ve srovnání s kognitivně zdravými subjekty. Tyto údaje jsou společně v souladu s možností, že poškození samotné SCN je základem cirkadiánního narušení u NDD, alespoň v pozdějších fázích onemocnění.
Existují určité důkazy o anatomických změnách SCN u myších modelů NDD. Například se objevily zprávy o snížení exprese VIP v SCN v modelech HD (50, 51). Kromě toho došlo u modelu HD ke zmenšení velikosti definované Nisslem mužského, ale nikoli ženského SCN (51). Snad nejjasnější případ patologie SCN pochází z práce na modelu APOE4-KO (40). Autoři našli důkazy pro amyloidózu a depozici tau, stejně jako mitochondriální a synaptické poškození, v mutantní SCN. Tauopatie byla také pozorována v SCN starých myší Tg4510 (model pro AD) (52), což zdůrazňuje význam věku jako proměnné. Všechny tyto deficity na myších modelech jsou většinou pozorovány u mladých zvířat a zvířat středního věku (12 měsíců nebo méně), zatímco údaje o lidech jsou všechny postmortem. Klidně se může stát, že deficity u myší jsou výraznější ke konci jejich života.
Charakteristickou vlastností neuronů SCN je, že generují cirkadiánní rytmus nervové aktivity s vyšší spontánní aktivitou během dne než během noci. Tento rytmus neurální aktivity je rozhodující pro synchronizaci buněk v okruhu SCN, stejně jako pro schopnost tohoto jádra řídit výstupy v celém těle. Tyto rytmy elektrické aktivity SCN jsou ovlivněny věkem a již ve středním věku vykazují snížení amplitudy a zvýšení variability (53). Rytmy nervové aktivity SCN jsou narušeny časně u NDD a jsou doprovázeny ztrátou normálních denních změn klidového membránového potenciálu v neuronech SCN (36, 38, 51, 54). Existuje tedy důkaz pro patofyziologii na úrovni SCN u myších modelů NDD.
Změna řízená NDD ve výstupech řízených SCN
Jak bylo měřeno aktigrafií, mnoho pacientů s NDD bude vykazovat zvýšenou fragmentaci cyklu spánku/bdění, jak bylo měřeno zvýšeným vzrušením v noci a zvýšeným spánkem ve dne (8, 9, 55, 56). Okruh, kterým SCN řídí lokomotorickou aktivitu, není dobře pochopen, ale určitě prochází dopaminergní regulací okruhu bazálních ganglií. Populace buněk v této oblasti jsou citlivé na patologii způsobenou PD a HD. Pochopení toho, jak NDD ovlivňují cirkadiánní regulaci oblastí řízení motoru, je důležitou oblastí pro budoucí výzkum.
melatonin. Jedním z nejlépe pochopených cirkadiánních okruhů je dočasná kontrola sekrece melatoninu. Okruhy podílející se na nočním vzestupu sekrece melatoninu a autonomních funkcí jsou relativně dobře definované [57]. Receptory melatoninu jsou exprimovány v celém těle (58) a mají široký dopad na biologické systémy. Samotný SCN exprimuje vysoké hladiny melatoninových receptorů a interakce mezi SCN a epifýzou tvoří neuroendokrinní zpětnovazební smyčku (59). Z klinického hlediska může být nástup melatoninu v tlumeném světle (DLMO) použit jako laboratorní měření k určení fáze cirkadiánního cyklu (60). Hladiny melatoninu se běžně měří v plazmě nebo slinách, protože to umožňuje časté odběry vzorků pro přesnější určení fáze.
U HD pacientů bylo hlášeno, že mají opožděnou fázi sekrece melatoninu, která se s progresí onemocnění zpožďuje (61). Jiná studie dokumentovala snížené hladiny melatoninu u premanifestních HD pacientů (62) s dalším poklesem hladin melatoninu s progresí do manifestní HD. V obou skupinách byl intersubjektový DLMO variabilnější ve srovnání s kontrolami. Jiná studie nosičů alel HD však nezjistila žádnou změnu v DLMO, a to ani u jedinců se zvýšeným nočním probouzením (63). Mezi pacienty s PD existují důkazy o snížení amplitudy sekrece melatoninu, ale rozdíl ve fázi podporuje smíšenou podporu [64–66]. Komplikujícím faktorem je, že dopaminergní léky používané k léčbě PD také ovlivňují sekreci melatoninu (67). Časná práce u pacientů s AD nalezla důkazy o snížených hladinách melatoninu (65–70). Novější práce zjistily, že DLMO byl opožděn se sníženou amplitudou u pacientů s mírnou kognitivní poruchou (71). Vzhledem k tomu, že měření lze provést ze vzorků slin, je relativní nedostatek údajů o načasování sekrece melatoninu u pacientů s NDD překvapivý. U pacientů s NDD by bylo zajímavé podívat se na intrasubjektovou variabilitu u DLMO, protože data z aktivity naznačují, že každodenní variabilita bude pravděpodobně vyšší než u kontrol. Náš nedostatek znalostí o vlivu NDD na rytmičnost melatoninu se týká myších modelů, protože většina z nich je na pozadí C57, a proto neprodukují rytmický melatonin.
Teplota jádra. Základní tělesná teplota (CBT) je dalším dobře přijímaným ukazatelem cirkadiánní rytmicity, která je u lidí vysoká během dne a nízká během noci. Cirkadiánní rytmy u KBT jsou nezávislé na lokomotorické aktivitě, ale závislé na intaktní SCN (72–74). Projekce putují z SCN do subparaventrikulární zóny a tyto neurony jsou nezbytné pro řízení cirkadiánních rytmů KBT (75). Nové technologie umožňují nepřetržité měření CBT prostřednictvím bezdrátových kapslí a možná i nositelných zařízení, která by měla usnadnit měření v populaci pacientů.
Presymptomatickí HD pacienti měli zvýšenou denní CBT [76], ale rytmy nebyly měřeny. U PD byla amplituda rytmu KBT snížena u podskupiny pacientů s poruchou chování při rychlém pohybu očí (RBD) a demencí s Lewyho tělísky (77). Vztah mezi RBD a sníženou amplitudou CBT rytmů byl pozorován v jiné práci (78, 79). U AD nezjistily rané studie žádný rozdíl v amplitudě rytmu CBT, ale fáze byla opožděna u subjektů s AD (80). Podskupina pacientů s noční agitací známou jako „chování při západu slunce“ ve skutečnosti vykazovala rytmus s vyšší amplitudou, který byl také fázově opožděn (81). V jedné pozoruhodné studii byla CBT měřena u starších jedinců, seskupených do zdravých stárnoucích nebo pravděpodobných AD, a mladých jedinců (82). Autoři zjistili snížení amplitudy cirkadiánních rytmů u KBT u obou věkových skupin ve srovnání s mladými. Fázové zpoždění bylo pozorováno u subjektů s pravděpodobným AD, ale ne u věkově odpovídajících kontrol. Celkově data naznačují, že někteří, ale ne všichni, pacienti s NDD vykazují buď snížení amplitudy nebo fázového zpoždění těchto rytmů.
Hypotéza, že rytmy CBT jsou v podstatě intaktní na počátku progrese onemocnění NDD a že tyto rytmy se v pozdějších fázích otupují a fázově posunují, by mohla být snadno testována ve studiích na zvířatech. Například pečlivé longitudinální studie HD myších modelů zjistily intaktní rytmy CBT v rané fázi progrese onemocnění a tyto rytmy vykazovaly sníženou amplitudu a zvýšenou variabilitu mezi jednotlivými cykly, jak onemocnění postupovalo (83–85). Jiná studie používala telemetrii k měření rytmů CBT u mladých myší a myší středního věku AD (3xTgAD) (86). Rytmy CBT byly u mladých zvířat fázově pokročilé a ve středním věku skutečně vykazovaly zvýšení amplitudy. CBT jako měřítko výstupu řízeného SCN je u myších modelů NDD pravděpodobně nedostatečně využíváno.
kortizol. Uvolňování kortizolu z kůry nadledvin je pod regulací osy HPA a více úrovní této osy je pod cirkadiánní kontrolou (59, 87). Jedním z nejrobustnějších cirkadiánních rytmů je cirkulující kortizol, který vrcholí těsně před probuzením. Tento hormon je tak blízko, jak jen máme univerzálnímu signálu „probuzení“ a může připravit tělo na nadcházející aktivitu. Glukokortikoidní a mineralokortikoidní receptory mají širokou distribuci. Je zajímavé, že glukokortikoidní receptory se v SCN nenacházejí, což naznačuje, že denní zvýšení koncentrace kortizolu by mohlo působit jako jednosměrný výstupní signál z SCN. Měření kortizolu je rutinní, i když většinou v séru, což ztěžuje časté odběry vzorků. Kortizol lze měřit také ve slinách, ale předpokládá se, že k rannímu vzestupu dochází před probuzením, takže časté odběry vzorků potřebné k zachycení rytmu naruší cyklus spánku/bdění.
Navzdory těmto problémům několik studií zkoumalo dopad NDD na rytmy kortizolu. Časná studie zkoumala 24-hodinovou sekreci kortizolu u pacientů s HD v časném stadiu bez medikace a zjistila vyšší amplitudové rytmy v populaci HD (61). Jiná studie zjistila mírnou nebo žádnou poruchu ranní sekrece kortizolu u nosičů HD, která předcházela nástupu motorických příznaků (63, 88, 89). Bylo hlášeno, že pozdější stavy HD vykazují fázový posun, který byl podobný tomu, který byl pozorován při stárnutí (90), stejně jako zvýšený kortizol (91). V důležité studii Hartmann a kolegové (92) přímo porovnávali pacienty s PD a AD s kontrolami stejného věku s 24-hodinovým vzorkováním každých 15 minut. Pacienti s AD a PD měli významně vyšší celkové plazmatické koncentrace kortizolu. Pacienti s PD také vykazovali sníženou amplitudu v rytmu sekrece kortizolu, zatímco rytmus u pacientů s AD se zdál být fázově pokročilý. Novější studie také zjistila, že pacienti s PD měli významně zvýšené celkové plazmatické koncentrace kortizolu (93) beze změny v načasování nástupu nebo offsetu kortizolu. Několik pacientů s PD (41 %) však vykazovalo profily arytmického kortizolu. Jiné studie nalezly neporušené rytmy v sekreci kortizolu i u pacientů, jejichž vzorce aktivity jsou narušeny (94). Celkově mnoho studií nalezlo důkazy o zvýšeném kortizolu u pacientů s NDD, ale s rytmickou sekrecí obecně neporušenou.

Navzdory těmto problémům několik studií zkoumalo dopad NDD na rytmy kortizolu. Časná studie zkoumala 24-hodinovou sekreci kortizolu u pacientů s HD v časném stadiu bez medikace a zjistila vyšší amplitudové rytmy v populaci HD (61). Jiná studie zjistila mírnou nebo žádnou poruchu ranní sekrece kortizolu u nosičů HD, která předcházela nástupu motorických příznaků (63, 88, 89). Bylo hlášeno, že pozdější stavy HD vykazují fázový posun, který byl podobný tomu, který byl pozorován při stárnutí (90), stejně jako zvýšený kortizol (91). V důležité studii Hartmann a kolegové (92) přímo porovnávali pacienty s PD a AD s kontrolami stejného věku s 24-hodinovým vzorkováním každých 15 minut. Pacienti s AD a PD měli významně vyšší celkové plazmatické koncentrace kortizolu. Pacienti s PD také vykazovali sníženou amplitudu v rytmu sekrece kortizolu, zatímco rytmus u pacientů s AD se zdál být fázově pokročilý. Novější studie také zjistila, že pacienti s PD měli významně zvýšené celkové plazmatické koncentrace kortizolu (93) beze změny v načasování nástupu nebo offsetu kortizolu. Několik pacientů s PD (41 %) však vykazovalo profily arytmického kortizolu. Jiné studie nalezly neporušené rytmy v sekreci kortizolu i u pacientů, jejichž vzorce aktivity jsou narušeny (94). Celkově mnoho studií nalezlo důkazy o zvýšeném kortizolu u pacientů s NDD, ale s rytmickou sekrecí obecně neporušenou.
NDD-řízené deficity v molekulárním hodinovém stroji
Rytmy v nervové aktivitě v SCN jsou řízeny buněčně autonomními molekulárními zpětnovazebními smyčkami (96, 97). Existují důkazy, že stárnutí může ovlivnit expresi hodinového genu v lidské kůře. Podrobná studie z McClungovy laboratoře použila informace o čase smrti ke zkoumání časového vzorce genové exprese z lidské prefrontální kůry (17). Autoři zjistili, že starší lidé mají narušené vzorce exprese PER1, zatímco exprese PER2 vykazovala fázový posun. Transkripce mnoha genů obecně vykazovala fázové posuny nebo ztrátu rytmicity ve staré populaci. Je zajímavé, že podskupina genů, které nebyly rytmické ve tkáni z mladších dospělých, se stala rytmickou ve starší populaci. Tento typ složitosti genové exprese je to, co očekáváme od pacientů s NDD. Další studie zkoumala expresi hodinového genu v posmrtné tkáni (přední mozek a epifýza) a nalezla důkazy o změnách fáze rytmu hodinového genu v mozcích pacientů s AD ve srovnání s kontrolami (16). Podobně se u pacientů s AD ztratil denní rytmický vzorec v expresi několika hodinových genů v epifýze (98). A konečně, rytmická metylace BMAL1 je u AD narušena a to koreluje s patologií tau, kognitivní poruchou a noční bdělostí (99, 100). Tyto výsledky podporují myšlenku, že rytmy v expresi hodinového genu jsou u pacientů s AD narušeny, ale v této oblasti je zapotřebí více práce.
Expresi hodinového genu lze měřit z většiny buněčných populací, takže je možné sledovat změny periody a fáze v periferních tkáních způsobené onemocněním. Zdá se to být velmi slibná strategie a jedna studie zkoumala expresi hodinového genu v mononukleárních buňkách periferní krve odebraných pacientům s časnou PD a objevila ztrátu rytmů u BMAL1 a změněnou expresi jak PER2, tak REV-ERB (93). Abychom uvedli další příklad, rytmická methylace BMAL1 byla změněna ve fibroblastech pacientů s AD (99). Měření exprese rytmických hodin genu z periferních tkání nabízí několik výhod oproti posmrtné tkáni. Může mít omezení, že alespoň v některých tkáních bude fáze vysoce ovlivněna cyklem krmení/rychle.
Exprese hodinového genu v HD myších modelech byla prozkoumána poměrně podrobně. U závažněji zasaženého modelu R6/2 bylo pozorováno narušení rytmů PER2 a BMAL1 v SCN a striatu in vivo (101). Je zajímavé, že když byla exprese hodinového genu měřena bioluminiscencí řízenou PER2-, hlavní účinky byly na fázi rytmů, zatímco bioluminiscence měřená v SCN se zdála relativně nedotčená (102, 103). Toto pozorování, že expresní rytmy jsou horší in vivo než in vitro, zvyšuje možnost, že molekulární hodiny v SCN jsou relativně neporušené, ale že extra-SCN signály narušují rytmus in vivo. Proběhla také určitá související práce s modely AD. Například u APOE4 KO byl narušen cirkadiánní vzor exprese genu pro jádrové hodiny v SCN (40). Existují také důkazy pro narušené rytmy v expresi hodinového genu mimo SCN v modelech AD (52, 104, 105). Celkově data genové exprese z myších modelů naznačují, že existuje vnitřní desynchronizace mezi SCN a periferními hodinami v NDD.
Možné mechanismy, které jsou základem cirkadiánního narušení u NDD
Molekulární hodinový stroj pohánějící cirkadiánní oscilace se nachází v celém těle. Neurony a gliové buňky exprimují denní oscilace, které poskytují dočasnou strukturu pro transkripci, buněčnou biologii a síťové vlastnosti všech hlavních CNS, které jsou ovlivněny NDD. Analýza celého genomu odhaluje globální cirkadiánní kontrolu nad procesy zapojenými do funkčně důležitých drah, jako je transkripce, modifikace a remodelace chromatinu, metabolismus, zánět a buněčná signalizace (obrázek 3). Proto ve snaze porozumět mechanismům, kterými může narušení cirkadiánního rytmu urychlit symptomy a patologii NDD, existuje několik možných zprostředkovatelských cest (8, 9, 55, 106, 107) a stručně budou uvedeny tři zvláště slibné průsečíky mezi cirkadiánními rytmy a NDD. zde uvažováno.
Proteostáza
Dráhy proteostázy řídí biogenezi, skládání, transport a degradaci proteinů. Tyto dráhy se podílejí na NDD, jejichž patologie je definována agregací charakteristických proteinů. Běžnou hypotézou je, že chronická exprese chybně poskládaných proteinů v raném věku vede k akumulaci špatně poskládaných druhů a agregátů, které přehluší proteostázu (108). Existují určité důkazy pro cirkadiánní regulaci systémů kontroly kvality proteinů, včetně molekulárních chaperonů, systému ubikvitin-proteazom a dráhy autofagie-lysozomální degradace v mozku. Například analýza genové ontologie transkriptů v SCN zjistila obohacení pro geny zapojené do stabilizace a skládání proteinů, které jsou rytmicky exprimovány napříč buněčnými typy (5). I když jsou proteostázové sítě relativně neprozkoumané, budou pravděpodobně důležité pro pochopení vazeb mezi cirkadiánní dysfunkcí a NDD. V játrech existují dobré důkazy pro cirkadiánní regulaci autofagie (109) a ve fibroblastech byly pozorovány rytmy proteazomální aktivity (110). Kromě toho je několik molekulárních chaperonů, včetně proteinů tepelného šoku (Hsp70, Hsp90), stěžejních při skládání a rozkládání proteinů (111). DNA vazba faktoru tepelného šoku 1 (HSF1) je vysoce rytmická (112) a řídí expresi proteinů tepelného šoku na začátku aktivity. Existují důkazy, že na HSF{12}}závislá regulace reakce tepelného šoku in vivo je narušena u HD myších modelů (113). Při použití modelu Drosophila HD existují důkazy pro organizující protein Hsp70/90 v regulaci agregace a toxicity mutantního huntingtinu (mHtt) (114). Experimenty k určení role cirkadiánního systému v regulaci sítě proteostázy v CNS se zdají být zvláště slibnou oblastí pro budoucí práci.
Přibývá důkazů o regulaci spánku/bdění clearance špatně složených proteinů v mozkovém glymfatickém systému, což je astroglií zprostředkovaný objemový průtok intersticiální tekutiny (7). Jak je popsáno výše, NDD narušují spánek a je logické navrhnout, že snížení spánku vede k poklesu vylučování mozkových odpadů. Aktivita glymfatického systému je vysoká během spánku a nízká během bdění (115). Existují denní rytmy jak v hladinách amyloidu- (A ), tak v extracelulárních hladinách tau (116). Argument, že tyto rytmy jsou řízeny spánkem, pochází z pozorování, že anestezie může akutně napodobovat dopad spánku (117), zatímco nedostatek spánku zvyšuje ukládání plaku A a také patologii tau (118, 119). Existují také důkazy, že narušený spánek zvyšuje produkci A (120). Současná data tedy naznačují, že spánek může regulovat jak tvorbu, tak odstranění A.
Zatímco spánek může být přímým hnacím motorem, existuje také dobrý důvod k podezření, že je zapojen také cirkadiánní systém. Například delece Bmal1 způsobuje závažnou cirkadiánní fragmentaci, významně otupuje A rytmy a zvyšuje ukládání amyloidního plaku v transgenním myším modelu AD (121). Údaje také naznačují, že glymfatický příliv a clearance vykazují cirkadiánní rytmy, které vrcholí během fáze uprostřed odpočinku myší. Důležité je, že ztráta vodního kanálu aquaporin-4 (AQP4), který je lokalizován na vaskulárních koncových chodidlech astrocytů, eliminuje rozdíl mezi dnem a nocí v glymfatickém přílivu a drenáži do lymfatických uzlin (122). A konečně, cirkadiánní systém reguluje nervovou aktivitu v mnoha oblastech CNS a tyto rytmy by mohly ovlivnit ukládání plaku A.
Přenos špatně složených proteinů
Mnoho patologických proteinů souvisejících s NDD podléhá přenosu z buňky do buňky prostřednictvím mechanismů, které nejsou jasné. Injekce a šíření syntetických fibril A nebo -synukleinu prostřednictvím anatomicky definovaných okruhů naznačují, že dochází k synaptickému přenosu špatně složených proteinů (2). Cirkadiánní systém reguluje nervovou aktivitu a také synaptický přenos, takže narušení cirkadiánního systému by mohlo změnit šíření špatně složených proteinů prostřednictvím tohoto mechanismu. Nedávná práce zdůraznila vztah mezi cirkadiánními rytmy, spánkem a synaptickým přenosem v předním mozku myší (6, 123). V těchto studiích autoři zkoumali transkripční, translační a posttranslační regulaci molekul zapojených do synaptického přenosu v preparátech synaptoneurozomů předního mozku v průběhu LD cyklu. Většina genů zapojených do synaptické signalizace vykazovala robustní denní rytmy. Tyto transkripty vytvořily dvě ostré vlny, přičemž transkripty před úsvitem (nárůst spánku) související s metabolismem a ty, které očekávaly soumrak (nával bdění), související se synaptickým přenosem. Když byly myši přechodně zbaveny spánku, translace proteinů zapojených do synaptické signalizace zůstala rytmická, zatímco geny spojené s metabolismem byly potlačeny. Spánková deprivace zrušila téměř všechny fosforylační cykly v synaptoneusomech. Autoři dospěli k závěru, že cirkadiánní hodiny přímo regulují transkripci sítě genů zapojených do synaptického přenosu a nepřímo regulují translaci prostřednictvím behaviorálního stavu. Očekává se tedy, že narušení cyklu spánek/bdění, jak je vidět u NDD, naruší časový vzorec elektrické aktivity a synaptického přenosu pozorovaného v kortikálních okruzích a změní přenos špatně složených proteinů.
Zánět
Imunitní systém se skládá z různorodé sítě buněk, tkání a orgánů (např. bílých krvinek, sleziny, brzlíku a kostní dřeně), které jsou vzájemně propojeny funkcí a synchronizovány v čase. Časový vzorec imunitní funkce je obecným rysem, přičemž cirkadiánní systém řídí aktivnější imunitní systém, když je organismus vzhůru, a tlumí jej během spánku (124, 125). V periferních orgánech je naše chápání molekulárních interakcí mezi cirkadiánními hodinami a imunitním systémem poměrně pokročilé. Například plicní zánětlivé reakce, kterým byla věnována tolik pozornosti v době COVID-19, jsou pod cirkadiánní kontrolou. Nedávná práce ukázala, že REV-ERB je kritickým regulátorem fibrózy v mezenchymálních buňkách (126). Jiné studie našly jasný důkaz, že molekulární cirkadiánní hodiny řídí expresi nebo potlačení imunitních genů (127). Kromě toho rytmická acetylace nebo metylace histonů reguluje transkripci zánětlivých genů. Existují dokonce důkazy, že proteiny cirkadiánních hodin se mohou zapojit do přímých fyzických interakcí se složkami klíčových zánětlivých drah, jako jsou členové rodiny proteinů NF-KB. Tato důvěrná souvislost mezi cirkadiánním rytmem a imunitní funkcí pravděpodobně slouží ke zvýšení ochrany během denních dob, kdy jsme ve světě, a zároveň omezuje náklady na nadměrnou stimulaci během spánku.
Neurozánět, měřený chronickou aktivací astrocytů a mikroglií, se považuje za hlavní přispěvatel k NDD (128–130). Stejně jako neurony vykazují astrocyty robustní funkci cirkadiánních hodin (131). Mozkově specifická delece BMAL1 oslabila hematoencefalickou bariéru, což způsobilo ztrátu pericytů, astrogliózu, aktivaci mikroglií a zvýšení exprese zánětlivých genů (132–134). Podobně mají mikroglie funkční cirkadiánní hodiny a zánětlivá odpověď mikroglií vykazuje cirkadiánní variace (135, 136). Jedním z klíčových objevů v této oblasti bylo, že BMAL1 KO specifický pro mozek vede k dramatické aktivaci mikroglií a degeneraci synapse (137). Nedávná práce naznačuje, že komponenta cirkadiánních hodin REV-ERB je kritickým mediátorem mikrogliální aktivace a neurozánětu. U myší způsobila delece Rev-erb spontánní mikrogliální aktivaci v hippocampu a zvýšenou expresi prozánětlivých transkriptů, stejně jako sekundární astrogliózu. Primární mikroglie Rev-erb –/– vykazovaly prozánětlivé fenotypy a zvýšenou bazální aktivaci NF-κB (138). Zdá se, že denní rytmy v mikrogliální synaptické fagocytóze jsou řízeny expresí Rev-erb. Narušení astrocytů a mikroglií způsobené NDD tedy poskytuje mechanismus, jehož prostřednictvím cirkadiánní narušení řídí zánět v mozku.
Budoucí práce
Jak je popsáno výše, existuje jasný důkaz, že pacienti s NDD vykazují narušení cyklu spánku/bdění a že ztráta funkce cirkadiánního systému pravděpodobně přispívá k těmto symptomům. Modely myší a Drosophila rekapitulují cirkadiánní dysfunkci pozorovanou u pacientů a nabízejí příležitost pro mechanistické studie. Cirkadiánní intervence jsou kritickým testem hypotézy, že cirkadiánní narušení je nedílnou součástí onemocnění [139–141]. Minimálně bychom doufali, že budeme schopni čelit poklesu cyklu spánku/bdění. Nejoptimističtější je, že bychom mohli dokonce oddálit nástup příznaků zlepšením cirkadiánní regulace proteostázy nebo snížením zánětu. Samozřejmě může být možné zlepšit kvalitu života pacientů s NDD, aniž by se změnila základní patologie onemocnění. Zvláštním problémem v této populaci je vysoký stupeň variability ve změnách cirkadiánního systému. Tato práce je v počátcích (142), protože stále pracujeme na mechanismech interakce mezi cirkadiánním načasováním a patologií NDD. Přesto časovaná léčba světlem, krmením a cvičením potenciálně nabízí levné způsoby, jak zvládnout NDD. Vzhledem k heterogenitě příznaků, které pacienti pociťují, klíč k úspěchu pravděpodobně spočívá ve stratifikaci subjektů v klinických studiích tak, aby se zaměřily na ty, kteří budou mít z konkrétní léčby největší prospěch.

Například díky našemu lepšímu pochopení role melanopsinu v cestě vstupu světla jsou velmi slibné světelné intervence, které zesilují stimulaci melanopsinu během dne a zároveň ji minimalizují v noci. Tento typ dynamického osvětlení může zlepšit spánek v noci a snížit depresi a neklid u pacientů s demencí žijících v kontrolovaném prostředí (143). Tato studie se zaměřila na podskupinu starších pacientů, kteří pociťovali poruchy spánku. V budoucí práci by PIPR mohl být použit jako obrazovka k vyloučení subjektů s narušenou detekcí cirkadiánního světla. Podobně časovaná aplikace farmakologických látek, které manipulují se signalizací melatoninu, histaminu, orexinu nebo glukokortikoidů, nabízí způsoby, jak lépe využít již zavedená léčiva. Dobu dávkování lze pravděpodobně optimalizovat tak, aby se maximalizoval terapeutický index (144–146). Například noční léčba lékem, který zvýšil hladiny histaminu, zlepšila několik behaviorálních opatření v modelu HD myší (147). Konečně existují nové třídy farmakologických látek, které přímo působí na cirkadiánní systém časování. Například, ačkoli je zapotřebí mnohem více práce, byly navrženy malé molekuly zvyšující hodiny, jako je nobiletin, citrusový flavonoid, jako léčba NDD (148, 149). Kromě toho bylo hlášeno, že agonisté REV-ERB zvyšují bdělost a snižují spánek, stejně jako chování podobné úzkosti u myší (150, 151). Abychom mohli realisticky mluvit o cirkadiánní medicíně (4), potřebujeme mít sadu pracovních nástrojů, které můžeme použít k léčbě fragmentovaných, nepravidelných rytmů s nízkou amplitudou, které vidíme u tolika pacientů s NDD.
Korespondenci zasílejte na: Christopher S. Colwell, Ústav psychiatrie a biobehaviorálních věd, Centrum pro výzkum mentálních a vývojových postižení, David Geffen School of Medicine, UCLA, 760 Westwood Plaza, Los Angeles, Kalifornie 90095, USA. E-mail: ccolwell@mednet.ucla.edu.
For more information:1950477648nn@gmail.com


