Stanovení více indexových složek a hodnocení kvality pilulek Jinkui Shenqi pomocí HPLC: v kombinaci s aktivními složkami Cistanche Tubulosa a vyhlídky na aplikaci
Jun 15, 2026
1. Úvod
Identifikace složek potravin s imunomodulačními vlastnostmi spolu s jejich příslušnými molekulárními cíli přitahuje v posledních letech zvýšený zájem. Vzhledem k jejich vysoké diverzitě ligandů představuje superrodina iontových kanálů s přechodným receptorovým potenciálem (TRP kanály) velmi zajímavou třídu potenciálních cílových struktur.
Nadrodina savčích kanálů TRP zahrnuje šest příbuzných proteinových rodin, jmenovitě ankyrinové (TRPA), kanonickou (TRPC), melastatinovou (TRPM), mukolipinovou (TRPML), polycystinovou (TRPP) a vaniloidní (TRPV) rodinu, z nichž všechny obvykle sdílejí šest transmembránových segmentů, které se skládají jako tetramery za vzniku poresekčního selektivního kationtu s permeabilitou 1. Kanál TRPV1 může být zdaleka nejintenzivněji zkoumaným členem superrodiny TRP. TRPV1 byl původně identifikován jako receptor pro kapsaicin, štiplavou složku chilli papriček.[2] Později se také ukázalo, že štiplavé přísady ze zázvoru, gingeroly, aktivují TRPV1.[3]

Biologická role TRPV1 v neneuronálních buněčných typech je stále předmětem rozsáhlého zkoumání, přesto dostupné výsledky naznačují funkce daleko za smyslovým a tepelným vnímáním. Například 12týdenní intervence s denní dávkou 0,15 mg agonisty TRPV1 nonivamidu, strukturního analogu kapsaicinu, zabránila dietou indukovanému nárůstu tělesného tuku a zvýšila hladinu serotoninu v plazmě u zdravých subjektů s nadváhou.[4]
V adipocytech 3T3-L1 aktivace TRPV1 nonivamidem snížila akumulaci lipidů během diferenciace a zrání potlačením exprese PPAR𝛾.[5] V makrofázích kapsaicin a nonivamid zeslabily LPS-indukované uvolňování prozánětlivých cytokinů, jako je IL6, CXCL8 a TNF-alfa, způsobem závislým na TRPV1.[6] Přesto konkrétní funkce TRPV1 v lidských krevních leukocytech zůstávají nejasné. V lidských NK buňkách vyvolalo 10 a 50 μM kapsaicinu zvýšení intracelulárních koncentrací Ca2+, což ukazuje na funkční kanál TRPV1.[7]
Tlumené efektorové funkce NK buněk, jako je cytotoxická degranulace a sekrece cytokinů, vyvolané předúpravou buněk kapsaicinem po dobu 1 hodiny v koncentračním rozmezí 10–100 μM, však byly do značné míry nezávislé na TRPV1.[7] U T buněk bylo prokázáno, že TRPV1 se účastní procesů signalizace receptorů T buněk, proliferace a diferenciace T buněk a také produkce cytokinů.[8] Předchozí práce naší skupiny také prokázaly funkční expresi TRPV1 v lidských primárních T buňkách.[9] Analýzy odpovědi na dávku v koncentracích od 0,03 do 300 μmol L−1 dále odhalily, že [6]-gingerol inhibuje sekreci cytokinů primárními lidskými leukocyty s hodnotou IC50 82,2 μmol L−1.
Kvantifikace [6]-gingerolu ve vzorcích plazmy zdravých subjektů však odhalila průměrnou maximální plazmatickou koncentraci pouze 42,0 ± 16,3 nmol L−1 po příjmu 1 l zázvorového čaje. Vzhledem k tomu, že tyto koncentrace [6]-gingerolu neměly v předchozích studiích žádný významný vliv na sekreci cytokinů,[9] není jasné, zda dieteticky relevantní koncentrace 50 nmol L−1, dosažená v krevní plazmě po konzumaci 1 l zázvorového čaje, je dostatečná k modulaci buněčných imunitních odpovědí v jiných lidských primárních leukocytech.

U lidských neutrofilů jsou znalosti o funkční úloze TRPV1 omezené. Zatímco Köse a Nazıroglu˘ [10] prokázali, že toky Ca2+- v neutrofilech v reakci na 10 μM kapsaicin jsou sníženy antagonistou TRPV1 kapsazepinem, jiné výsledky neprokázaly, že by kapsaicin indukoval tok Ca2+, když byl testován v koncentračním rozsahu 1M11100 μRNA detekovatelných TRPV.[i přes detekovatelnou expresi TRPV]
Neutrofily jsou nejhojnější leukocyty v lidské krvi, tvoří 60–70 % všech cirkulujících bílých krvinek. Jsou to první imunitní buňky, které se rekrutují do míst infekce; bývají proto označovány jako první linie obrany.[12] Nábor neutrofilů je spouštěn mimo jiné bakteriálním nebo z mitochondrií odvozeným peptidem N-formylmethionin-leucyl-fenylalaninem (fMLF) nebo chemokiny, jako je CXCL8 (IL-8).[13]
Mezi obranné mechanismy neutrofilů patří fagocytóza,[14] uvolňování antimikrobiálních enzymů degranulací,[15] tvorba reaktivních forem kyslíku (ROS)[16] a tvorba neutrofilních extracelulárních pastí.[17] Kromě těchto přímých obranných mechanismů neutrofily dále přispívají k následným imunitním odpovědím prostřednictvím uvolňování různých cytokinů a chemokinů.[18] Neutrofily také mohou podstoupit proces aktivace, který jim umožní silněji reagovat na následnou plnou aktivaci.[16b]
V posledních letech přibylo důkazů, že přísady z potravin a/nebo léčivých rostlin mohou modifikovat jednu nebo více z uvedených obranných reakcí lidských neutrofilů. Tyto modifikace zahrnují zvýšenou fagocytotickou aktivitu[19] a tvorbu ROS[20], rozšířenou chemotaxi směrem k fMLF[21] a tvorbu neutrofilních extracelulárních pastí[20]. Avšak aktivní sloučenina (sloučeniny) nebyla identifikována. Složky z Ferula akitschkensis (𝛽-pinen, sabinen, 𝛾-terpinen, geranylaceton a isobornylacetát) desenzibilizovaly neutrofily na příliv Ca2+ vyvolaný fMLF a CXCL8 a inhibovaly fMLF indukované účinky chemotaxe vyvolané geranylacetonem, přičemž účinky TRPV byly zprostředkovány pomocí TRPV1222.
Na základě dostupných údajů jsme předpokládali, že ligandem indukovaná aktivace TRPV1 [6]-gingerolem může ovlivnit obecné funkce neutrofilů, a to buď přímo, nebo zvýšením jejich reakcí na aktivační stimuly. V rámci této hypotézy jsme se zaměřili zejména na objasnění, zda ověřená nutričně relevantní koncentrace postačuje k modulaci buněčných imunitních odpovědí u lidských primárních neutrofilů jako součásti populace leukocytů. '
Dále jsme se snažili porovnat hladiny exprese RNA všech členů savčí superrodiny TRP v pěti nejvýznamnějších typech buněk v lidské krvi, abychom získali kvalitativně a kvantitativně komplexní přehled exprese TRP kanálu v lidských leukocytech.
2. Výsledky
2.1. Hojnost a relativní transkriptové hladiny TRP kanálů v lidských leukocytech
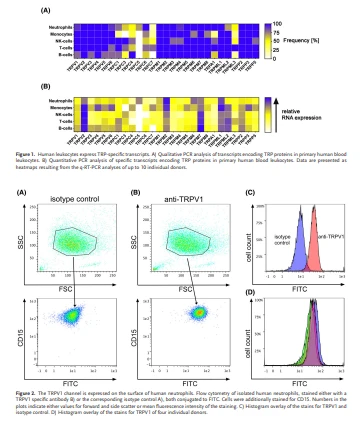
Za účelem vyhodnocení exprese RNA kanálu TRP v krevních leukocytech bylo izolováno pět nejvýznamnějších typů leukocytárních buněk z krve zdravých dárců a exprese RNA kanálů TRP byla analyzována pomocí kvantitativní RT-PCR (obrázek 1).
Specifické transkripty TRPV i rodiny TRPM byly detekovány s vysokou frekvencí 75–100 % ve všech analyzovaných typech buněk. Průměrná celková frekvence s ohledem na všechny typy buněk byla 96 % pro rodinu TRPV a 98 % pro rodinu TRPM. Transkripty specifické pro TRPC byly mnohem méně hojné, v rozmezí od 0 % v monocytech, NK buňkách, T buňkách a B buňkách do 100 % v NK buňkách a T buňkách s celkovou průměrnou frekvencí pouze 53 % (obrázek 1A). Transkript specifický pro TRPC5 byl detekován pouze v neutrofilech s frekvencí 70 %.
Také TRPA1-specifický transkript obecně odhalil poměrně nízkou hojnost v analyzovaných typech buněk s frekvencí 100 % v neutrofilech, 25 % v monocytech, 80 % v NK buňkách, 100 % v T buňkách a 60 % v B buňkách. Podobně TRPML3-specifický transkript vykazoval nízkou frekvenci v neutrofilech (50 %), monocytech (25 %), NK buňkách (40 %) a B buňkách (20 %), ale frekvenci 100 % v T buňkách. Transkript specifický pro TRPV1 byl detekován ve všech typech buněk, přičemž frekvence byla 100 % u monocytů, NK buněk a T buněk a frekvence 90 % u neutrofilů a 80 % u B buněk.
Co se týče relativní exprese RNA, ve srovnání s příslušnými frekvencemi, kanály TRP odhalily více buněčný typ exprese specifičtější, jak je zřejmé z porovnání příslušných hodnot Act v různých analyzovaných typech buněk (obrázek 1B). Například TRPP3 byl detekován s frekvencí 100 % ve všech typech buněk, ale jasně odhalil nejvyšší úroveň exprese v monocytech.
Naproti tomu kanál TRPV2 byl detekován ve všech zkoumaných typech buněk, se srovnatelně vysokou hladinou exprese RNA a také vysokou frekvencí. Podobně byly hladiny transkriptů TRPV1 podobné ve všech zkoumaných typech buněk (obrázek 1B).

2.2. Povrchová exprese TRPV1 na neutrofilech
Současné poznatky o funkci TRPV1 v lidských neutrofilech jsou stále nejasné. Abychom dále prozkoumali role TRPV1 v lidských neutrofilech, dále jsme zkoumali, zda je kanál TRPV1 exprimován na povrchu primárních lidských neutrofilů pomocí průtokové cytometrie živých buněk (obrázek 2).
Izolované neutrofily byly obarveny na CD15 jako povrchový marker pro neutrofily (obrázek 2A, B) a současně byly obarveny buď protilátkou vytvořenou proti epitopu v první extracelulární smyčce proteinu TRPV1 (obrázek 2B) nebo příslušnou izotypovou kontrolou, která sloužila jako náhrada pro měření nespecifické vazby (obrázek 2A). V populaci CD15+ byla analyzována intenzita fluorescence pro FITC. Barvení neutrofilů protilátkou TRPV1 vedlo k jasně rozlišitelnému fluorescenčnímu signálu ve srovnání s izotypovou kontrolou, čímž se potvrdila povrchová exprese TRPV1 v primárních lidských neutrofilech (obrázek 2C). Analýza neutrofilů od čtyř jednotlivých dárců odhalila srovnatelnou povrchovou expresi TRPV1 (obrázek 2D).
2.3. [6]-Gingerolem indukované zvýšení intracelulárního Ca2+
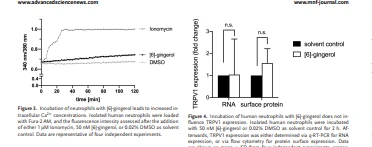
Protože ligandem indukovaná aktivace TRPV1 bude mít za následek příliv Ca2+, [23] intracelulární koncentrace Ca2+ neutrofilů byly stanoveny pomocí barviva Fura-2 citlivého na Ca2+-. Na základě našich předchozích zjištění[9] byla zvolena koncentrace 50 nM dobře známého ligandu TRPV1 [6]-gingerolu a inkubační doba 2 hodiny. Analýzy ukázaly, že inkubace neutrofilů s 50 nM [6]-gingerolem vedla ke zvýšeným intracelulárním koncentracím Ca2+, které byly v průměru 18,4 % ± 1,0 % maximální hodnoty, jak bylo stanoveno aplikací 1 μM ionoforu ionomycinu. Zvýšení vyvolané DMSO bylo 4,7 % ± 1,2 % (obrázek 3).
2.4. Vliv [6]-Gingerolu na expresi TRPV1
Dále jsme se zaměřili na analýzu dopadu stimulace TRPV1 [6]-gingerolem na expresi TRPV1 na úrovni transkriptu prostřednictvím q-RTPCR a také na úrovni povrchového proteinu prostřednictvím barvení živých buněk. Pro tento účel byly lidské neutrofily inkubovány s 50 nM [6]-gingerolem po dobu 2 hodin a byly kvantifikovány příslušné úrovně exprese.
Tato 2h inkubace neovlivnila ani transkript TRPV1, ani hladiny proteinu (obrázek 4) a také nezměnila, s výjimkou IL6, IL17A, IL24, C5 a GDF5, expresi RNA společných zkoumaných genů pro cytokiny a chemokiny (obrázek S1, tabulka S2, podpůrné informace).
2.5. Vliv [6]-Gingerolu na expresi neutrofilních povrchových markerů
1. Úvod
Identifikace složek potravin s imunomodulačními vlastnostmi spolu s jejich příslušnými molekulárními cíli přitahuje v posledních letech zvýšený zájem. Vzhledem k jejich vysoké diverzitě ligandů představuje superrodina iontových kanálů s přechodným receptorovým potenciálem (TRP kanály) velmi zajímavou třídu potenciálních cílových struktur.
Nadrodina savčích kanálů TRP zahrnuje šest příbuzných proteinových rodin, jmenovitě ankyrinové (TRPA), kanonickou (TRPC), melastatinovou (TRPM), mukolipinovou (TRPML), polycystinovou (TRPP) a vaniloidní (TRPV) rodinu, z nichž všechny obvykle sdílejí šest transmembránových segmentů, které se skládají jako tetramery za vzniku poresekčního selektivního kationtu s permeabilitou 1. Kanál TRPV1 může být zdaleka nejintenzivněji zkoumaným členem superrodiny TRP. TRPV1 byl původně identifikován jako receptor pro kapsaicin, štiplavou složku chilli papriček.[2] Později se také ukázalo, že štiplavé přísady ze zázvoru, gingeroly, aktivují TRPV1.[3]
Biologická role TRPV1 v neneuronálních buněčných typech je stále předmětem rozsáhlého zkoumání, přesto dostupné výsledky naznačují funkce daleko za smyslovým a tepelným vnímáním. Například 12týdenní intervence s denní dávkou 0,15 mg agonisty TRPV1 nonivamidu, strukturního analogu kapsaicinu, zabránila dietou indukovanému nárůstu tělesného tuku a zvýšila hladinu serotoninu v plazmě u zdravých subjektů s nadváhou.[4]
V adipocytech 3T3-L1 aktivace TRPV1 nonivamidem snížila akumulaci lipidů během diferenciace a zrání potlačením exprese PPAR𝛾.[5] V makrofázích kapsaicin a nonivamid zeslabily LPS-indukované uvolňování prozánětlivých cytokinů, jako je IL6, CXCL8 a TNF-alfa, způsobem závislým na TRPV1.[6] Přesto konkrétní funkce TRPV1 v lidských krevních leukocytech zůstávají nejasné. V lidských NK buňkách vyvolalo 10 a 50 μM kapsaicinu zvýšení intracelulárních koncentrací Ca2+, což ukazuje na funkční kanál TRPV1.[7]
Tlumené efektorové funkce NK buněk, jako je cytotoxická degranulace a sekrece cytokinů, vyvolané předúpravou buněk kapsaicinem po dobu 1 hodiny v koncentračním rozmezí 10–100 μM, však byly do značné míry nezávislé na TRPV1.[7] U T buněk bylo prokázáno, že TRPV1 se účastní procesů signalizace receptorů T buněk, proliferace a diferenciace T buněk a také produkce cytokinů.[8] Předchozí práce naší skupiny také prokázaly funkční expresi TRPV1 v lidských primárních T buňkách.[9] Analýzy odpovědi na dávku v koncentracích od 0,03 do 300 μmol L−1 dále odhalily, že [6]-gingerol inhibuje sekreci cytokinů primárními lidskými leukocyty s hodnotou IC50 82,2 μmol L−1.
Kvantifikace [6]-gingerolu ve vzorcích plazmy zdravých subjektů však odhalila průměrnou maximální plazmatickou koncentraci pouze 42,0 ± 16,3 nmol L−1 po příjmu 1 l zázvorového čaje. Vzhledem k tomu, že tyto koncentrace [6]-gingerolu neměly v předchozích studiích žádný významný vliv na sekreci cytokinů,[9] není jasné, zda dieteticky relevantní koncentrace 50 nmol L−1, dosažená v krevní plazmě po konzumaci 1 l zázvorového čaje, je dostatečná k modulaci buněčných imunitních odpovědí v jiných lidských primárních leukocytech.
U lidských neutrofilů jsou znalosti o funkční úloze TRPV1 omezené. Zatímco Köse a Nazıroglu˘ [10] prokázali, že toky Ca2+- v neutrofilech v reakci na 10 μM kapsaicin jsou sníženy antagonistou TRPV1 kapsazepinem, jiné výsledky neprokázaly, že by kapsaicin indukoval tok Ca2+, když byl testován v koncentračním rozsahu 1M11100 μRNA detekovatelných TRPV.[i přes detekovatelnou expresi TRPV]
Neutrofily jsou nejhojnější leukocyty v lidské krvi, tvoří 60–70 % všech cirkulujících bílých krvinek. Jsou to první imunitní buňky, které se rekrutují do míst infekce; bývají proto označovány jako první linie obrany.[12] Nábor neutrofilů je spouštěn mimo jiné bakteriálním nebo z mitochondrií odvozeným peptidem N-formylmethionin-leucyl-fenylalaninem (fMLF) nebo chemokiny, jako je CXCL8 (IL-8).[13]
Mezi obranné mechanismy neutrofilů patří fagocytóza,[14] uvolňování antimikrobiálních enzymů degranulací,[15] tvorba reaktivních forem kyslíku (ROS)[16] a tvorba neutrofilních extracelulárních pastí.[17] Kromě těchto přímých obranných mechanismů neutrofily dále přispívají k následným imunitním odpovědím prostřednictvím uvolňování různých cytokinů a chemokinů.[18] Neutrofily také mohou podstoupit proces aktivace, který jim umožní silněji reagovat na následnou plnou aktivaci.[16b]
V posledních letech přibylo důkazů, že přísady z potravin a/nebo léčivých rostlin mohou modifikovat jednu nebo více z uvedených obranných reakcí lidských neutrofilů. Tyto modifikace zahrnují zvýšenou fagocytotickou aktivitu[19] a tvorbu ROS[20], rozšířenou chemotaxi směrem k fMLF[21] a tvorbu neutrofilních extracelulárních pastí[20]. Avšak aktivní sloučenina (sloučeniny) nebyla identifikována. Složky z Ferula akitschkensis (𝛽-pinen, sabinen, 𝛾-terpinen, geranylaceton a isobornylacetát) desenzibilizovaly neutrofily na příliv Ca2+ vyvolaný fMLF a CXCL8 a inhibovaly fMLF indukované účinky chemotaxe vyvolané geranylacetonem, přičemž účinky TRPV byly zprostředkovány pomocí TRPV1222.
Na základě dostupných údajů jsme předpokládali, že ligandem indukovaná aktivace TRPV1 [6]-gingerolem může ovlivnit obecné funkce neutrofilů, a to buď přímo, nebo zvýšením jejich reakcí na aktivační stimuly. V rámci této hypotézy jsme se zaměřili zejména na objasnění, zda ověřená nutričně relevantní koncentrace postačuje k modulaci buněčných imunitních odpovědí u lidských primárních neutrofilů jako součásti populace leukocytů. '
Dále jsme se snažili porovnat hladiny exprese RNA všech členů savčí superrodiny TRP v pěti nejvýznamnějších typech buněk v lidské krvi, abychom získali kvalitativně a kvantitativně komplexní přehled exprese TRP kanálu v lidských leukocytech.
2. Výsledky
2.1. Hojnost a relativní transkriptové hladiny TRP kanálů v lidských leukocytech
Za účelem vyhodnocení exprese RNA kanálu TRP v krevních leukocytech bylo izolováno pět nejvýznamnějších typů leukocytárních buněk z krve zdravých dárců a exprese RNA kanálů TRP byla analyzována pomocí kvantitativní RT-PCR (obrázek 1).
Specifické transkripty TRPV i rodiny TRPM byly detekovány s vysokou frekvencí 75–100 % ve všech analyzovaných typech buněk. Průměrná celková frekvence s ohledem na všechny typy buněk byla 96 % pro rodinu TRPV a 98 % pro rodinu TRPM. Transkripty specifické pro TRPC byly mnohem méně hojné, v rozmezí od 0 % v monocytech, NK buňkách, T buňkách a B buňkách do 100 % v NK buňkách a T buňkách s celkovou průměrnou frekvencí pouze 53 % (obrázek 1A). Transkript specifický pro TRPC5 byl detekován pouze v neutrofilech s frekvencí 70 %.
Také TRPA1-specifický transkript obecně odhalil poměrně nízkou hojnost v analyzovaných typech buněk s frekvencí 100 % v neutrofilech, 25 % v monocytech, 80 % v NK buňkách, 100 % v T buňkách a 60 % v B buňkách. Podobně TRPML3-specifický transkript vykazoval nízkou frekvenci v neutrofilech (50 %), monocytech (25 %), NK buňkách (40 %) a B buňkách (20 %), ale frekvenci 100 % v T buňkách. Transkript specifický pro TRPV1 byl detekován ve všech typech buněk, přičemž frekvence byla 100 % u monocytů, NK buněk a T buněk a frekvence 90 % u neutrofilů a 80 % u B buněk.
Co se týče relativní exprese RNA, ve srovnání s příslušnými frekvencemi, kanály TRP odhalily více buněčný typ exprese specifičtější, jak je zřejmé z porovnání příslušných hodnot Act v různých analyzovaných typech buněk (obrázek 1B). Například TRPP3 byl detekován s frekvencí 100 % ve všech typech buněk, ale jasně odhalil nejvyšší úroveň exprese v monocytech.
Naproti tomu kanál TRPV2 byl detekován ve všech zkoumaných typech buněk, se srovnatelně vysokou hladinou exprese RNA a také vysokou frekvencí. Podobně byly hladiny transkriptů TRPV1 podobné ve všech zkoumaných typech buněk (obrázek 1B).
2.2. Povrchová exprese TRPV1 na neutrofilech
Současné poznatky o funkci TRPV1 v lidských neutrofilech jsou stále nejasné. Abychom dále prozkoumali role TRPV1 v lidských neutrofilech, dále jsme zkoumali, zda je kanál TRPV1 exprimován na povrchu primárních lidských neutrofilů pomocí průtokové cytometrie živých buněk (obrázek 2).
Izolované neutrofily byly obarveny na CD15 jako povrchový marker pro neutrofily (obrázek 2A, B) a současně byly obarveny buď protilátkou vytvořenou proti epitopu v první extracelulární smyčce proteinu TRPV1 (obrázek 2B) nebo příslušnou izotypovou kontrolou, která sloužila jako náhrada pro měření nespecifické vazby (obrázek 2A). V populaci CD15+ byla analyzována intenzita fluorescence pro FITC. Barvení neutrofilů protilátkou TRPV1 vedlo k jasně rozlišitelnému fluorescenčnímu signálu ve srovnání s izotypovou kontrolou, čímž se potvrdila povrchová exprese TRPV1 v primárních lidských neutrofilech (obrázek 2C). Analýza neutrofilů od čtyř jednotlivých dárců odhalila srovnatelnou povrchovou expresi TRPV1 (obrázek 2D).
2.3. [6]-Gingerolem indukované zvýšení intracelulárního Ca2+
Protože ligandem indukovaná aktivace TRPV1 bude mít za následek příliv Ca2+, [23] intracelulární koncentrace Ca2+ neutrofilů byly stanoveny pomocí barviva Fura-2 citlivého na Ca2+-. Na základě našich předchozích zjištění[9] byla zvolena koncentrace 50 nM dobře známého ligandu TRPV1 [6]-gingerolu a inkubační doba 2 hodiny. Analýzy ukázaly, že inkubace neutrofilů s 50 nM [6]-gingerolem vedla ke zvýšeným intracelulárním koncentracím Ca2+, které byly v průměru 18,4 % ± 1,0 % maximální hodnoty, jak bylo stanoveno aplikací 1 μM ionoforu ionomycinu. Zvýšení vyvolané DMSO bylo 4,7 % ± 1,2 % (obrázek 3).
2.4. Vliv [6]-Gingerolu na expresi TRPV1
Dále jsme se zaměřili na analýzu dopadu stimulace TRPV1 [6]-gingerolem na expresi TRPV1 na úrovni transkriptu prostřednictvím q-RTPCR a také na úrovni povrchového proteinu prostřednictvím barvení živých buněk. Pro tento účel byly lidské neutrofily inkubovány s 50 nM [6]-gingerolem po dobu 2 hodin a byly kvantifikovány příslušné úrovně exprese.
Tato 2h inkubace neovlivnila ani transkript TRPV1, ani hladiny proteinu (obrázek 4) a také nezměnila, s výjimkou IL6, IL17A, IL24, C5 a GDF5, expresi RNA společných zkoumaných genů pro cytokiny a chemokiny (obrázek S1, tabulka S2, podpůrné informace).
2.5. Vliv [6]-Gingerolu na expresi neutrofilních povrchových markerů
1 Nástroje a materiály
1.1 Nástroje
1.2 Referenční normy a suroviny
2 Metody a výsledky
2.1 Příprava testovacích roztoků

2.2 Příprava směsných referenčních standardních roztoků
2.3 Příprava negativních kontrolních roztoků
2.4 Chromatografické podmínky
2.5 Ověření lineárního vztahu
2.6 Metodická validace
2.6.1 Zkouška přesnosti
2.6.2 Zkouška opakovatelnosti
2.6.3 Zkouška stability
2.6.4 Test zotavení hrotu
2.8 Analýza hlavních komponent (PCA)
3 Diskuse
3.1 Výběr komponent kontroly kvality a funkční analýza aktivních složek
- Morroniside: Vykazuje antioxidační, neuroprotektivní a renální funkce zlepšující účinky.
- Loganin: Schopný regulovat imunitní funkce, vyvíjet protizánětlivou aktivitu a chránit kardiovaskulární a cerebrovaskulární systém.
- Paeonol: Poskytuje silné protizánětlivé, antibakteriální, antioxidační účinky a reguluje srážlivost krve.
- Kyselina skořicová: Posiluje imunitu, zmírňuje záněty, bojuje proti oxidaci a zlepšuje krevní oběh.
- Akteosid: Silná složka s výraznými antioxidačními, protizánětlivými a neuroprotektivními vlastnostmi.
- 7-hydroxykumarin: Má antibakteriální, protizánětlivé a imunomodulační účinky.

3.2 Optimalizace chromatografických podmínek

3.3 Vyhodnocení výsledků
Vysoce aktivní extrakt z Cistanche Tubulosa: Nejlepší zdroj vysoce koncentrovaného akteosidu pro globální vývoj rostlinných produktů

Naše výrobní a výrobní výhody
Vynikající aktivní složky extraktu z Cistanche Tubulosa
Specifikace extraktu Cistanche

Aplikace produktu pro evropské a americké trhy
- Doplněk stravy Cistanche v kapslích: Standardizováno s 75 % celkových fenylethanoidových glykosidů, 30 % echinakosidu a 12 % akteosidu. Funkce: posilují imunitu, zlepšují paměť, zmírňují únavu, působí proti stárnutí, chrání ledviny a regulují pohyb střev.
Cistanche 75 % celkových fenylethanoidových glykosidů, 30 % echinakosidu a 12 % akteosidových kapslí


- Extrakt z cistanche (potravinářský): Více specifikací pro vlastní složení, široce používané ve funkčních potravinách, přísadách do nápojů a surovinách pro péči o pleť.
- Tablety a perorální tekutina Cistanche: Zaměřeno na úlevu od zácpy, zotavení z únavy a zlepšení kognitivních funkcí.
- Bylinný likér Cistanche: Léčivá a jedlá homologní formule, oblíbená pro každodenní udržování zdraví.
Proč si vybrat náš extrakt z Cistanche Tubulosa?
- Nejvyšší obsah akteosidů: Přírodní Cistanche tubulosa ze Xinjiang Hotan má nejvyšší akumulaci akteosidů ze všech bylinných rostlin, přičemž náš vysoce kvalitní extrakt dosahuje16% obsah akteosidů, daleko převyšující konvenční rostlinné materiály.
- Kompletní průmyslový řetězec: Od výsadby surovin, extrakce, čištění až po výrobu hotových produktů, celoprocesní kontrola kvality zaručuje stabilní obsah přísad.
- Globální certifikace shody: HALAL, KOSHER, USDA Organic a certifikáty související s EU podporují hladký přístup na trh v Evropě, Americe a dalších regionech.
- Přizpůsobené služby: Poskytujeme přizpůsobené specifikace extraktů, služby OEM/ODM pro kapsle, tablety a další hotové produkty, abychom vyhověli různým potřebám vývoje produktů pro globální partnery.