Kmenovka rakoviny se setkává s imunitou: Od mechanismu k terapii (část 2)
Jun 09, 2022
Pro více informací prosím kontaktujtedavid.wan@wecistanche.com
U různých typů rakoviny se účastní makrofágové a mikrogliové dráhy a/nebo faktorypro-tumorpolarizace zahrnují dráhy STAT3, nukleární faktor (NF)-kB a PI3Ky (Kaneda et al., 2016; Qian a Pollard, 2010). Mezi nimi hraje významnou roli transkripční faktor STAT3. Makrofág STAT3 je aktivován IL-6, L-10 a/nebo exosomovým nákladem odvozeným od CSC, což vede k upregulaci genůpodporující nádorprogramování a inhibice genů kódujících protinádorové cytokiny (Malyshev a Malyshev, 2015). Inhibice STAT3 navíc ruší CSC-indukovanou polarizaci protumorových makrofágů v GBM (Gabru-siewicz et al., 2018; Wu et al., 2010; Yao et al., 2016), rakovinu močového měchýře (Kobatake et al, 2020) a rakovina prsu (Weng et al., 2019). Dráha NF-kB je nezbytná pro CSC-indukovanou polarizaci protumorových makrofágů u rakoviny vaječníků (Deng et al.2015). Stručně řečeno, studie polarizace makrofágů indukované CSC identifikovala prominentní a terapeuticky účinné dráhy makrofágů u specifických rakovin (tabulka 1).
Kliknutím sem se dozvíte více o Cistanche
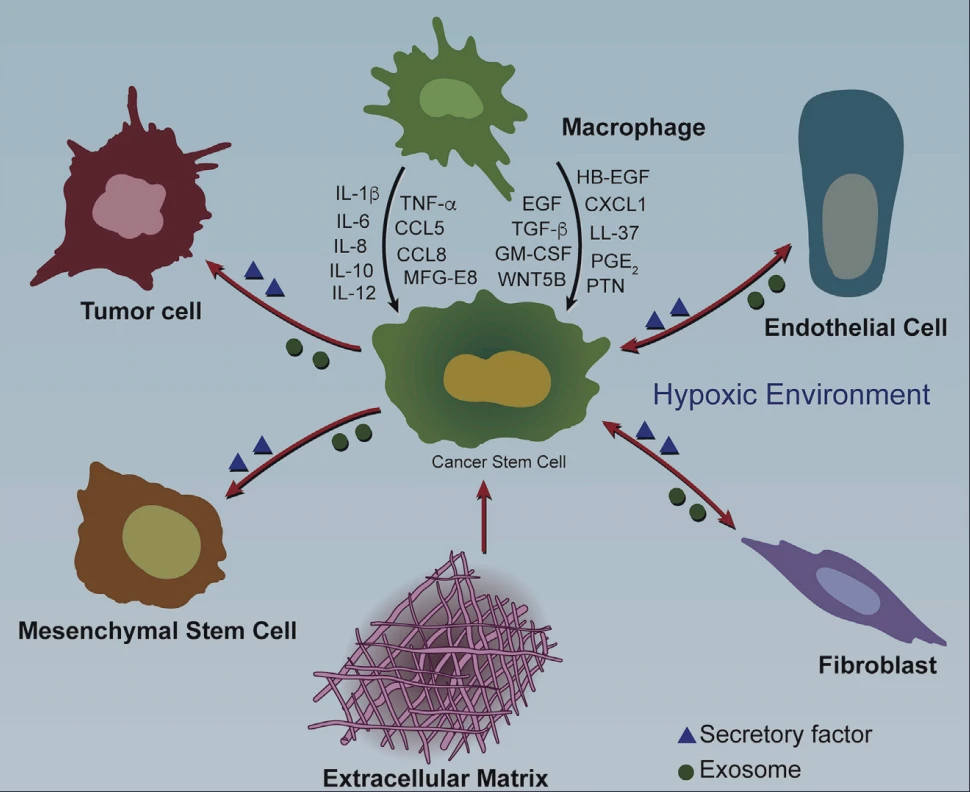
TAM podporují kmenovost rakovinných buněk a výklenku CSC TAM, která zrcadlí akce CSC, mohou podporovat kmenovost CSC a výklenek CSC (obrázek 3). Výklenek je zvláště důležitý při udržování sebeobnovy CSC, potenciálu repopulace a iniciace nádoru. Toto podpůrné mikroprostředí se skládá z rakovinných buněk, imunitních buněk, mezenchymálních kmenových buněk (MSC), fibroblastů, endoteliálních buněk a složek extracelulární matrix (ECM) (obrázek 3; Plaks et al, 2015). Parakrinní faktory odvozené z těchto různých typů stromálních buněk hrají významnou roli při podpoře kmene CSC ve výklenku. Konkrétně u rakoviny prsu a tlustého střeva přispívají MSC k tvorbě niky CSC vylučováním prostaglandinu E2 (PGE2), IL-6, IL-8 a CXCL1 (Liet al.2012). Fibroblasty mohou indukovat metastatickou niku pro karcinom prsu CSC prostřednictvím sekrece POSTN (Malanchi et al, 2011). TAM produkují faktory, které umožňují „diferencovaným“ rakovinným buňkám získat vlastnosti podobné CSC a udržovat kmen CSC u rakoviny prsu (Lu et al, 2014),spinocelulární karcinom ústní dutiny(Li et al., 2019), renální buněčný karcinom (Yang et al., 2016), hepatocelulární karcinom (HCC) (Wang et al., 2016) a rakovina slinivky (Mitchem et al., 2013). V souladu s tím vyčerpání TAM prostřednictvím inhibice receptoru faktoru 1 stimulujícího kolonie (CSF1R) a chemokinového receptoru 2 s motivem CC (CCR2) snižuje vlastnosti CSC iniciující nádor u myších modelů (Mitchem et al, 2013). V GBM podporuje TAM nika CSC závisí na jejím pronádorovém fenotypu a přeprogramování na protinádorový fenotyp (pomocí amfotericinu Bor vitamin B3) zeslabuje kmenovost rakovinných buněk a tumorigenicitu in vitro a in vivo a senzibilizuje tyto nádory k chemoterapii (Sarkar et al, 2014 ,2020). Tato zjištění zdůrazňují terapeutický potenciál narušení niky CSC prostřednictvím přeprogramování TAM směrem k protinádorovému fenotypu.

Význam TAM v biologii CSC je posílen rostoucím seznamem faktorů odvozených z TAM, které se podílejí na udržování kmene CSC. Tabulka 2 shrnuje takové faktory a jejich domnělé mechanismy v různých modelech rakoviny. EMT je důležitý proces, který umožňuje rakovinným buňkám získat vlastnosti podobné CSC a zachovat kmenovost CSC (Biddle a Mackenzie, 2012). V buňkách rakoviny prsu je EMT spojena s upregulací CD90 a EphA4, které zprostředkovávají fyzické interakce mezi CSC a TAM (Lu et al, 2014). Výsledkem je, že TAM mohou dále urychlovat EMT buněk rakoviny prsu, a tak indukovat smyčku pozitivní zpětné vazby k posílení kmene CSC prostřednictvím sekrece panelu cytokinů podporujících CSC, jako jsou IL-6, IL-8 a IL-1 (Guo et al., 2019a; Let al., 2014; Valeta-Magara et al., 2019). Podobně hromadící se důkazy ukazují, že TAM v GBM (Hide a kol., 2018), HCC (Fan a kol., 2014; Wan a kol., 2014), rakovině slinivky (Nomura a kol., 2018; Saint al., 2015; Zhang a kol. .,2019a) a rakovina vaječníků (Raghavan et al.,2019) může podporovat EMT rakovinných buněk a/nebo vylučovat řadu cytokinů podporujících CSC (včetně IL-1, IL-6 a TGF -), čímž se podporuje kmenovost CSC, progrese nádoru a odolnost vůči terapii. Kromě cytokinů mohou TAM specificky produkovat jedinečné faktory na podporu kmenovosti CSC. Například CCL5, pleiotropin (PTN), globule-epidermální růstový faktor-Val (MFG-E8) a CCL8 jsou přednostně exprimovány a secernovány TAM u rakoviny prostaty (Huang et al, 2020), lymfomu (Wei et al, 2019b ), kolorektální karcinom (CRC) (Jinushi et al, 2011) a GBM (Zhang et al, 2020), v tomto pořadí, kde podporují kmenovost CSC a progresi nádoru. Konečně, kromě rozpustných faktorů, TAM mohou podporovat kmen CSC prostřednictvím přímých interakcí. Konkrétně u rakoviny prsu, jater a sinusoidních endoteliálních buněk lymfatických uzlin typu C je lektin transmembránový protein vysoce exprimovaný na TAM, který interaguje s hydrofilním 3členným receptorem podrodiny A3 na rakovinných buňkách, aby se zvýšila kmenovost (Liu et al., 2019) . Faktory odvozené z TAM a fyzické interakce TAM s rakovinnými buňkami aktivují několik drah v rakovinných buňkách, které jsou klíčové pro udržení kmene. Tyto klíčové dráhy CSC zahrnují STAT3, SHH a NOTCH (Han a kol., 2015; Hirata a kol., 2014; Zhang a kol., 2019b), stejně jako PI3K/AKT, WNT/-catenin a NANOG (Morgan a kol. al, 2018; Wang et al, 2010b, 2019a; Wei et al, 2013; Zhang et al, 2019c). Dostupné důkazy podporují názor, že faktory odvozené od TAM aktivují tyto cesty ke zvýšení nebo udržení kmene CSC (tabulka 2). Mezi nimi se STAT3 jeví jako nejdůležitější v důsledku své silné upregulace genů souvisejících s kmenovostí a aktivace drah podporujících kmenovost, jako je NF-kB (Galoczova et al.2018). Inhibice STAT3/NF-kB tedy ruší kmenovost u rakoviny prsu podporovanou TAM (Lu a kol., 2014; Val-eta-Magara a kol., 2019; Yang a kol., 2013), HCC (Li a kol., 2017; Wan et al, 2014), rakovinu prostaty (Huang et al, 2020), rakovinu slinivky (Mitchem et al, 2013; Nomura et al., 2018) a CRC (Jinushi et al, 2011). Dráhy WNT/-catenin a SHH mohou v některých situacích také podporovat kmen CSC. Aberantní aktivace signalizace WNT, běžná u mnoha typů nádorů, často definuje stav CSC a udržení biologie CSC (de Sousa E Melo a Vermeulen, 2016). Systémy buněčných kultur a myších modelů ukazují, že TAM aktivují WNT/-kateninovou dráhu v CSC a inhibice této dráhy zhoršuje TAM-indukovanou upregulaci kmene CSC u HCC (Chen et al., 2019b), rakovině prostaty (Huang et al., 2020) a lymfom (Wei et al, 2019b). Podobně se dráha SHH podílí na regulaci kmene CSC buď přímo, nebo prostřednictvím interakce s jinými drahami souvisejícími s kmenem, jako je TGF- (Takebe et al., 2015). Co se týče kmene CSC podporovaného TAM, CRC spoléhá na dráhu SHH (Jinushi et al, 2011), rakovina pankreatu na dráze TGF- 1/SMAD2/3/NANOG (Zhang et al, 2019a), HCC na dráha NOTCH (Wang et al. 2016), rakovina prsu na sarkomu v-src (Schmidt-Ruppin A-2), dráha homologu virového onkogenu (ptačí) (SRC) (Lu et al., 2014) a gliom na extracelulární regulované dráze kinázy 1/2 (ERK1/2) (Zhang et al. 2020). Souhrnně tato zjištění zdůrazňují STAT3/NF-kB a WNT/-catenin jako klíčové dráhy zodpovědné za TAM-indukovanou CSC stopku. Různorodost cest napříč mnoha rakovinami však podtrhuje potřebu vyvinout kontextově specifické strategie pro jejich zacílení.
CSC-MDSC přeslech
Vliv CSC na biologii MDSC
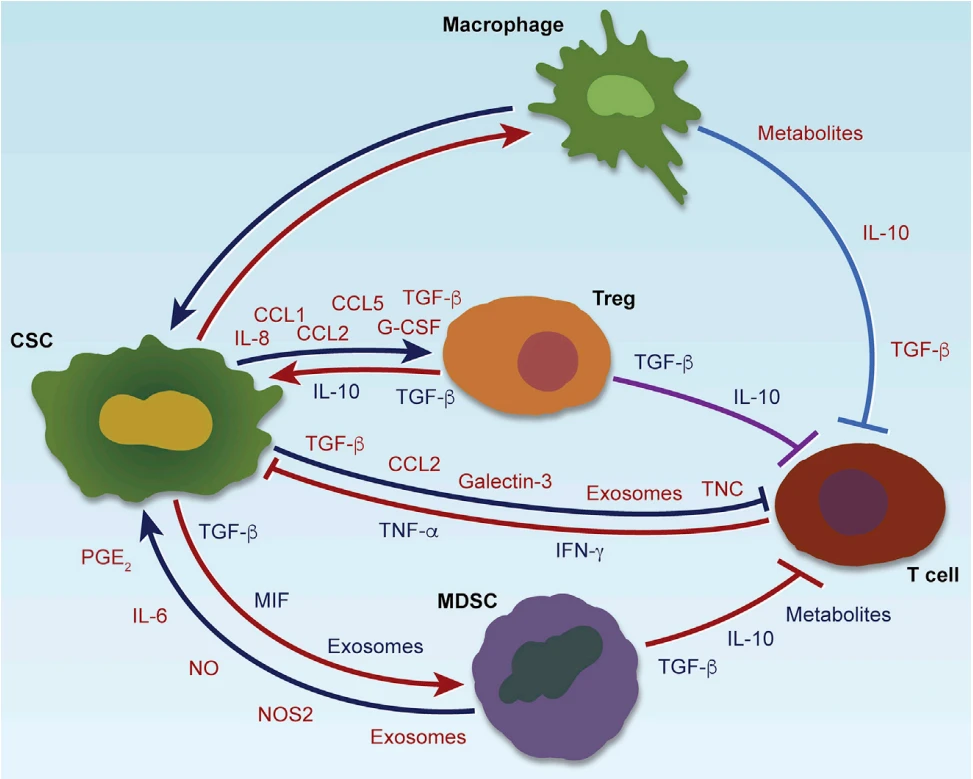
MDSC jsou heterogenní populace myeloidních buněk, která zahrnuje granulocytární nebo polymorfonukleární (PMN-MDSC) a monocytární (M-MDSC) podskupiny (Gabrilovich a Nagaraj 2009). PMN-MDSC tvoří více než 80 procent všech MDSC a M-MDSC se mohou diferencovat na TAM (Gabrilovich, 2017; Kumar et al., 2016). MDSC jsou generovány v kostní dřeni a rekrutovány do nádorůchemokiny odvozené od nádorůjako CCL2 a CCL5. Podobně jako TAM hrají MDSC důležitou roli v regulaci nádorové angiogeneze, růstu, metastáz a imunitní suprese (Gabrilovich, 2017; Kumar et al 2016). Stále více důkazů také odhalilo symbiotické interakce mezi CSC a MDSC v TME, kde CSC přispívají k infiltraci, expanzi a aktivaci MDSC prostřednictvím sekrece rozpustných faktorů a exozomů u různých typů rakoviny (obrázek 4; tabulka 3). U SCCHN ve srovnání s buňkami CD44 vylučují CD44* CSC vyšší hladiny IL-8, faktoru stimulujícího kolonie granulocytů a makrofágů (GM-CSF) a TGF- a indukují větší populace MDSC, když jsou společně kultivovány s mononukleární buňky periferní krve (PBMC) (Chika-matsu et al., 2011). V GBM GSC nejen podporuje diferenciaci PBMC na M-MDSC prostřednictvím sekrece exozomů (Do-menis et al., 2017), ale také aktivuje MDSC k potlačení imunitních reakcí prostřednictvím sekrece inhibičního faktoru migrace makrofágů (MIF) (Otvos et al, 2016). U melanomu je exprese miR-92 v CD133 plus CSC snížena ve srovnání s buňkami CD133-, což zvyšuje expresi TGF- prostřednictvím x5 integrin/SMAD2 dráhy, což vede k většímu počtu PMN-MDSC v TME (Shidal et al, 2019). MDSC Propagujte kmenovost CSC
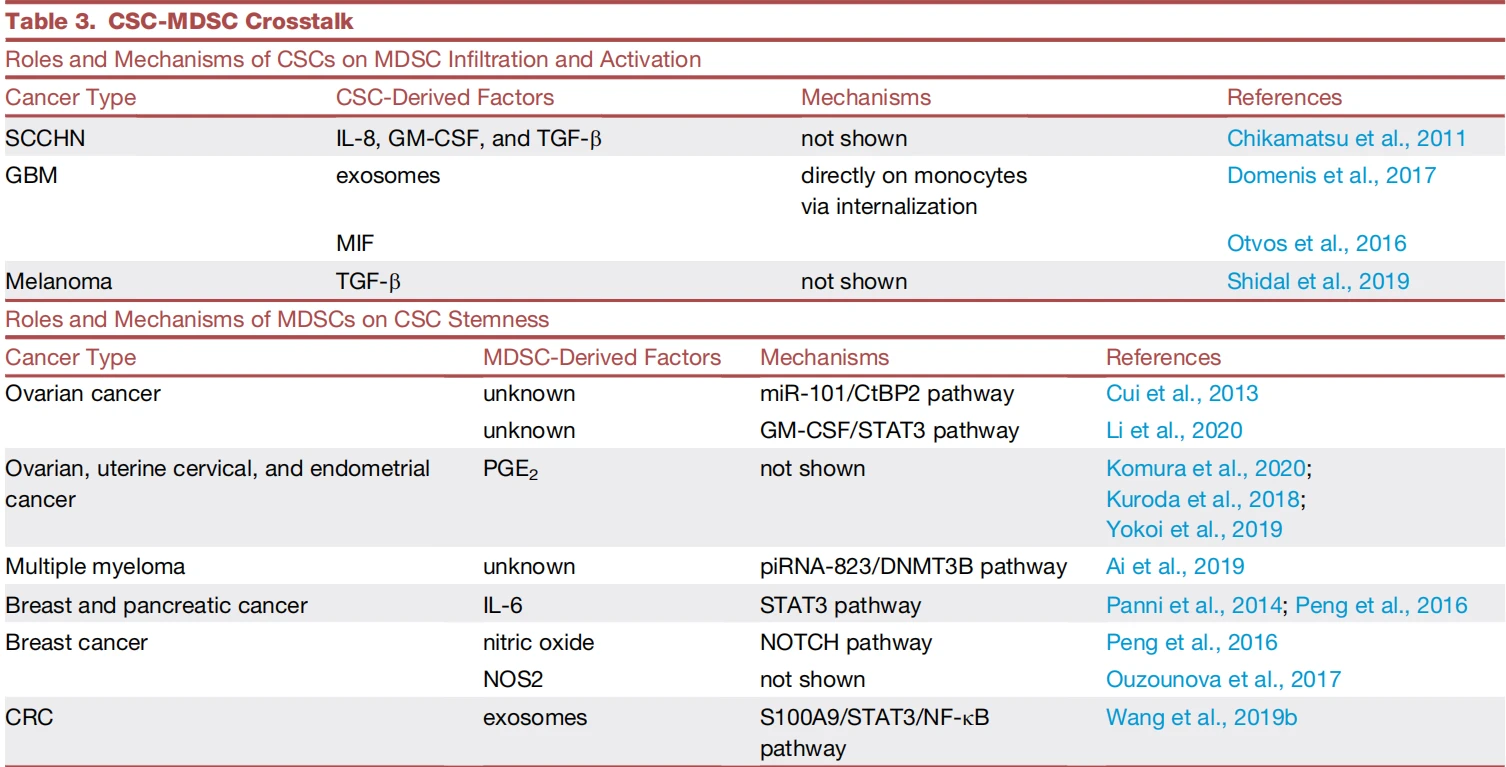
Jakmile MDSC infiltrují do TME, mohou recipročně podporovat kmen CSC prostřednictvím odlišných mechanismů u řady typů rakoviny (obrázek 4; tabulka 3). U rakoviny vaječníků indukují MDSC expresi miR-101 a GM-CSF v rakovinných buňkách, což zvyšuje kmenovost prostřednictvím upregulace C-terminálního vazebného proteinu korepresorového genu-2 (CtBP2) (Quiet al, 2013) a aktivaci dráhy STAT3 (Li et al., 2020), resp. U mnohočetného myelomu spouštějí PMN-MDSC expresi RNA piRNA -823 působící na piwi v rakovinných buňkách, což podporuje kmenovost prostřednictvím aktivace DNA methyltransferázy 3B (DNMT3B) k usnadnění methylace DNA (Ai et al., 2019 ). Ačkoli tyto údaje zdůrazňují zásadní roli MDSC při podpoře kmene rakovinných buněk, identity faktorů odvozených od MDSC u těchto typů rakoviny se stále objevují. Je třeba poznamenat, že STAT3 se opět zdá být jednou z klíčových cest odpovědných za stopku. U rakoviny prsu a slinivky vylučují MDSC IL-6 (u obou typů rakoviny) a oxid dusnatý (u rakoviny prsu), aby aktivovaly dráhy STAT3 a NOTCH pro podporu stopkovitosti (Panini et al, 2014; Peng et al, 2016) . U rakoviny prsu aktivovaný STAT3 podporuje aktivaci NOTCH, což zase usnadňuje trvalou aktivaci STAT3, čímž vytváří zpětnovazební smyčku pro posílení kmene (Peng et al., 2016). Kromě kmene může NOS2 odvozený od M-MDSC také podporovat EMT prostřednictvím aktivace dráhy STAT3, která řídí šíření rakovinných buněk a metastázy (Ouzounova et al, 2017). V CRC mohou PMN-MDSC vylučovat exosomální S100A9 k podpoře rakoviny buněčná kmenovost prostřednictvím aktivace drah STAT3 a NF-kB, která je dále amplifikována za hypoxických podmínek (Wang et al., 2019b),
stanovení NF-kB v MDSC-indukovaném kmenu. Ve skutečnosti jsou MDSC hlavním zdrojem PGE u několika typů rakoviny (např. rakoviny vaječníků, děložního čípku a endometria; Komura a kol., 2020; Kuroda a kol., 2018; Yokoi a kol., 2019), které mohou podporovat kmenovost rakovinných buněk aktivací NF-B prostřednictvím prostanoidního receptoru 4 (EP4)-Pl3K a EP4-mitogenem aktivované proteinkinázy (MAPK) typu E (Wang et al, 2015). Základem interakcí MDSC-CSC je tedy řada faktorů a drah a STAT3 a NF-kB jsou opět velmi výrazné.
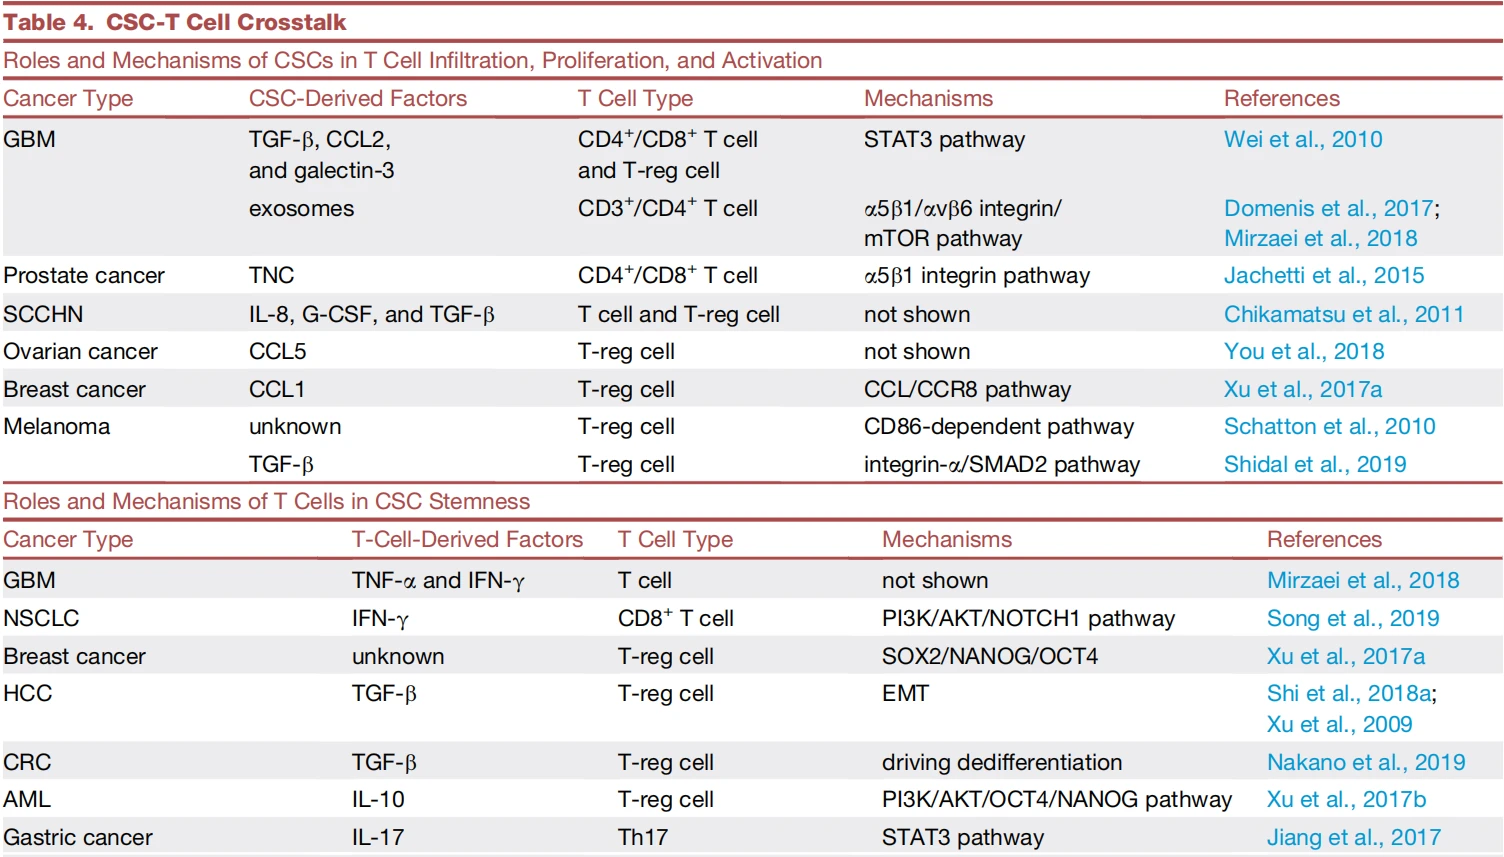
CSC-T Cell Crosstalk
Vliv CSC na biologii T buněk
Výpočtové analýzy také odhalily korelace mezi kmenovostí rakovinných buněk aCD8t T buňkyu široké škály typů rakoviny (Miranda et al., 2019). U SCCHN, GBM a melanomu koreluje vysoká kmenovost s nízkou expresí antigenů spojených s rakovinou a imunostimulačních molekul (např. CD{3}}, CD40, hlavní histokompatibilní komplex [MHC] II, transportér spojený se zpracováním antigenu, histokompatibilní leukocytový antigen [HLA]-A2, melanomový antigen rozpoznávaný T-buňkami 1, melanomový inhibitor apoptózy, newyorský spinocelulární karcinom jícnu 1 a melanom- asociovaný antigen-A) a vysokou expresi inhibitorů imunitního kontrolního bodu (např. PD-L1; Chikamatsu et al., 2011; Schatton et al., 2010; Wei et al., 2010). V souladu s těmito koreláty CSC regulují složení a funkci T buněk prostřednictvím několika experimentálně ověřených mechanismů (obrázek 4; tabulka 4). Za prvé, v GBM GSC produkují TGF-, CCL2 a galektin-3, které potlačují aktivaci a proliferaci T buněk CD8 plus a CD4 plus (Wei et al, 2010). Za druhé, GSC exosom tenascin-C (TNC) zapojuje x5 1 a 5 6 integriny na T buňkách, aby downregulovaly signalizaci AKT/mTOR a inhibovaly aktivaci a proliferaci T buněk (Domenis et al, 2017; Mizaei et al, 2018). A konečně, u rakoviny prostaty CSC vylučují TNC, aby inhibovaly aktivaci a proliferaci CD8 plus a CD4 plus T buněk prostřednictvím interakce s x5 1 integrinem na T buňkách (Ja-chetti et al., 2015).

T-reg buňky jsou imunosupresivní podskupinouCD4 plus T buňkycharakterizované expresí forkhead box P3 (FoxP3) a podporou nádoru prostřednictvím inhibice efektorových T buněk (Togashi et al, 2019). CSC přitahují a aktivují T-reg buňky prostřednictvím různých rozpustných faktorů (obrázek 4; tabulka 4), včetně zejména TGF-, který řídí nábor a expanzi T-reg buněk. Například CSC mohou produkovat vysoké hladiny TGF- v SCCHN (Chikamatsu et al., 2011), GBM (Wei et al., 2010) a melanomu (Shidal et al., 2019), což zase podporuje buňky T-reg nábor a expanze prostřednictvím aktivace a5 integrinu/matek proti dráze dekapentaplegického homologu 2 (SMAD2), čímž indukuje apoptózu T buněk a inhibuje proliferaci a aktivaci T buněk. Kromě toho se ukázalo, že několik členů rodiny chemokinů CC, jako je CCL1 (Xu et al, 2017a), CCL2 (Wei et al., 2010) a CCL5 (You et al., 2018), je vysoce produkováno CSC v různé typy rakoviny, kde mohou stimulovat infiltraci T-reg buněk do TME. TGF- a specifické chemokiny secernované CSC společně hrají klíčovou roli při získávání a expanzi buněk T-reg v TME. T buňky regulují kmenovost CSC

Objevující se důkazy ukazují, že různé podskupiny T buněk mohou regulovat kmenovost CSC (obrázek 4; tabulka 4). V GBM médium kondicionované T-buňkami inhibuje samoobnovu GSC prostřednictvím sekrece TNF- a interferonu (IFN)-r (Mirzaeiet al, 2018). InNSCLC, CD8 plus T-buňky jsou hlavními zdroji IFN-Y, kde je nízká hladiny IFN- podporují kmenovost CSC prostřednictvím aktivace dráhy PI3K/AKT/NOTCH1 a vysoké hladiny IFN-y indukují apoptózu rakovinných buněk prostřednictvím aktivace dráhy Janus kinázy 1 (JAK1)/STAT1/kaspázy (Song et al., 2019 U rakoviny slinivky břišní produkují infiltrující Th2 buňky cytokiny-4 a IL-13 k aktivaci dráhy JAK1/STAT6 v rakovinných buňkách, což zase zvyšuje glykolýzu řízenou MYC (Dey et al, 2020), anabolický proces, který podporuje kmenovost CSC (Chen et al, 2020b; Sancho et al., 2015). Kromě sekrece rozpustných faktorů mohou T buňky regulovat kmenovost CSC prostřednictvím přímého kontaktního mechanismu mezi buňkami u rakoviny prsu, kde příbuzné nelytické interakce mezi CD8 plus T buňkami a rakovinnými buňkami mohou podporovat kmenovost rakovinných buněk (Stein et al., 2019).
Kromě efektorových T buněk mohou kmenovost regulovat také T-reg buňky a Th17 buňky. Například u AML buňky T-reg vylučují IL-10, aby podpořily kmenovost leukemických kmenových buněk prostřednictvím aktivace dráhy PI3K/AKT/OCT4/NANOG (Xu et al., 2017b). Účinek T-reg buněk podporující kmenovost je také pozorován u rakoviny prsu, kde rozpustné faktory neznámých buněk reg upregulují dráhy související s kmenem: SOX2; NANOG; a OCT4 (Xu et al, 2017a). V HCC vylučují T-reg buňky TGF-, aby podpořily kmenovost CSC podporou EMT (Shi et al, 2018a; Xu et al, 2009), zatímco v CRC T-reg- z buněk odvozený TGF- řídí dediferenciaci rakovinných buněk (Nakano et al, 2019), což naznačuje kontextově specifické působení TGF- v CSC. Tato pozorování jsou v souladu se známými vysoce kontextovými funkcemi TGF- u rakoviny (Massagué, 2008). Ačkoli Th17 je podskupinou T-pomocných buněk, které zprostředkovávají protinádorové imunitní reakce (Guery a Hugues, 2015), IL-17 z buněk Th17 nebo CD4 plus T-buněk také podporuje kmen CSC prostřednictvím aktivace NF-kB a p38 MAPK dráhy u rakoviny vaječníků a slinivky (Kiang et al., 2015; Zhang et al, 2018) a STAT3 dráha u rakoviny žaludku (Jiang et al., 2017). Kromě toho může být IL-17 upregulován v buňkách T-reg za hypoxických podmínek, což zase podporuje kmenovost CSC u CRC (Yang et al., 2011). Různé podskupiny T buněk tedy přispívají k udržování CSC prostřednictvím různých mechanismů zahrnujících rozpustné faktory a kontakt mezi buňkami.
Terapeutický potenciál zachyceníCSC-ImmuneCell Crosstalk
Cílení přeslechů CSC-TAM
Hlavní preklinické a klinické úsilí se snažilo zaměřit se na odlišné biologické charakteristiky a klíčové signální dráhy CSC a TAM, jak bylo uvedeno dříve (Agliano et al., 2017; Pathria et al., 2019; Zhao et al., 2018). Jak je shrnuto na obrázku 5, klinické studie, které mohou cílit na biologii CSC, zahrnují inhibitory drah SHH, NOTCH, WNT/-catenin, STAT3 a NANOG (Agliano et al., 2017; Zhao et al., 2018) a anti-CD44 protilátky (Menke-van der Houven van Oordt et al., 2016). K dnešnímu dni byl inhibitor SHH, vismodegib, schválen pro metastatický nebo lokálně pokročilý bazaliom (Sekulic et al., 2012) a probíhají klinické studie látek zaměřených na získávání makrofágů (CR2, CXCR4, integrinová podjednotka alfa 4 [ITGA4 ] a inhibitory ITGA5), polarizace (toll-like receptor 4 [TLR4], aktivátory TLR7, TLR9 a CD40 a inhibitor PI3Ky) a přežití (inhibitory CSF1R; Gregoire et al., 2020; Pathria et al., 2019). Navzdory přitažlivosti látek cílených na CSC však nebyly pozorovány dramatické reakce, možná kvůli nedostatku skutečně specifických cílů CSC (Agliano et al., 2017; Turdo et al., 2019) a také vysoké plasticitě CSC, který umožňuje ztrátu a opětovné získání kmene
za různých podmínek TME (Agliano et al., 2017;Müller et al., 2020; Plakset al., 2015). Podobně terapie cílené na TAM, jako je inhibice CSF1R, ukázaly mizivé protinádorové reakce u GBM částečně kvůli rezistence udělená aktivovanou signalizací Pl3K v gliomových buňkách (Quail et al, 2016).
Je lákavé spekulovat o tom, že cílenější cílení na propletené ko-závislosti CSC a TAM a jejich plasticitu ve specifických kontextech by mohlo přinést robustnější odpovědi. Například IL-6/STAT3 a Pl3K jsou nezbytné pro regulaci jak kmene CSC, tak polarizace protumoru makrofágů u mnoha typů nádorů; inhibice těchto drah prokázala protinádorovou aktivitu (Agliano et al., 2017; Kobatake et al., 2020; Pathria et al., 2019; Weng et al., 2019). Kromě toho by výběr pacientů s vysokými podpisy CSC a TAM mohl zlepšit reakce na látky zacílené na tyto dráhy (Agliano et al, 2017; Pathria et al, 2019). Takové studie by mohly dále těžit z farmakodynamického hodnocení, zda tyto látky mohou modulovat tyto dráhy as nimi související biologii nádoru (obrázek 5). A konečně, vzhledem k plasticitě tohoto systému by tyto farmakodynamické studie měly být doplněny integrovanými omickými analýzami adaptivních odpovědí na tyto terapeutické intervence, které mohou dále informovat o kombinačních studiích synergických činidel.
Atraktivní strategie k narušení přeslechu CSC-TAM může zahrnovat blokádu dráhy CD47-signálního regulačního proteinu alfa (SIRPa). CD47 je transmembránový protein exprimovaný na CSC a rakovinných buňkách, který funguje jako signál „nejez mě“ (Cioffi et al. 2015); interakce CD47 se SIRPa na makrofázích vede k inhibici fagocytózy pomocí TAM (Matozaki et al, 2009). Anti-CD47 terapie zvyšuje fagocytózu CSC in vitro a snižuje nádorovou zátěž in vivo (Chan et al., 2009; Cioffi et al., 2015; Majeti et al., 2009), která se dále zvyšuje, když je tato terapie kombinována s chemoterapií (Cioffi et al, 2015). Probíhá několik klinických studií testujících monoklonální protilátky proti CD47 (Hu5F9-G4, SFR231, CC-90002 a IBlI188) a inhibitory malých molekul (TTI-621 a ALX148) (obrázek 5 Gregoire a kol., 2020; Pathria a kol., 2019). Další příležitost k narušení přeslechů CSC-TAM se soustředí na zacílení rozpustných faktorů, které recipročně podporují každý typ buňky. Například bylo prokázáno, že inhibice CSC-specifického POSTN a jeho související dráhy (Zhou et al, 2015) nebo CCL5 odvozeného z TAM (Huang et al, 2020) přerušuje přeslechy CSC-TAM, potlačuje růst nádoru a prodlužuje přežití. na myších modelech GBM a rakoviny prostaty.

Obecněji řečeno, standardní chemoterapie prokázaly omezený příslib pro pokročilé metastatické onemocnění kvůli těžké toxicitě a rychlému rozvoji rezistence. Protože CSC a TAM hrají kritickou roli ve vývoji lékové rezistence (Agliano et al., 2017; De Palma a Lewis, 2013), narušení přeslechu CSC-TAM by mohlo zlepšit její odpověď na chemoterapii. Podle těchto linií CSC v chemorezistentních nádorech vylučují cytokiny, aby vytvořily protumorogenní mikroprostředí vychýlením makrofágů směrem k fenotypu nádoru zástěry (Yama-shiniest al., 2014). Deplece TAM skutečně snižuje CSC kmenovost inhibuje metastázy a zlepšuje chemoterapeutickou odezvu u rakoviny pankreatu (Mitchem et al, 2013). Mechanicky TAM podporují kmenovost CSC a chemorezistenci prostřednictvím uvolňování MFG-E8, který může spustit aktivaci drah STAT3 a SHH v CSC CRC (Jinushi et al, 2011). Rostoucí důkazy tedy poukazují na potenciál zacílení okruhů CSC-TAM pro nové způsoby léčby rakoviny a také pro zvýšení účinnosti chemoterapie.
CíleníCSC-MDSCPřeslechy
Důležitost MDSC při podpoře růstu nádoru, metastáz, angiogeneze, kmenovosti CSC a potlačení imunity motivovala testovací látky, které inhibují MDSC (Fleming et al, 2018). Strategie inhibice MDSC se zaměřují na nábor (např. inhibice CCR5 a CXCR2), podporují depleci (např. inhibitory tyrozinkinázy a chemoterapeutika) a blokují imunosupresivní aktivitu (např. inhibice STAT3, fosfodiesterázy-5 a třídy I histon deacetylázy; Fleming et al., 2018). Vývoj terapií cílených na MDSC je však brzděn heterogenitou MDSC a nedostatkem buněčných markerů (Lu et al., 2019). To znamená, že MDSC jsou heterogenní nezralé myeloidní buňky složené z PMN-MDSC a M-MDSC, které mají odlišné biologické funkce. Současní MDSC-cílení agenti mohou cílit jak na MDSC podskupiny, tak na jiné typy buněk v TME. Kromě toho nedostatek specifických markerů pro lidské MDSC a identifikace ekvivalentních myších MDSC brání translačnímu výzkumu. Konečně, hustota a aktivační stavy MDSC se mohou v TME dynamicky měnit.
Bez ohledu na tyto výzvy stojí za zvážení několik strategií zaměřených na přeslechy CSC-MDSC. Jednou strategií by bylo zaměřit se na STAT3, který je duálně nezbytný pro udržování CSC a infiltraci/aktivaci MDSC, a inhibice STAT3 prokázala silnou protinádorovou aktivitu spojenou s narušeným kmenem CSC a infiltrací/aktivací MDSC u modelů myší s rakovinou (Fleming et al. , 2018; Peng a kol., 2016). Druhou strategií by bylo zaměřit se na rozpustné faktory podporující přeslechy CSC-MDSC. Například inhibice CSC odvozeného MIF nebo MDSC odvozeného IL-6 prodlužuje přežití u myších modelů GBM (Otvos et al., 2016) a rakoviny prsu (Peng et al., 2016). Třetí strategie by zahrnovala neutralizaci symbiózy CSC-MDSC stimulované exosomy. Konkrétně knockdown S100A9 v exozomech MDSC zhoršuje aktivaci STAT3 a inhibuje růst nádoru u myších modelů CRC (Wang et al, 2019b). Tyto různé mechanické poznatky společně poukazují na narušení dráhy IL-6/STAT3 jako na strategii, jak interferovat s přeslechy CSC-MDSC a inhibovat růst nádoru. CíleníCSC-T CellPřeslechy
Symbiotické interakce mezi CSC a T buňkami mohou také nabídnout několik přesných terapeutických strategií. Za prvé, u rakoviny prsu se ukázalo, že blokáda podpůrných faktorů T-reg buněk odvozených od CSC, jako je CCL1, významně inhibuje růst nádoru a infiltraci T-reg buněk (Xu et al, 2017a). Podobný protinádorový účinek byl pozorován u myšího modelu rakoviny slinivky břišní inhibicí kmenových faktorů pocházejících z T-buněk, jako je IL pocházející z Th17 buněk-17, který dramaticky narušil růst nádoru a CSC stonkovitost (Xiang et al, 2015). Druhým přístupem je využít potenciál imunoterapie na bázi T-buněk, zejména inhibice imunitního kontrolního bodu (ICI). Protinádorová účinnost ICls souvisí s expresí molekul imunitního kontrolního bodu, jako je PD-L1, v TME (Ravindran et al., 2019). Po aktivaci drah STAT3 a NOTCH3/mTOR (Lee et al., 2016; Mansour et al., 2020) CSC exprimují vyšší hladiny PD-L1 ve srovnání s non-CSC u mnoha typů rakoviny, včetně GBM, melanomu, SCCHN, CRC , rakovina prsu, rakovina žaludku a rakovina vaječníků, u kterých může PD-L1 dále podporovat kmenovost CSC, a tak indukovat smyčku pozitivní zpětné vazby (Gao a kol., 2019; Gupta a kol., 2016; Ravindran a kol., 2019; Wei et al., 2019a). Kromě toho mohou být hladiny PD-L1 amplifikovány po interakcích symbiotických CSC-imunitních buněk. Například MDSC mohou podporovat kmenovost a upregulovat PD-L1 v CSC prostřednictvím aktivace dráhy PI3K/AKT/mTOR (Komura et al, 2020). V důsledku toho CSC vylučují exozomy, aby upregulovaly PD-L1 v makrofázích prostřednictvím aktivace dráhy STAT3 (Gabrusie-wicket al, 2018). Tato zjištění společně poukazují na potenciální užitečnost IClagentů, koncept podporovaný anti-PD1 terapií zvýšením protinádorové aktivity CSC vakcíny u myšího modelu rakoviny močového měchýře (Shi et al., 2018b). Třetím přístupem by byl vývoj kombinovaných terapií zaměřených na přeslech CSC-imunitní buňky a imunitní kontrolní body. JIP produkují pozoruhodné reakce u některých pacientů s rakovinou; většina pacientů však nemá odpovědi. Mechanistické studie ukázaly, že účinnost JIP je vysoce závislá na TME (Murciano-Goroff et al., 2020). TAM, MDSC a T-reg buňky jsou nejvýznamnější imunitní buňky v TME, kde tvoří symbiotické interakce s CSC, vzájemně se ovlivňují a potlačují funkci T buněk (obrázek 4). Mechanicky mohou TAM a MDSC potlačit protinádorové imunitní reakce zprostředkované T-buňkami vysokou expresí molekul imunitního kontrolního bodu (např. PD-L1, PD-L2, CD80 a CD86), produkcí imunosupresivních cytokinů (např. IL-10 a TGF-) a nábor imunosupresivních T-reg buněk do TME (Engblom et al., 2016; Kumar et al., 2016; Manto-vani et al, 2017). Tyto studie zdůrazňují příslib terapií cílených na TAM nebo MDSC pro zlepšení účinnosti ICl. Rostoucí množství důkazů skutečně ukazuje, že terapie cílené na makrofágy, jako je aktivace fagocytózy makrofágů (Lian et al., 2019; Liu et al., 2018) nebo přeprogramování TAM z pro- na protinádorové fenotyp (Baer et al., 2016; Guerriero et al., 2017; Kaneda et al., 2016; Zhu et al., 2014), synergizují s ICls v mnoha modelech myší s rakovinou. Podobně terapie cílené na MDSC inhibicí infiltrace MDSC (Flores-Toro et al., 2020; Highfillet al., 2014; Liao et al., 2019; Zhao et al., 2020) nebo blokováním aktivace MDSC (Davis et al, 2017; Liu a kol., 2020; Lu a kol., 2017), ukazují robustní synergii s JIP v myších modelech. Tyto preklinické studie podnítily studie kombinované terapie pro mnoho typů rakoviny (Hou a kol., 2020; Pathria a kol., 2019).
Závěrečné poznámky a výhledy do budoucna
Genetické paradigma dominovalo našemu přístupu k léčbě rakoviny a generovalo mnoho látek zacílených na onkogenní události v rakovinných buňkách. V posledních letech úspěch cílení imunity a angiogeneze zvýšil zájem o cíle působící v ekosystému TME. Tento přehled konkrétně katalogizoval molekulární obvody, které jsou základem recipročních interakcí mezi CSC a imunitními buňkami, včetně TAM, MDSC a T buněk, při udržování nádoru. Tento obousměrný přeslech se projevuje na několika úrovních, včetně CSC řízeného náboru a aktivace imunitních buněk a role těchto imunitních buněk při podpoře kmene rakovinných buněk a vytvoření podpůrné niky CSC. Molekulární charakterizace symbiózy CSC-imunitní buňka odhalila potenciální terapeutické strategie, včetně duálního cílení vitálních drah aktivovaných jak v CSC, tak v imunitních buňkách (např. STAT3 a PI3K, narušující molekuly odpovědné za fyzické interakce CSC-imunitní buňky (např. CD 47-SIRPa) a neutralizující rozpustné faktory, které recipročně podporují jak CSC, tak imunitní buňky (např. IL-6). Souhrnně objasnění těchto symbiotickýchCSC-imunníbuněčné interakce také odhalily ústřední roli těchto nových molekulárních mechanismů při řízení tumorigeneze, metastáz a rezistence na chemoterapii. Zacílení na tento molekulární okruh má tedy potenciál narušit ko-závislost imunitních buněk CSC a zvýšit účinnost konvenčních terapií.
Ačkoli naše znalosti o CSC-imunitních buňkách přeslechy dozrávají, bude potřeba zodpovědět mnoho otázek, abychom mohli efektivně a systematicky převést mechanistické poznatky na nové terapeutické intervence. Za prvé, mnoho studií zkoumajících přeslechy CSC-imunitních buněk se spoléhalo na modely společné kultury buněčné linie nebo izolované buňky z nádorových tkání, což zdůrazňuje potřebu doplňkových studií využívajících modely in vivo, genetickou validaci a dynamické analýzy TME pomocí sledování linie. a zobrazovací technologie živá mikropozitronová emisní tomografie (microPET)/počítačová tomografie (CT). Takové in vivo modely by mohly být doplněny organoidními kulturami, které, jak se zdá, věrněji rekapitulují rysy svých zdrojových tkání (Baker, 2018). To znamená, že organoidy rakovinných buněk a společné kultury imunitních buněk by mohly sloužit jako robustnější a výkonnější modelové systémy pro studium dynamických a recipročních interakcí mezi CSC a imunitními buňkami a pro testování terapeutických činidel zaměřujících se na přeslech CSC-imunitních buněk. Za druhé, pozoruhodná plasticita a heterogenita jak CSC (přechod mezi kmenovými a nekmeňovými stavy), tak imunitních buněk (včetně přechodů uvnitř a mezi buněčnými typy, jako je přechod napříč fenotypovým spektrem u TAM, diferenciace MDSC na PMN- Podskupiny MDSC a M-MDSC a diferenciace M-MDSC na TAM) zdůrazňují výzvy při identifikaci kontextově specifické povahy odlišných kritických CSC-imunitních buněčných okruhů v různých stádiích nádorů a u různých typů rakoviny, stejně jako změny v CSC -interakce imunitních buněk vyplývající z terapeutických intervencí. Využití plného potenciálu cílení přeslechů CSC-imunitních buněk tedy bude vyžadovat rozsáhlé používání siRNA-seq k identifikaci nových subpopulací a definování fyziologických stavů CSC a imunitních buněk, stejně jako jejich přeslechy ve specifických nádorových kontextech a při vystavení určitým terapie. Takový audit jedné buňky musí být doplněn funkčními a genetickými analýzami využívajícími in vivo modelové systémy k identifikaci a validaci cílů a mechanismů řídících ko-závislost-popírání CSC-imunitních buněk. Vzhledem k počtu zahrnutých faktorů se bispecifické protilátky duálně zaměřují na klíčové faktory působící ve shodě vCSC-imunitní buňkaobvod by měl být zvážen. Za třetí, u mnoha typů nádorů se zdá, že dráha IL-6/IL-6R/STAT3 je nejvýraznějším a nejdůležitějším hnacím motorem cross-talk CSC-imunitních buněk, jak dokládá zjištění, že farmakologické inhibice dráhy IL-6R/STAT3 zhoršuje progresi nádoru a snižuje kmenovost CSC, TAM a MDSC u myších modelů rakoviny močového měchýře, rakoviny prsu a HCC (Kobatake et al., 2020; Peng et al. , 2016; Wan a kol., 2014). Je však zapotřebí podrobnějšího zkoumání účinků těchto léků, protože se zaměřují také na jiné stromální buňky v TME. To znamená, že protinádorové působení se nemusí týkat přeslechu CSC-imunitních buněk a/nebo může cílit na buňky stromatu s opačným působením k CSC, TAM a MDSC. V tomto ohledu by byly geneticky upravené myší modely užitečné k rozboru nesčetných rolí dráhy IL-6/L-6R/STAT3 konkrétně v CSC, TAM, MDSC a/nebo T-buňkách versus další buňky v rámci ekosystému TME. A konečně, kromě TAM, MDSC a T buněk, nezaujaté analýzy na souborech dat TGGA prokázaly, že vysoká kmenovost rakovinných buněk je spojena se sníženými NK buňkami (Miranda et al, 2019), což naznačuje potenciální přeslech CSC-NKbuněk. CSC jsou obecně náchylné k zabíjení aktivovanými NK buňkami; rostoucí množství důkazů však ukazuje, že CSC mohou být odolné vůči NK buňkám u některých typů rakoviny, jako je GBM, AML a rakovina prsu (Sultan et al, 2017). Nové důkazy ukazují, že anti-CSC aktivita NK buněk je do značné míry závislá na TME a že aktivace NK buněk může být potlačena buňkami TAM, MDSC a T-reg (Bruno et al, 2019; Ghiringhel et al, 2006; Kmeta et al, 2017). Kromě NK buněk velmi omezené důkazy ukazují, že kmenovost rakovinných buněk souvisí s přítomností dendritických buněk (DCS), B-buněk (Hsuet al., 2018; Miranda et al., 2019) a neutrofilů (Hira et al. , 2015; Hwang a kol., 2019). Povaha přeslechů mezi CSC a těmito čtyřmi typy imunitních buněk (NK buňky, B buňky, DC a neutrofily) je však z velké části neznámá. Proto další studie charakterizující takové přeslechy, stejně jako vztah těchto čtyř typů buněk s jinými imunitními buňkami, včetně TAM, MDSC a T buněk, připraví cestu pro vývoj nových a účinnějších imunoterapií.

Stručně řečeno, předložili jsme narůstající důkazy implikující interakce CSC-imunitní buňky jako hnací síly vývoje nádoru zahrnujících mnoho charakteristických znaků rakoviny a jako modulátory odpovědi na terapeutické intervence. Využití terapeutického potenciálu těchto interakcí bude vyžadovat přísnou validaci cílů a mechanismů, které jsou základem tohoto symbiotického vztahu, stejně jako hlubší pochopení specifických biologických souvislostí, ve kterých hrají zásadní roli omezující rychlost při udržování nádoru. Úspěšné dosažení tohoto cíle by výrazně prospělo pacientům s rakovinou.