

Může extrakt z Cistanche Deserticola podpořit imunitní odpověď?
Mar 22, 2022
Kontakt:joanna.jia@wecistanche.com/ WhatsApp: 008618081934791
Shuangshuang Feng a,1, Xiumei Yang a, Xiang Weng a,1, Bin Wang b, Ailian Zhang a,*
klíčová laboratoř biologických zdrojů a genetického inženýrství v Xinjiang, Vysoká škola přírodních věd a technologie, Univerzita Xinjiang, Urumqi, 830046, Xinjiang, Čína
b Key Lab of Medical Molecular Virology, School of Basic Medical Science, Shanghai Medical College, Fudan University, Shanghai, 200032, Čína
Etnofarmakologický význam:Rostlinné polysacharidy vykazují velký potenciál na posílení imunity. Adjuvancia jsou klíčovým nástrojem pro vývoj účinných vakcín. V naší předchozí studii, ve vodě rozpustný polysacharid extrahovaný z divokéCistanchedeserticolaYC Ma vykazoval silnou imunostimulační aktivitu.
Cíl studie:V této studii imunitní profily a účinnost vodných extraktů kultivovanýchCistanchedeserticolaByly zkoumány YC Ma (AECCD) na ICR myších proti ovalbuminu (OVA). V experimentech in vitro byl hodnocen možný mechanismus aktivace DC pomocí AECCD.
Materiály a metody:AECCD byly extrahovány horkou vodou a poté byly surové polysacharidy vysráženy ethanolem. Myši byly nejprve imunizovány subkutánně OVA (10 ug na myš) samotným nebo OVA (10 ug na myš) obsahující různé dávky AECCD (200, 400 a 800 ug na myš) ve dnech 1 a 14 a velikost a kinetiku protilátky a buňkami zprostředkované reakce byly poté hodnoceny.
Výsledek:AECCD vyvolalo silné a dlouhodobé IgG reakce se smíšenými Th1/Th2 reakcemi a up-regulovanými hladinami Th-asociovaných cytokinů (CD4 plus IL-4, CD4 plus IFN- a CD8 plus IFN-). Navíc AECCD indukoval silné buňkyimunníOdezvavyznačující se zvýšenou proliferací splenocytů a také aktivovanou odpovědí T buněk. Je pozoruhodné, že AECCD významně zvýšilo zrání dendritických buněk (DC) a inhibovalo Tregs. Experimenty in vitro Předběžné testy ukázaly, že AECCD indukuje aktivaci DC podporou fenotypového zrání, cytokinové sekce a alostimulační aktivity. Toll-like receptor 4 (TLR4) byl nezbytným receptorem pro DC pro přímou vazbu AECCD. Inhibitory NF-κB snížily hladiny exprese CD40, CD80, CD86 a MHC-II a produkci IFN-, TNF- a IL-6 prostřednictvím DCS.
Závěry:Konečně tato zjištění naznačují, že AECCD může vyvolat silnou a trvalou antigenně specifickouimunníodpovědiprostřednictvím aktivace DC, která se podílela na regulaci markerů zrání a exprese cytokinů prostřednictvím dráhy NF-κB související s TLR4-. Studie ukazuje, že AECCD je potenciální imunomodulátor.
klíčová slova:Polysacharidové adjuvans kultivované,Cistanchedeserticola, Imunomodulátor, Dendritické buňky Toll-like receptor 4, NF-κB signální dráha
Cistanche deserticolaextrakt podporovatimunníOdezva
1. Úvod
Mnoho studií naznačuje, že adjuvans mohou zvýšit účinnost vakcín proti různým infekčním chorobám, jako je HIV, COVID{0}}, chřipka a slintavka a kulhavka (Cao et al., 2020; Giuseppe et al., 2018 ). Adjuvancia mohou vyvolat různé typy a velikostiimunníodpovědi, takže vhodně zvolené adjuvans může vyvolatimunníOdezvapotřebné pro daný patogen nebo antigen (Reed et al., 2013). Přírodní bylinné extrakty jsou již dlouho široce používány v každodenním životě nebo ve zdravotnictví. V mnoha případech tradiční čínská medicína (TCM) a její aktivní složky, zejména mnohočetná adjuvans odvozená od polysacharidů TCM, významně zlepšila účinnost vakcín. Polysacharidy TCM (Advax™, polysacharid Astragalus, polysacharid ženšenu, polysacharid Lycium barbarum a polysacharid Ganoderma lucidum) měly několik výhod oproti jiným adjuvansům, jako je lepší bezpečnost, biokompatibilita, silné posílení imunity a nízká reaktogenita (Li a Wang; Schijns, 2011 a kol., 2020). Sloučeniny a formulace na bázi polysacharidů TCM mají proto potenciál jako kandidáti na adjuvans.
Cistanche deserticolaYC Ma (čínsky Roucongrong) je tradiční čínská medicína zaznamenaná v čínském lékopisu a v Číně se po stovky let používá jako tonikum (komise pro čínský lékopis, 1992). Moderní farmakologické studie prokázaly jeho četné farmakologické a imunomodulační aplikace (Dong et al., 2007; Fu et al., 2017). V naší předchozí studii byly surové polysacharidy odvozeny z divokýchCistanchedeserticolaYC Ma podporoval antigen-specifické humorální a buněčné reakce a reguloval zrání dendritických buněk (DC) (Zhang et al., 2018; Zhao et al., 2019). Nicméně divokýCistanchedeserticolaYC Ma byl nadměrně prozkoumán a zařazen mezi ohrožené druhy.CistanchedeserticolaYC Ma byl vysazen ve velkém měřítku a je široce používán při vývoji a aplikaci zdrojů TCM. Nicméně, adjuvantní potenciál kultivCistanchedeserticolaYC Ma je stále nejasný.
DCS jsou základními regulátory proti infekčním chorobám. Poté, co jsou DC aktivovány, povrchové molekuly a prozánětlivé cytokiny na DC interagují s odpovídajícími receptory, aby aktivovaly T buňky a vyvolaly antigen-specifické reakce a produkci cytokinů řídících adaptivníimunníodpovědi(Banchereau a Steinman, 1998). Bylo publikováno, že toll-like receptor 4 (TLR4) na DC funguje jako důležitý polysacharidový receptor (Park et al., 2014; Qi et al., 2016). Mnoho polysacharidů může skutečně interagovat přímo nebo nepřímo s TLR4 na DC a aktivovat downstream nukleární faktor-kappa B (NF-κB), který může indukovat expresi různých prozánětlivých genů, jako jsou IFN-, TNF- a IL{{11 }} a zánětlivá odpověď na eliminaci patogenů (Tian et al., 2019; Zhou et al., 2017; Zhu et al., 2013). Proto byly DCS a NF-KB rozsáhle studovány jako potenciální cíle pro terapii onemocnění.
Ve studii jsme se strategií in vivo (ICR myši) nejprve hodnotili imunostimulační účinky vodných extraktů kultivovanýchCistanchedeserticolaYC Ma (AECCD) s různými dávkami (nízká, střední a vysoká) k vyvolání animunníOdezvaproti OVA a vysvětluje in vitro způsob aktivace DC a následných drah souvisejících s receptorem. S myším modelem jsme odhalili, že AECCD podporuje dlouhodobou protilátkovou odpověď se zvýšenými titry IgG a buněčnýmiimunníOdezva. Důležité je, že AECCD indukovalo Th-asociované cytokiny, zejména produkci IFN-, což vedlo k Th1 reakci proti infekcím. Indukční účinek úzce koreloval se zvýšeným DC zráním a sníženým Tregs. Mechanicky AECCD podporovalo aktivaci DC prostřednictvím dráhy NF-KB související s TLR4-. Stručně řečeno, studie potvrdila silnou adjuvantní aktivitu AECCD při podpoře adaptivní odpovědi. Studie položila základ pro vývoj polysacharidových adjuvans AECCD.
2. Materiály a metody
2.1. Reagencie
Ovalbumin (OVA), 3-(4, 5-dimethylthiazol-2-yl)-2, 5-difenyltetrazolium bromid (MTT), polymyxin B (PMB), konkanavalin A (ConA), lipopolysacharid (LPS), mitomycin C a 3,3',5,5'-tetramethylbenzidin (TMB) byly získány od Sigma (USA). Fetální bovinní sérum (FBS) bylo zakoupeno od Biological Industries. Souprava pro počítání buněk-8 (CCK-8) byla zakoupena od společnosti Biosharp (Čína). Kozí anti-myší IgG/IgG1/IgG2a-HRP konjugáty byly od Southern Biotech (USA). Inject Alum byl od Thermo Scientific Pierce (USA). GM-CSF byl od Peprotech (USA). Fluorescenčně značené protilátky (anti-CD3-PE, anti-CD4-APC, anti-CD8a-FITC, anti-CD44-PE, anti-CD62L-PE, anti-MHCII -FITC/Percp-cy5.5, anti-IL-4-PE, anti-IFN– -PE, anti-CD86-APC, anti-CD40-FITC/PE, anti- CD11c-PE/FITC, anti-CD80-APC), Golgistop, Cytofix/Cytoperm a Perm/Wash pufr byly všechny od BD Bioscience (USA). Regulační souprava pro barvení T-buněk byla od eBiosciences (USA). TAK-242 byl z MedchemExpress (Shanghai, Čína). PDTC byl od Beyotime Biotechnology (Čína). Souprava pro multianalytový průtokový test byla od Biolegend (USA).
2.2. Příprava AECCD C. deserticola
(Vzorek voucheru č. CD10041602) identifikoval profesor Jiang He. AECCD byl získán extrakcí vodou, srážením ethanolem a metodou deproteinizace s některými menšími úpravami (Zhang et al., 2018). Stručně řečeno, kultivovanýCistanchedeserticolabyl nejprve mnohokrát extrahován vodou a poté byly surové polysacharidy přes noc vysráženy přidáním ethanolu v objemovém poměru 1:4. Poté byly získané surové polysacharidy deproteinovány metodou Sevag (Liu et al., 2012). Celkový obsah cukru byl detekován na 76,82 procent metodou anthron-kyselina sírová (Dubois et al., 1951).
2.3. Infračervená spektroskopická analýza
Pro účely analýzy organických funkčních skupin byl AECCD s KBr slisován do pelet pro měření infračerveného (IR) spektra. IR spektra vzorků byla stanovena v rozmezí 4000–400 cm−1.
CistancheherbapodporovatimunníOdezva
2.4. Experimenty in vivo
2.4.1. Očkování zvířat
Samice myší C57BL/6 a myši ICR (6 týdnů staré) z lékařské univerzity Xinjiang (Urumqi, Čína) byly aklimatizovány po dobu 3 dnů. Všechny experimentální postupy byly prováděny v souladu s předpisy Výboru pro etiku pokusů na zvířatech Klíčové laboratoře biologických zdrojů a genetického inženýrství Xinjiang na univerzitě v Xinjiang (BRGE-AE001).
Myši byly subkutánně imunizovány samotným OVA nebo OVA s různými koncentracemi AECCD a posíleny v den 14 podle různých skupin následovně (6 myší v každé skupině): kontrolní skupina (0,9 procent NaCl), skupina OVA ( 10 ug OVA), AECCD-H skupina (AECCD 800 ug), OVA/ AECCD-L skupina (10 ug OVA, AECCD 200 ug), OVA/AECCD-M skupina (10 ug OVA, AECCD 400 ug OVA/AECCD-H skupina (10 ug OVA, AECCD 800 ug) a OVA/Alum skupina (10 ug OVA, Alum 100 ug). Formulace vakcíny ve 100 ul 0,9% NaCl byly injikovány na dvě různá místa (50 ul na každé místo) na kůži hřbetu každé myši. Po vakcinaci byly odebrány vzorky krve z retroorbitálního plexu a byla získána séra a uložena při teplotě -80 ◦C pro další analýzu detekce IgG. Proliferace splenocytů a detekce cytokinů, podskupin T buněk, povrchových markerů DC a Tregs byly prováděny po stejném vakcinačním protokolu.
2.4.2. Analýza protilátek
Titry IgG v séru proti OVA byly stanoveny metodou ELISA ve dnech 14, 28, 42 a 56 po primární vakcinaci zmíněné výše (Zhang et al., 2018). IgG1 a IgG2a byly měřeny v den 21. Absorbance při 450 nm/630 nm byla získána pomocí čtečky (Bio-Rad, USA). Výsledky protilátkové odpovědi jsou vyjádřeny jako titry IgG a izotypy IgG1 a IgG2a jsou vyjádřeny jako odpovídající absorbance.
2.4.3. Test proliferace splenocytů
Test proliferace splenocytů u myší byl proveden pomocí testovací soupravy CCK{0}} podle pokynů výrobce. V den 21 po první imunizaci byly splenocyty izolovány ze sleziny imunizovaných myší a erytrocyty byly lyžovány po rozemletí. Splenocyty (1 x 10⁶ buněk/jamka) byly stimulovány OVA (10 ug/ml), OVA323-339 (10 ug/ml), ConA (10 ug/ml) a LPS (10 ug/ml) pro dva dny a jako kontrola byly použity prázdné buňky. Proliferační aktivita byla vyjádřena jako stimulační index (SI), kterým byl vypočten poměr absorbance stimulované buňky k nestimulované buňce při vlnové délce 570/630 nm.
2.4.4. Analýza fenotypizace T-lymfocytů v drenážních lymfatických uzlinách a slezině
Suspenze splenocytů z lymfatických uzlin a sleziny u imunizovaných myší byly získány podle metody uvedené výše (Zhang et al., 2018). Po promytí byly vzorky (1 × 10⁶ buněk/jamka) barveny po dobu 30 minut protilátkami pro povrchové markery, včetně anti-CD3-PE, anti-CD4-APC, anti-CD8a-FITC, anti-CD44-PE a anti-CD62L-PE. Hladiny T-lymfocytů byly vyšetřeny průtokovou cytometrií. Výsledky fenotypů T-lymfocytů jsou vyjádřeny jako procenta CD4 plus T buněk ( procenta ), CD8 plus T buněk ( procenta ), CD44 plus T buněk ( procenta ) a CD62L plus ( procenta) T buněk.
2.4.5. Průtoková cytometrická analýza hladin cytokinů
Pro účely analýzy intracelulárního barvení cytokinů byly lymfocyty sleziny separovány a zpracovány do jednobuněčné suspenze v den 21 po první imunizaci (Zhang et al., 2017). Vzorky (2 x 10⁶ buněk/ml) stimulované OVA (10 ug/ml) byly inkubovány po dobu 4 hodin. Následně byl na 12 hodin přidán Golgistop. Vzorky byly poté promyty, blokovány a barveny anti-CD4-APC nebo anti-CD8a-FITC protilátkami po dobu 30 minut. Po fixaci a permeabilizaci pomocí Cyto fix/Cytoperm byly vzorky značeny protilátkami anti-IL-4-PE nebo anti –IFN–-PE. Pro stanovení hladiny cytokinu byla provedena průtoková analýza.
2.4.6. Odhad aktivace DC a Treg buněk ve slezině
Prozkoumat, zda DC a Tregs hrají roli ve vylepšenémimunníOdezvaproti OVA byly 3. den po první vakcinaci odebrány slezinové lymfocyty z imunizovaných myší pro hodnocení zrání DC (Zhang et al., 2017). Buňky byly blokovány a inkubovány s anti-CD11c-PE/FITC, anti-CD40-PE, anti-CD86-APC, anti-CD80-APC a anti-MHCII- FITC po dobu 30 min. Buňky byly analyzovány průtokovou cytometrií. V den 21 po první imunizaci byly Tregs testovány pomocí soupravy pro barvení myších regulačních T-buněk. Splenocyty byly obarveny anti-CD4-FITC pro markery buněčného povrchu, následované intracelulárním barvením anti-CD25-APC a anti-Foxp3-PE podle pokynů výrobce. Hladina CD4 plus CD25 plus Foxp3 plus buněk byla stanovena průtokovou cytometrií.

Cistanche rostlina extrakt podporuje animunníOdezva
2.5. Experimenty in vitro
2.5.1. Generování DC, životaschopnost buněk a hladiny endotoxinů
DC odvozené z kostní dřeně myší C57BL/6 byly získány podle způsobu popsaného dříve (Inaba et al., 1992). Stručně, buňky byly kultivovány s kompletním médiem RPMI-1640 (20 ng/ml GM-CSF a 5 ng/ml IL-4). Po šesti dnech byly všechny suspendované buňky shromážděny jako nezralé DC pro následné testy. Procento CD11c plus DC v neadherentních buňkách bylo stanoveno na 94 procent pomocí průtokové cytometrie.
Buněčná životaschopnost DC a splenocytů z myší po AECCD byla detekována pomocí sady CCK{{0}} podle pokynů výrobce. Byly získány buňky z DCS a splenocytů a poté stimulovány různými koncentracemi AECCD (0, 10, 100, 400, 800 a 1600 ug/ml). Životaschopnost buněk byla vyjádřena jako poměr absorbance ošetřené skupiny k absorbanci kontrolní skupiny) x 100 procent.
Pro účely vyloučení účinku endotoxinu v AECCD byly poté, co byly AECCD (100, 200 a 400 ug/ml) a LPS (100 ng/ml) předem ošetřeny PMB (100 ug/ml) po dobu 60 minut, DC (5 x 10⁵ buněk/ml) bylo inkubováno s předem ošetřeným AECCD (100, 200 a 400 ug/ml) a LPS po dobu 12 hodin. Po výše uvedené léčbě byly vyhodnoceny hladiny CD40, CD86, CD80 a MHCII.
2.5.2. Analýza fenotypu DC
Hladiny kostimulačních molekul byly stanoveny pro hodnocení zrání prostřednictvím in vitro experimentů. Šestý den byly DC léčeny AECCD (20, 100, 200 a 400 ug/ml) nebo LPS (100 ng/ml) po dobu 12 hodin. Poté byly DC obarveny povrchovými molekulami a analyzovány průtokovou cytometrií.
2.5.3. Produkce cytokinů DC in vitro
Supernatant buněčné kultury byl shromážděn pro měření hladiny cytokinů pomocí soupravy ELISA nebo soupravy pro multianalytový průtokový test metodou CBA. Všechny experimentální kroky byly provedeny podle pokynů výrobce.
2.5.4. Alogenní smíšená lymfocytární reakce (MLR)
Splenocyty z myší BALB/c byly asepticky získány v médiu RPMI- 1640 (Zhang et al., 2018). Zralé C57BL/6 DC (zralé v přítomnosti různých koncentrací AECCD nebo LPS) byly předem ošetřeny 50 ug/ml mitomycinu C po dobu 60 minut při 37 °C. Po promytí byly DC smíchány se splenocyty v poměru 1:5 nebo 1:10 po dobu 2 dnů. Buněčná proliferace byla stanovena MTT testem.
2.5.5. Pokusy neutralizace inhibitoru
K prozkoumání dráhy NF-KB související s TLR{0}} byly shromážděné DC naneseny na 24-jamkovou destičku a poté předem ošetřeny TAK-242 (5 μM) nebo PDTC (5 μM) , resp. Po 1-hodinové inkubaci byly buňky stimulovány různými koncentracemi AECCD (100, 200 a 400 ug/ml) nebo LPS (100 ng/ml) po dobu 24 hodin. Poté byly stanoveny úrovně exprese povrchových molekul a cytokinů v kultivačních supernatantech podle metod popsaných výše.
3. Výsledky
3.1. FTIR spektroskopie
Hlavní absorpční píky AECCD na obr. 1 byly charakteristické absorpční píky glykosidických struktur odpovídající O–H natahovací vibraci při 3342,95 cm− 1. Pás na 2933,54 cm− 1 měl charakteristickou slabou absorpci C–H natahovacích vibrací. Vrchol při 1657,39 cm− 1 byl přisouzen O–H ohybové vibraci. Absorpce při 1411.00 cm− 1 byla připisována natahovacím vibracím O–H nebo C–H a C–O. Vrcholy při 1018,38 cm− 1 také indikovaly vibrace glykosidického pásu CO a C–O–C.
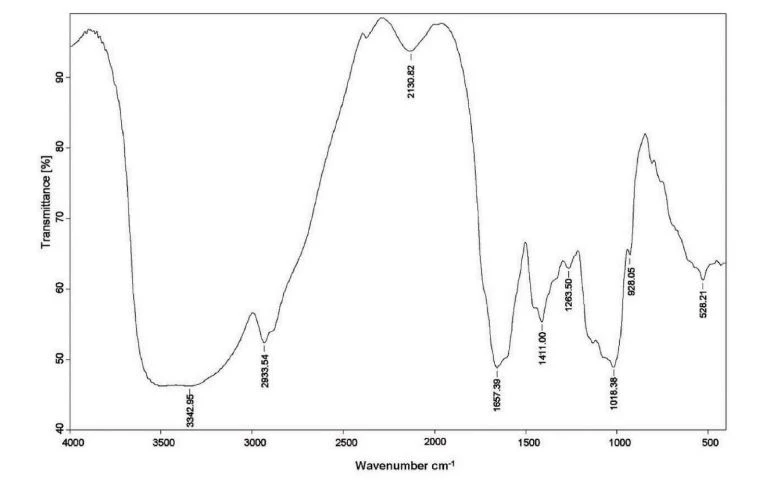
Obr. 1. FTIR spektra AECCD.
3.2. OVA-specifická sérová protilátková odpověď
Séra z imunizovaných myší byla testována pro kontrolu přítomnosti vytvořených protilátek (IgG, IgGl a IgG2a) proti OVA. Jak je znázorněno na obr. 2A, titry IgG u myší imunizovaných OVA/AECCD-M vyvolaly vyšší celkový IgG (titry: 220,000, 25{{30}}, 000 a 250,000) vzhledem k těm ze skupiny OVA (titry: 100,000, 100,000 a 120,000), a bylo blízko skupině Alum (titry: 250,000, 250,000 a 270,000) ve dnech 28, 42 a 56 po základním očkování. OVA/AECCD-M/H významně zvýšily hladiny IgG1 ve srovnání se skupinou OVA (P < 0,05)="" a="" rozdíl="" mezi="" skupinou="" ova/aeccd-m/h="" a="" skupinou="" alum="" nebyl="" významný="" (p=""> 0,05). OVA/AECCD-M/H také výrazně zvýšily hladiny IgG2a ve srovnání se skupinou OVA a skupinou Alum (obr. 2B a C) (P < 0,05).="" zvýšené="" hladiny="" igg2a="" mohou="" zabránit="" onemocnění="" vyžadujícímu="">imunníOdezva.

Obr. 2. Titry protilátek specifických pro OVA a izotypy IgG v séru. Vzorky séra byly odebrány po primární a booster imunizaci na protilátky pomocí ELISA. (A) IgG titry spojeného séra byly hodnoceny ve dnech 14, 28, 42 a 56 po první imunizaci. (B–C) IgG1 a IgG2a byly měřeny 21. den po první imunizaci. Data jsou uvedena jako průměr ± SD (n=6). *P < 0,05="" ve="" srovnání="" s="">
3.3. Buněčné imunitní reakce
Proliferace lymfocytů sleziny byla zkoumána testem MTT za restimulace OVA nebo OVA {{0}}. Analýza proliferace odhalila, že OVA/AECCD-M oba výrazně zvýšily proliferaci splenocytů po expozici OVA, OVA323-339, Con A nebo LPS vzhledem ke skupině OVA. OVA a OVA323-339 významně zlepšily vyšší proliferační odpověď než ve skupině s kamencem (obr. 3) (P <>
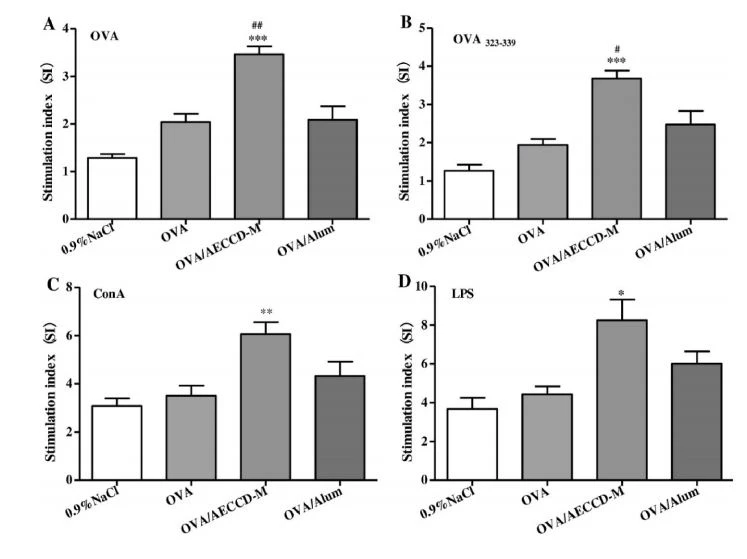
Obr. 3. Proliferace splenocytů po léčbě AECCD in vivo. Splenocyty byly znovu stimulovány OVA, OVA323-339, ConA nebo LPS a měřeny metodou MTT v den 21 po první imunizaci. Buněčná proliferace byla ukázána jako stimulační index (SI): (A–B) Stimulační index OVA a OVA323-339. (C–D) Index stimulace ConA a LPS. Data jsou uvedena jako průměr ± SD (n=5). *P<0.05, **p="" <="" 0.01,="" and="" ***p="" <="" 0.001="" compared="" to="" ova;="" #p="" <="" 0.05="" and="" ##p="" <="" 0.01="" compared="" to="" ova/="">
3.4. Aktivace podskupin T buněk v drenážních lymfatických uzlinách a slezině
Lymfatické uzliny a slezina z imunizovaných myší byly odebrány pro detekci podskupin T buněk v den 21 po primární vakcinaci. Procento podskupin T buněk (CD4 plus, CD8 plus, CD44 plus T buňky) z lymfatických uzlin ve skupině OVA/AECCD-M bylo významně vyšší než u skupiny OVA a skupiny Alum (obr. 4A–D) (P < 0.05).="" procenta="" podskupin="" t="" buněk="" (cd4="" plus,="" cd8="" plus,="" cd44="" plus="" a="" cd62l="" plus="" t="" buňky)="" ve="" slezině="" byla="" významně="" vyšší="" než="" u="" skupiny="" ova="" (obr.="" 4e–j)="" (p="">< 0,05).="" tato="" zjištění="" naznačují,="" že="" aeccd="" podporuje="" buněčně="">imunníOdezva.
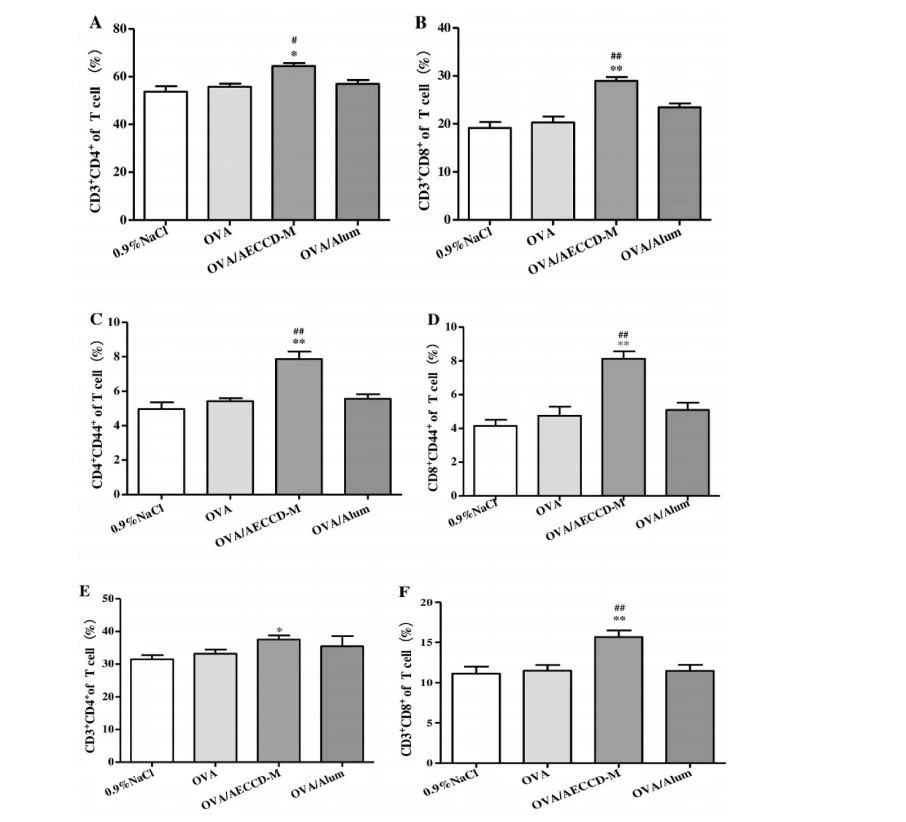

Obr. 4. Hladiny podskupin T buněk v drenážních lymfatických uzlinách a slezině in vivo. V den 21 po první vakcinaci byly buňky z lymfatických uzlin a sleziny použity k detekci podskupin T buněk průtokovou cytometrií. (A–D) Procenta CD4 plus, CD8 plus a CD44 plus T buněk v lymfatických uzlinách. (E–J) Procenta CD4 plus, CD8 plus, CD44 plus a CD62L plus T buněk ve slezině. Data jsou uvedena jako průměr ± SD (n=5). *P < {{10}}.05,="" **p="">< 0.{18}}1="" a="" ***p="">< 0,001="" ve="" srovnání="" s="" ova;="" #p="">< 0,05="" a="" ##p="">< 0,01="" ve="" srovnání="" s="">
3.5. Cytokiny vylučované restimulovanými splenocyty in vivo
Cytokiny Th1/Th2 ze sleziny imunizovaných myší byly stanoveny intracelulárním barvením v den 21 po první vakcinaci. Hladiny CD4 plus IL-4, CD4 plus IFN- a CD8 plus IFN- ve skupině OVA/AECCD-M byly významně vyšší než ve skupině OVA a skupině Alum (P < 0="" .05,="" obr.="" 5).="" rozdíly="" naznačovaly,="" že="" aeccd="" může="" stimulovat="" th1/th2="" reakce,="" zejména="" zprostředkované="">imunníOdezva.

Obr. 5. Antigen-specifická cytokinová analýza v T buňkách in vivo. Splenocyty z imunizovaných myší byly vyšetřeny 21. den po první imunizaci intracelulárním barvením cytokinem. (A) Procenta CD4 plus IL-4. (B–C) Procenta CD4 plus IFN- a CD8 plus IFN-. Data jsou uvedena jako průměr ± SD (n=5). *P < {{10}}.05="" a="" **p="">< 0,01="" ve="" srovnání="" s="" ova;="" #p="">< 0,05="" ve="" srovnání="" s="">
3.6. DC zrání a Tregs in vivo
Aktivace DC může iniciovat adaptivní imunitu. Účinky AECCD na zrání DC u imunizovaných myší byly hodnoceny 3. den po první imunizaci. OVA/AECCD-M indukovala nejvyšší hladiny CD40, CD80, CD86 a MHCII na DC ve srovnání se skupinou OVA a rozdíl mezi OVA/AECCD-M a Alum skupina byla signifikantní (obr. 6A–D) (P < 0,05).="" frekvence="" cd4="" plus="" cd25="" plus="" foxp3="" plus="" tregs="" ve="" skupině="" ova/aeccd-m="" byla="" dramaticky="" nižší="" než="" frekvence="" ve="" skupině="" ova="" (obr.="" 6e)="" (p="">< 0,05).="" tato="" data="" naznačují,="" že="" aeccd="" může="" aktivovat="" dc="" a="" snížit="" frekvenci="">
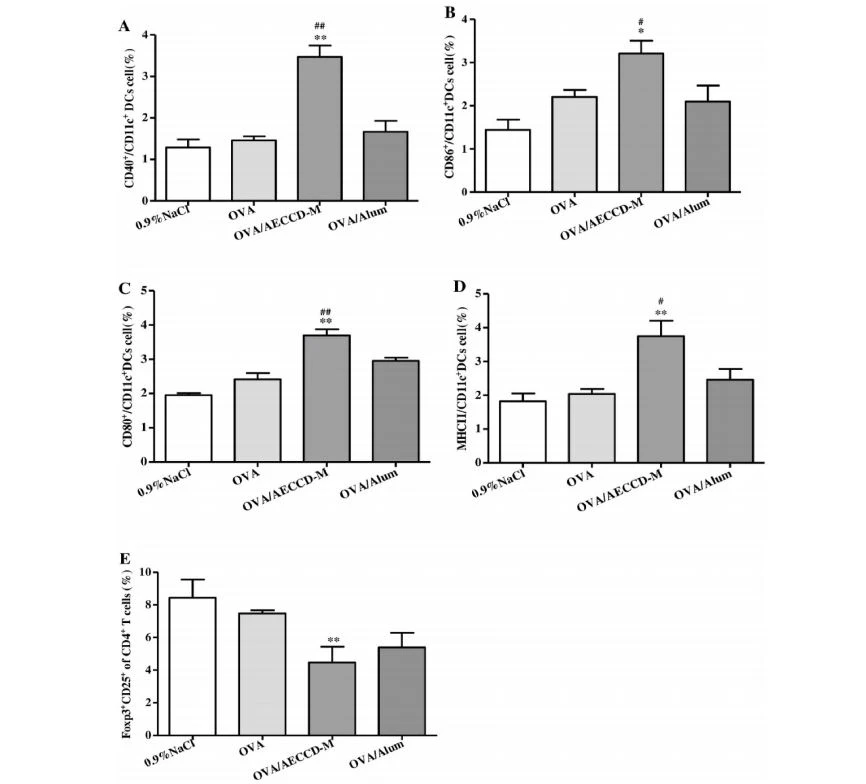
Obr. 6. Účinky AECCD na zrání DC a Tregs in vivo. Splenocyty z ICR myší byly použity k detekci kostimulačních molekul na DC a Tregs v den 3 nebo 21 po první imunizaci. (A–D) Procenta CD40, CD86, CD80 a MHCII na CD11c plus DC. (E) Procenta CD4 plus CD25 plus Foxp3 plus Tregs. Data jsou uvedena jako průměr ± SD (n {{10}}). *P < 0,05="" a="" **p="">< 0,01="" ve="" srovnání="" s="" ova;="" #p="">< 0,05="" a="" ##p="">< 0,01="" ve="" srovnání="" s="">
3.7. Stanovení cytotoxicity a endotoxinové kontaminace
Po ošetření různými koncentracemi AECCD po dobu 2 dnů byly buňky z DCS a splenocyty myší použity ke stanovení potenciální cytotoxicity pomocí soupravy CCK-8. Nebyla zjištěna žádná významná inhibovaná proliferační odpověď v buněčné životaschopnosti DC a splenocytů ve srovnání s kontrolní skupinou (obr. 7A–B) (P > 0.05). Tyto výsledky ukázaly, že AECCD v koncentraci 10–1600 ug/ml nevykazovalo žádnou významnou cytotoxicitu vůči DC a splenocytům ve srovnání s kontrolou (P > 0,05). Koncentrace AECCD v následujících experimentech byla tedy nastavena pod 1600 ug/ml.
Aby se vyloučila interference kontaminace endotoxiny v účincích AECCD na aktivaci DC, bylo k vyloučení kontaminace endotoxiny použito PMB, antibiotikum široce uznávané díky svému LPS-neutralizačnímu účinku (Morrison a Jacobs, 1976). Jak je znázorněno na obr. 7C–F, hladiny exprese CD40, CD80, CD86 nebo MHC-II v DC léčených AECCD v přítomnosti PMB nevykazovaly žádnou významnou změnu ( P > 0,05). Avšak dramatický pokles hladin exprese CD40, CD80 CD86 a MHC-II byl pozorován u DC léčených LPS v přítomnosti PMB (P < 0,001).="" tyto="" výsledky="" prokázaly,="" že="" aeccd="" bylo="" bez="" kontaminace="">
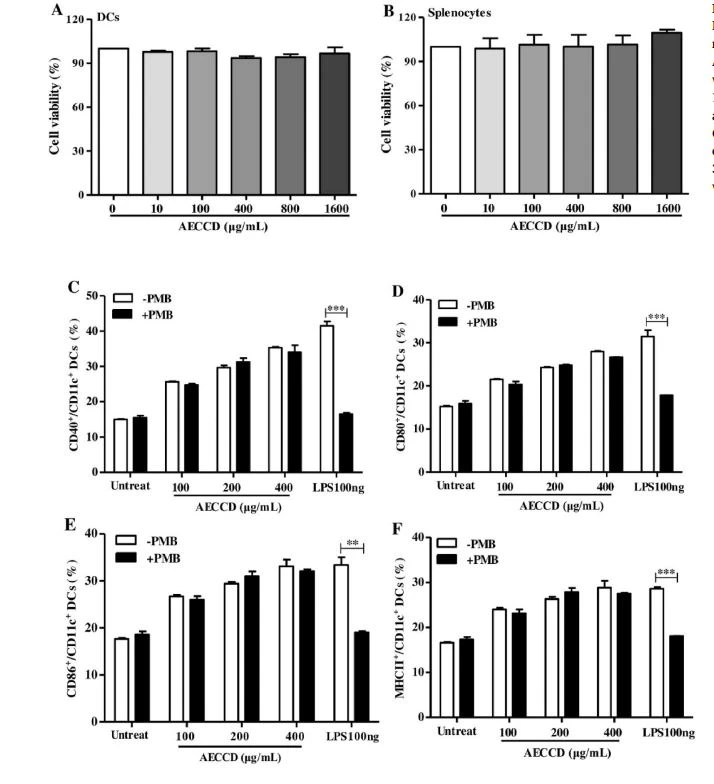
Obr. 7. Cytotoxicita a účinky PMB na indukované zrání DC po AECCD. (A–B) DCS a splenocyty myší byly kultivovány v přítomnosti AECCD po dobu 2 dnů, aby se stanovila životaschopnost buněk metodou MTT. (C–F) DC byly inkubovány po dobu 12 hodin s AECCD nebo LPS předem ošetřenými v přítomnosti/nepřítomnosti PMB po dobu 60 min. Byla stanovena procenta CD40, CD80, CD86 a MHCII na CD11c plus DC. Data jsou uvedena jako průměr ± SD (n =3). **P < 0,01="" a="" ***p="">< 0,001="" ve="" srovnání="" se="" skupinou="" s="">
3.8. Fenotypové zrání a funkční aktivace DC in vitro
Na základě výše uvedených imunizačních experimentů bylo dále zkoumáno fenotypové zrání DC po ošetření AECCD in vitro. V den 6 byly nezralé DC stimulovány danou koncentrací AECCD nebo LPS pro analýzu povrchových molekul. AECCD indukované zrání buněk charakterizované významným zvýšením procenta CD40, CD80 CD86 a MHC II způsobem závislým na dávce (P < 0,001,="" obr.="" 8a–d).="" podobné="" fenotypové="" zrání="" dc="" bylo="" také="" pozorováno="" po="" stimulaci="" 100="" ng/ml="" lps.="" data="" analýzy="" odhalila,="" že="" aeccd="" zlepšilo="" zrání="">
Z výše uvedených výsledků AECCD zlepšilo fenotypové zrání DC. Aby bylo možné pozorovat účinek AECCD na funkci DC in vitro, byla schopnost DC ošetřených AECCD stimulovat alogenní proliferaci T buněk v MLR při poměru DC-splenocyty 1:5 nebo 1:10 vyšetřován. DC ošetřené různými koncentracemi AECCD indukovaly významnou proliferaci T buněk ve srovnání s neošetřenými DC (obr. 8E–F) (P < 0="" 0,001).="" zrání="" dc="" by="" mohlo="" indukovat="" produkci="" cytokinů.="" dále="" byly="" supernatanty="" dc="" ošetřených="" aeccd="" nebo="" lps="" detekovány="" soupravou="" elisa.="" hladiny="" il-12="" a="" tnf-="" v="" supernatantech="" dc="" byly="" dramaticky="" zvýšeny="" v="" závislosti="" na="" dávce="" (p="">< 0,001,="" obr.="">
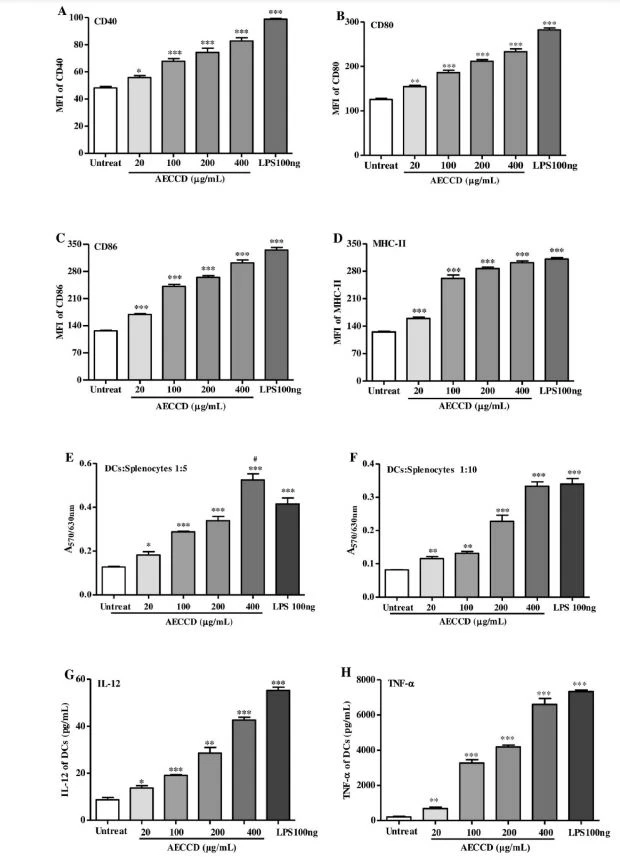
Obr. 8. Fenotypové zrání a funkční aktivace DC po léčbě AECCD in vitro. (A–D) V den 6 byly DC léčeny danou koncentrací AECCD nebo LPS po dobu 12 hodin. Buňky byly obarveny protilátkami a stanoveny průtokovou cytometrií. Střední intenzita fluorescence (MFI) CD40, CD80, CD86 a MHCII na CD11c plus DC. (E–F) C57BL/6 DC ošetřené různými koncentracemi AECCD nebo LPS byly smíchány se splenocyty z myší BALB/c v poměru 1:5 nebo 1:10 v MLR po dobu 2 dnů. Buněčná proliferace byla stanovena MTT testem. (G–H) Kultivační supernatanty DC byly testovány na IL-12 a TNF-a pomocí soupravy ELISA. Data jsou uvedena jako průměr ± SD (n =3). *P < 0,05,="" **p="">< 0,01="" a="" ***p="">< 0,001="" ve="" srovnání="" s="" neléčenými="" dc;="" #p="">< 0,05="" ve="" srovnání="" s="">
3.9. TLR4, receptor pro AECCD na DC
DCS může iniciovat buněčnou signalizaci membránovými receptory. Naurčitrole TLR4 v účasti na maturaci DC ošetřených AECCD, po předléčení inhibitorem TLR4 TAK-242 byly DC stimulovány danou koncentrací AECCD a poté byl stav aktivace DC vyšetřen průtokovým cytometrem . Hladiny exprese cytokinů v kultivačních supernatantech byly analyzovány multianalytovou soupravou pro průtokový test. Upregulace CD40, CD80, CD86 a MHC-II indukovaná AECCD byla významně inhibována blokováním drah TLR4 (P < 0,01,="" obr.="" 9a–d).="" navíc="" ve="" srovnání="" s="" neléčenou="" kontrolou="" mělo="" blokování="" tlr4="" pomocí="" tak-242="" významnější="" inhibiční="" účinek="" na="" produkci="" ifn-,="" tnf-="" a="" il-6="" (p="">< 0,01,="" obr.="" 9e–g)="">

Obr. 9. Aktivace signalizace TLR4 v DC ošetřených AECCD. Poté, co byly nezralé DC ošetřeny AECCD v nepřítomnosti nebo přítomnosti TAK-242 po dobu 12 hodin, fenotypové zrání bylo zkoumáno průtokovým cytometrem a hladiny cytokinů v supernatantech byly stanoveny metodou CBA. (A–D) Procenta CD40, CD80, CD86 a MHCII na CD11c plus DC. (E–G) Hladiny IFN-, TNF- a IL-6. Data jsou uvedena jako průměr ± SD (n=3). **P < 0,01="" a=""><0.001 compared="" to="" the="" group="" with="">
3.10. Aktivace DC pomocí AECCD prostřednictvím dráhy NF-κB související s TLR4-
Aby se zjistilo, zda exprese povrchových molekul a cytokinů DC ošetřených AECCD byly regulovány pomocí NF-KB poté, co byly nezralé DC předem ošetřené inhibitorem NF-KB PDTC stimulovány pomocí AECCD po dobu 12 hodin, byly hladiny exprese kostimulačních molekul a cytokinů měřeny pomocí průtokový cytometr. Hladiny CD40, CD80CD86 a MHC-II indukované AECCD byly významně sníženy ve srovnání s neléčenou kontrolou blokováním NF-κB drah odpovídajícími inhibitory (P < 0,001,="" obr.="" 10a–d).="" současně="" byla="" pdtc="" významně="" inhibována="" také="" exprese="" ifn-,="" tnf-="" a="" il-6="" (p="">< 0,05,="" obr.="">

Obr. 10. Zapojení NF-KB do aktivace DC indukované AECCD. DC byly ošetřeny AECCD v nepřítomnosti nebo přítomnosti PDTC po dobu 24 hodin. (A–D) Procenta CD40, CD80, CD86 a MHCII na CD11c plus DC byla stanovena průtokovou cytometrií. (E–G) Hladiny IFN-, TNF- a IL-6 v supernatantu byly stanoveny metodou CBA. Data jsou prezentována jako průměr ± SD (n=3).*P < 0,05,="" **p="">< 0,01="" a="" ***p="">< 0,001="" ve="" srovnání="" se="" skupinou="" s="">
4. Diskuze
V současné době byly zkoumány různé polysacharidy z TCM jako adjuvancia pro lidské a zvířecí vakcíny (Sun et al., 2018; Rey-Ladino et al., 2011). V této studii byly imunomodulační účinky AECCD a primární aktivační mechanismus DC zkoumány in vivo a in vitro řadou experimentů s cílem vyhodnotit adaptivníimunníOdezvaproti OVA a aktivačnímu stavu DCS. Experimenty in vivo ukázaly, že AECCD pozoruhodně podporuje produkci OVA-specifických izotypů IgG a IgG, zvyšuje proliferaci splenocytů a indukuje aktivaci T buněk a cytokinů (IL-4/IFN-). Kromě toho AECCD zlepšilo zrání DC a vykazovalo snížené Tregs. Tato zjištění naznačují, že funkce AECCD jako účinného adjuvans byla realizována podporou zrání DC a inhibicí Tregs. Experimenty in vitro ukázaly, že AECCD podporovalo fenotypové zrání DC, cytokinovou sekci a alostimulační aktivitu prostřednictvím NF-κB dráhy související s TLR4-. Tyto experimentální výsledky ukázaly, že AECCD má významný potenciál jako stimulátor zvyšující imunitu.
Každé adjuvans má jedinečné imunitní vlastnosti proti různým antigenům, což ukazuje, že adjuvans má aplikační potenciál u různých onemocnění. Nejprve byly testovány adjuvantní vlastnosti společného podávání AECCD s OVA stanovením jejich účinků na adaptivníimunníOdezvau myší. Mnoho studií ukázalo, že imunostimulační aktivity byly přímo úměrné dávce v určitém rozmezí (Li et al., 2020; Reed et al., 2020; Zhang et al., 2017). Podobně ve studii analýza protilátky a izotypu odhalila, že AECCD v určitém dávkovém rozmezí zvýšilo OVA-specifické IgG, IgG1 a IgG2a reakce a že střední dávka AECCD byla optimální dávkou. V následných experimentech jsme zkoumali především stimulační účinek AECCD při optimální střední dávce. Střední dávka AECCD významně zvýšila odpověď na proliferaci splenocytů u imunizovaných myší, což ukazuje, že AECCD podporovalo buněčnéimunníodpovědiproti OVA. Tyto výsledky naznačují, že AECCD posílilo jak humorální, tak buněčnéimunníodpovědi, které byly spojeny s adjuvantním potenciálem.
Vyvolaná podstatná aktivita T-buněk může napomáhat eradikaci onemocnění. Během animunníOdezvaaktivované T buňky mohou dosáhnout sekundární lymfoidní tkáně, včetně sleziny a lymfatických uzlin (Steinman, 2012). Střední dávka AECCD účinně zlepšila účinnost vakcíny, protože mohla významně zvýšit odpovědi CD4, CD8, CD44 a CD62L T buněk v drenážních lymfatických uzlinách a slezině. Aktivované CD8 T buňky zprostředkovaly eradikaci patogenu sekrecí IFN-. Proliferované CD4 T buňky byly diferencovány na Th1 buňky a Th1 buňky. Th1 buňky vylučovaly Th1 cytokin pro stimulaci proliferace lymfocytů a Th2 buňky vylučovaly Th2 cytokin pro zvýšení produkce protilátek (Seder et al., 2008). Ve studii byly hladiny CD4 plus IL-4, CD4 plus IFN- a CD8 plus IFN- zvýšeny AECCD při střední dávce. AECCD vyvolalo vyváženou Th1/Th2 odpověď a řídiloimunníOdezvazměnou cytokinové sítě.
Adjuvans by mělo vyvolat specifickou imunitu a kontrolovat výsledekimunníOdezvaregulací stavu DC na mnoha místech (Carrera Silva et al., 2013). Exprese povrchových molekul na DC je klíčovým ukazatelem pro hodnocení zrání DC a typicky koreluje s diferenciací T lymfocytů (Steinman, 2012). V této studii AECCD zvýšil expresi kostimulačních molekul a usnadnil zrání DC, když byl použit jako adjuvans proti OVA. To může být jeden ze způsobů, jak AECCD podporoval humorální a celulárníimunníodpovědi. Mezitím AECCD také snížila frekvenci CD4 plus CD25 plus Foxp3 plus Tregs, což poskytlo vyváženou imunitu po očkování. Naše výsledky podpořily nedávná zjištění, že různé polysacharidy z TCM byly regulátorem zrání DC (Bo et al., 2019; Li et al., 2015; Zhu et al., 2016).
Aktivace adaptivníchimunníodpovědipolysacharidovými adjuvans je zprostředkován především jejich rozpoznáním specifickými receptory DC (Akira, 2004). DC aktivované prostřednictvím cest souvisejících s TLR4-mohou vylučovat různé imunomodulátory jako kritický mediátor proti infekcím (Akira, 2007). Proto jsme v následujících experimentech předběžně prozkoumali molekulární mechanismus stimulačního účinku AECCD na DC in vitro. Aby bylo možné pozorovat cytotoxicitu AECCD, byla nejprve stanovena buněčná životaschopnost DC a splenocytů z myší. AECCD při 10–1600 ug/ml nevykazovalo žádnou cytotoxicitu vůči DC a splenocytům. Abychom vyloučili kontaminaci LPS, AECCD jsme předem ošetřili PMB. Hladiny exprese CD40, CD80 CD86 a MHC-II v DC léčených AECCD nebyly sníženy, ale PMB účinně inhibovalo expresi kostimulačních molekul v DC léčených LPS. To prokázalo, že AECCD bylo bez kontaminace endotoxiny. Dále byl dále zkoumán stav aktivace DC. Podobně jako DC ošetřené LPS, v závislosti na dávce, DC ošetřené AECCD zvýšily hladiny CD40, CD80 CD86 a MHC II a také produkci prozánětlivého cytokinu, který byl parametr funkčního zrání DC. V MLR byla hodnocena schopnost proliferace alogenních T buněk u DC ošetřených AECCD. AECCD by mohlo aktivovat a aktivovat alogenní T buňky. DC byly nejprve předem ošetřeny mitomycinem C a poté důkladně promyty, aby se odstranilo toto činidlo, takže účinky AECCD na DC nebyly pravděpodobně připisovány mitogenní aktivitě. Experimentální data odhalila, že fenotypové zrání DC a funkční aktivace mohou být připsány stimulaci z AECCD.
Řada polysacharidů TCM může stimulovat zrání DC prostřednictvím TLR4. NF-κB jako člen TLR4-související downstream dráhy hraje důležitou roli při regulaci fenotypového a funkčního zrání DC a indukci exprese různých genů zapojených doimunníodpovědi(Qi a kol., 2016; Re a Strominger, 2001; Wei a kol., 2016; Zhu a kol., 2013). Prostřednictvím experimentů in vitro jsme zjistili, že AECCD podporuje zrání DC a že TAK-242 (inhibitor TLR4) a PDTC (inhibitor NF-κB) snižují hladiny exprese CD40, CD80, CD86 a MHC -II a hladiny sekrece IFN-, TNF- a IL-6 na DC ošetřených AECCD. Tato zjištění ukázala, že TLR4 a NF-KB se podílely na aktivaci DC indukované AECCD a sekreci cytokinů. Tyto výsledky byly v souladu s dříve publikovanými studiemi, protože AECCD jako adjuvans zlepšilo zacílení antigenu na DC.
V souhrnu naše výsledky ukázaly, že AECCD indukovalo trvalé a Th1/Th2 reakce, zejména zprostředkované T-buňkamiimunníOdezvaproti OVA. AECCD aktivovala DC prostřednictvím TLR4-zprostředkované NF-κB dráhy, čímž se zvýšila produkce imunomodulátorů a alogenní proliferace T buněk. AECCD lze použít jako účinné adjuvans při vývoji vakcín. Bude však provedena přesná analýza složek, aby se určilo, která složka v DC aktivovaných AECCD. Se zaměřením na mechanismy týkající se toho, jak AECCD posiluje imunogenicitu, včetně optimalizace formulací adjuvans a cesty podávání vakcíny, dále prozkoumáme imunomodulační složky a specifické adjuvantní vlastnosti AECCD za účelem navrhování účinných adjuvans vakcín proti infekčním onemocněním.

Cistanche výhody deserticolypodporovat animunníOdezva
Autorské příspěvky
Získávání, analýza a interpretace dat: Shuangshuang Feng, Xiumei Yang, Xiang Weng. Psaní původního návrhu: Shuangshuang Feng, Xiang Weng.
Získávání financí:Ailian Zhang.
Vyšetřování:Ailian Zhang.
Metodologie:Ailian Zhang, Bin Wang.
Dozor:Ailian Zhang.
Prohlášení o konkurenčním zájmu
Autoři nemají v souvislosti s touto studií žádný střet zájmů.
Poděkování
Tuto práci podpořila National Natural Science Foundation of China [čísla grantů 31960164 a 31660259] Financující neměli žádnou roli při návrhu studie, sběru dat a analýze, rozhodování o publikování, přípravě nebo rukopisu.
Autoři děkují prof. Xingguo Zhengovi a Jiang He (Urumqi, Čína) za laskavé poskytnutí materiálů a identifikaci.
Reference
Akira, S., 2004. Rodiny receptorů Toll: struktura a funkce. Semin. Immunol. 16, 1–2.
Akira, KS, 2007. Signalizace k NF-κB pomocí toll-like receptorů. Trends Mol. Med. 18, 156–163.
Banchereau, J., Steinman, RM, 1998. Dendritické buňky a kontrola imunity. Příroda 392, 245–252.
Bo, R., Liu, Z., Zhang, J., Gu, P., Ou, N., Sun, Y., Hu, Y., Liu, J., Wang, D., 2019. mechanismus lycia barbarum polysacharidové lipozomy na aktivujících myších dendritických buňkách. Carbohydr. Polym. 205, 540–549.
Cao, P., Wu, S., Wu, T., Deng, Y., Zhang, Q., Wang, K., Zhang, Y., 2020. Důležitá role polysacharidů z tradiční čínské medicíny – čištění plic a Detoxikační odvar proti pandemii COVID-19. Carbohydr. Polym. 240,m116346
Carrera Silva, EA, Chan, PY, Joannas, L., Errasti, AE, Gagliani, N., Bosurgi, L., Jabbour, M., Perry, A., Smith-Chakmakova, F., Mucida, D., Cheroutre, H., BurstynCohen, T., Leighton, JA, Lemke, G., Ghosh, S., Rothlin, CV, 2013. T cell-derived
protein S zapojuje signalizaci TAM receptoru v dendritických buňkách, aby řídil velikostimunníOdezva. Imunita 39, 160–170.
Čínská lékopisná komise, 1992. Standardní čínská bylinná medicína čínského ministerstva zdravotnictví, svazek jedna. Tisk Čínské lékopisné komise, Peking, s. 1.
Dong, Q., Yao, J., Fang, J., Ding, K., 2007. Strukturní charakterizace a imunologická aktivita dvou studenou vodou extrahovatelných polysacharidů zCistanchedeserticolaYC Ma. Carbohydr. Res. 342 (10), 1343–1349.
Dubois, M., Gilles, K., Hamilton, JK, Rebers, PA, Smith, F., 1951. Kolorimetrická metoda pro stanovení cukrů. Příroda 168, 167.
Fu, Z., Fan, X., Wang, X., Gao, X., 2018.CistanchesHerba: přehled jejích chemických, farmakologických a farmakokinetických vlastností. J. Ethnopharmacol. 219, 233–247.
Giuseppe, DG, Rino, R., Didierlaurent, AM, 2018. Koreláty adjuvantnosti: přehled adjuvans v licencovaných vakcínách. Semin. Immunol. 39, 14–21.
Inaba, K., Inaba, M., Romani, N., Aya, H., Deguchi, M., Ikehara, S., Muramatsu, S., Steinman, RM, 1992. Generování velkého množství dendritických buněk z myši kultury kostní dřeně doplněné faktorem stimulujícím kolonie granulocytů/makrofágů. J. Exp. Med. 176, 1693–1702.
Li, P., Wang, F., 2015. Polysacharidy: kandidáti slibných adjuvans vakcín. Drug Discov Ther 9, 88–93.
Li, X., Zhao, R., Li, H., De, Z., Wu, H., 2012. Deproteinizace polysacharidů ze stigma maydis metodou Sevag. Adv. Mater. Res. 340, 416–420.
Li, J., Li, J., Zhang, F., 2015. Imunoregulační účinky čínské bylinné medicíny na zrání a funkci dendritických buněk. J. Ethnopharmacol. 171, 184–195.
Li, T., Zhang, L., Jin, C., Xiong, Y., Cheng, YY, Chen, K., 2020. Extrakt z granátového jablka obousměrně reguluje proliferaci, diferenciaci a apoptózu 3T3- L1 buňky prostřednictvím regulace exprese PPAR zprostředkované signální dráhou PI3K-AKT. Biomed. Pharmacother. 131, 110769.
Morrison, DC, Jacobs, DM, 1976. Vazba polymyxinu B na část lipidu A bakteriálních lipopolysacharidů. Imunochemistry 13, 813-818.
Park, MJ, Ryu, HS, Kim, JS, Lee, HK, Kang, JS, Yun, J., Kim, SY, Lee, MK, Hong, JT, Kim, Y., 2014. Platycodon grandiflorum polysacharid indukuje dendritické buňky zrání prostřednictvím signalizace TLR4. Food Chem. Toxicol. 72, 212–220.
Qi, C., Guo, Y., Zhou, W., Zhang, Y., 2016. Imunostimulační polysacharidy související s Toll-like receptorem 4-: primární struktura, vztahy aktivity a možné modely interakcí. Carbohydr. Polym. 149, 186–206.
Re, F., Strominger, JL, 2001. Toll-like receptor 2 (TLR2) a TLR4 odlišně aktivují lidské dendritické buňky. J. Biol. Chem. 276, 37692–37699.
Reed, SG, Orr, MT, Fox, CB, 2013. Klíčové role adjuvans v moderních vakcínách. Nat. Med. 19, 1597–1608.
Reed, SG, Tomai, M., Gale, MJ, 2020. Nové obzory v adjuvans pro vývoj vakcín. Curr. Opin. Immunol. 65, 97-101.
Rey-Ladino, J., Ross, AG, Cripps, AW, Mcmanus, DP, Quinn, R., 2011. Přírodní produkty a hledání nových adjuvans vakcín. Vaccine 29, 6464–6471.
Schijns, V., Fernandez ´ Ejada, A., Barjaktarovi, A., Bouzalas, I., Lavelle, EC, 2020. Modulaceimunníodpovědipoužití adjuvans k usnadnění terapeutické vakcinace. Immunol. Rev. 296, 169–190.
Seder, RA, Darrah, PA, Roederer, M., 2008. Kvalita T-buněk v paměti a ochraně: důsledky pro návrh vakcíny. Nat. Rev. Immunol. 8, 247–258.
Steinman, RM, 2012. Rozhodnutí o dendritických buňkách: minulost, přítomnost a budoucnost. Annu. Rev. Immunol. 30, 1–22.
Sun, B., Yu, S., Zhao, D., Guo, S., W, X., Zhao, K., 2018. Polysacharidy jako adjuvans vakcín. Vaccine 36, 5226–5234.
Tian, H., Liu, Z., Pu, Y., Bao, Y., 2019. Imunomodulační účinky vyvíjené polysacharidy Poria Coco prostřednictvím signalizace TLR4/TRAF6/NF-κB in vitro a in vivo. Biomed. Pharmacother. 112, 108709.
Wei, W., Xiao, HT, Bao, WR, Ma, DL, Leung, CH, 2016. TLR-4 může zprostředkovat signální dráhy Astragalus polysacharidem RAP-indukované exprese cytokinů buněk RAW264.7. J. Ethnopharmacol. 179, 243–252.
Zhang, A., Yang, Y., Wang, Y., Zhao, G., Yang, X., Wang, D., Wang, B., 2017. Adjuvantní vodné extrakty z Artemisia rupestris L. zlepšujíimunníodpovědiprostřednictvím signální dráhy TLR4. Vaccine 35, 1037–1045
Zhang, A., Yang, X., Li, Q., Yang, Y., Zhao, G., Wang, B., Wu, DC, 2018. Imunostimulační aktivita vodou extrahovatelných polysacharidů zCistanchedeserticolajako rostlinné adjuvans in vitro a in vivo. PloS One 13, e0191356.
Zhao, B., Lian, J., Wang, D., Li, Q., Zhang, A., 2019. Hodnocení vodných extraktůCistanchedeserticolaje polysacharidové adjuvans pro sezónní vakcínu proti chřipce u mladých dospělých myší. Immunol. Lett. 213, 1–8.
Zhou, L., Liu, Z., Wang, Z., Yu, S., Long, T., Zhou, X., Bao, Y., 2017. Astragalus polysaccharides vykazují imunomodulační účinky prostřednictvím TLR4-zprostředkované MyD88-závislé signální dráhy in vitro a in vivo. Sci Rep-UK 7, 44822.
Zhu, J., Zhang, Y., Shen, Y., Zhou, H., Yu, X., 2013. Polysacharidy Lycium barbarum indukují Toll-like receptor 2- a 4-zprostředkované fenotypové a funkční zrání myších dendritických buněk prostřednictvím aktivace NF-KB. Mol. Med. Rep. 8, 1216–1220.
Zhu, N., Lv, X., Wang, Y., Li, J., Liu, Y., Lu, W., Yang, L., Zhao, J., Wang, F., Zhang, LW, 2016 Porovnání imunoregulačních účinků polysacharidů ze tří přírodních bylin a buněčného příjmu v dendritických buňkách. Int. J. Biol. Macromol. 93, 940-951.


