Antioxidační, protizánětlivé a protistárnoucí vlastnosti aminokyselin podobných mykosporinu: Molekulární a buněčné mechanismy v ochraně proti stárnutí kůže
Mar 24, 2023

Kliknutím sem získáte Cistancheaminokyseliny podobné mykosporinu
klíčová slova:aminokyseliny podobné mykosporinu; mykosporin-2-glycin; sloučenina absorbující UV záření;opalovací krém;proti stárnutí; antioxidační; protizánětlivé; anti-protein-glykační aktivita
1. Úvod
Kůže, největší lidský orgán, je neustále vystavována vnějšímu prostředí. Vystavenírůzné stresové faktory životního prostředí, zejména ultrafialové (UV) záření ve slunečním světle, může poškoditkůže. Sluneční světlo lze rozložit na tři typy neionizujícího elektromagnetického záření – infračervené(IR) (780-3000 nm), viditelné (400-780 nm) a UV (100-400 nm). Procenta vyzařované energiek Zemi, v celkové energii emitované Sluncem, tvoří 53 procent IR, 39 procent viditelné a 8 procent UV [1]. Nazáklad jeho fyziologických a biologických účinků, UV záření lze dále rozdělit na tři hlavnípásma – pásmo 315–400 nm (označené jako UV-A), pásmo 280–315 nm (označené jako UV-B),a pásmo 100–280 nm (označené jako UV-C) [2]. Sluneční UV záření je drasticky sníženopři průchodu ozónovou vrstvou a atmosférou; v důsledku toho podíl UV paprsků vsluneční světlo dopadající na zemský povrch se skládá z 95 procent UV-A a 5 procent UV-B [1].
Ačkoli totvoří pouze malou část celkového UV záření, UV-B je považováno za škodlivější nežUV-A, protože UV-B je nejaktivnější při poškození kůže a očí [3]. Známé jsou také UV-A a UV-Bbýt genotoxické, což znamená, že mohou vyvolat fotochemické poškození buněčné DNA a proteinů [4,5]. V důsledku toho vystavení UV-A a UV-B stimuluje fotostárnutí pokožky a může za něvyvolání rakoviny kůže [6]. Fotostárnutí kůže je charakterizováno rozvojem pigmentaceporuchy, jako jsou solární lentiginy, jemné a hrubé vrásky a benigní, premaligní a maligníkožní nádory na kůži vystavené slunci [7]. Vysoce energetické UV-C záření nemá biologický významprotože nedosahuje zemského povrchu, kvůli jeho úplné absorpci ozónovou vrstvou aatmosféra [1,3]. Poškozování ozonové vrstvy v posledních několika desetiletích zvýšilomnožství slunečního UV záření dopadajícího na zemský povrch [8], zejména úrovně UV-B, protože UV-A jenení absorbován ozónovou vrstvou [9].
Mnoho mořských organismů, které jsou vystaveny UV záření, si vyvinulo fotoprotektivnímechanismy [10]. Například u sinic, které dominují mořskému prostředí, UVochranné mechanismy se vyvinuly na molekulární, buněčné a behaviorální úrovni [11]. Sinicedokáže syntetizovat různé typy "opalovacích" sloučenin, které poskytují ochranu před UV zářením.Aminokyseliny podobné mykosporinu (MAA), Stoneman a karotenoidy jsou známy jako klíčové sloučeninyu sinic, které mohou absorbovat vlnové délky v UV oblasti. Tyto přírodní produkty jsou slibnékandidátní molekuly v oblasti objevování kosmeceutických sloučenin [12]. Ve skutečnosti, MAA majíjiž byly komercializovány jako Helioguard®365. Toto kosmetické činidlo obsahuje lipozomálníMAAs, shinorin (SHI) a Porphyra{0}} (P334), který byl původně extrahován z červené řasyPorphyra umbilicalisa byl úspěšně komercializován jako přírodní a bezpečný opalovací krémsložený [12]. Kromě toho jsou MAA považovány za multifunkční sekundární metabolity vbuňky producentů [13]. O mnoha MAA je známo, že působí jako antioxidanty [14], zatímco několik posledních zprávnavrhli, že MAA mají potenciální terapeutické aplikace pro snížení procesů stárnutí kůže.Z tohoto pohledu bylo v poslední době vydáno několik přehledových zpráv se zvláštním důrazem na potenciální využitíMAA v kosmetických produktech byly zveřejněny [15–17]. V tomto článku přezkoumáme MAA ajejich potenciál jako přísad proti stárnutí pleti, a to popisem základního přehledu jejich struktury dřívepřejdeme k podrobnému popisu nejnovějších experimentálních pozorování, takto nashromážděnýchdaleko. Mechanismy, kterými mohou MAA působit na ochranu pokožky před stárnutím, jsou diskutovány na obou,na buněčné a molekulární úrovni. Zejména výrazná potenciální aktivita proti stárnutíMAA mykosporin-2-glycin (M2G), který je biosyntetizován halotolerantní sinicíAphanothece halofytické, je zvýrazněno.
2. Mechanismy UV-indukovaného stárnutí kůže
UV záření je důležité pro naše zdraví, protože expozice UV-B může vyvolat produkci rozhodujících látekživina, vitamín D, v naší kůži [18]. Dlouhodobé a opakované vystavení UV záření však může podporovat vznikproces fotostárnutí kůže, včetně tvorby rakoviny kůže [19]. Mechanismy, kterými je zprostředkované UV zářenív této části jsou stručně popsány.
2.1. Poškození buněčné DNA
Přímé a nepřímé toxické účinkyUV záření na molekulu DNA, zprostředkovávají fotostárnutí.Přímá absorpce UV-B fotonů DNA může vést ke vzniku pyrimidinových dimerů,což vede k defektům v řetězci DNA [20]. UV-B záření vede většinou ke vznikucis-syncyklobutadipyrimidiny (CPD) a pyrimidinové (6-4) pyrimidonové fotoprodukty (6-4PP). 6-4PPmohou být převedeny na příbuzné Dewarovy valenční izomery (DewPP) po UV-excitaci při 314 nm.Takové poškození DNA narušuje replikaci a transkripci DNA a přináší různé škodlivé účinkyk buňce, jako je mutace, nestabilita chromozomu a buněčná smrt. UV-A nepřímo mění strukturu DNA, protože DNA silně neabsorbuje záření v rozsahu UV-A [21]. UV-A však může poškodit DNA nepřímo, prostřednictvím fotosenzibilizované reakce zprostředkované generovánímradikálový singletový kyslík (1O2), což vede k modifikacím purinových bází [20]. Aniont singletového kyslíku
oxiduje guaninovou skupinu, následovanou tvorbou 8-oxo-7,8-dihydroguaninu (8-oxo-G) a8-oxo-7,8-dihydro-2'-deoxyguanosin (8-oxo-dG). Protože 8-oxo-G a 8-oxo-dG se mohou spojovat s adeninemmísto cytosinu se mohou objevit přechodné mutace.
2.2. Generování druhů reaktivního kyslíku
Reaktivní formy kyslíku (ROS), iniciátory oxidačního stresu, jsou reaktivní s obsahem kyslíkuchemické druhy, které zahrnují peroxid vodíku (H2O2), hydroxylové radikály (·OH), superoxidový anionradikály (·O2 −), a1O2. Je známo, že v naší kůži je vystavení UV záření spojeno sgenerace ROS. Tyto ROS mohou aktivovat kaskády stárnutí kůže, jako je matricová metaloproteináza(MMP)-1-zprostředkované stárnutí a NF-κB-TNF- - zprostředkované, zánětem vyvolané stárnutí [22]. Rozmanitostmechanismu generování ROS UV zářením v závislosti na rozsahu vlnových délek UV záření. Navíc1O2 generace, jak je uvedeno výše, bylo hlášeno, že UV-A záření může vyvolat generaciz·O2 − aktivací intracelulárního nikotinamidadenindinukleotidfosfátu (NADPH)oxidáza, NOX [23] a spojení s konečnými produkty pokročilé glykace (AGE) [24]. Sakurai a kol.objasnil, že oba1O2 a·O2 - byly vytvořeny v kůži myší vystavených UV-A [25]. H2O2, ·O2 −, a·Druhy OH se mohou generovat v AGE, během expozice UV-A [24]. UV-B je také známovést k produkci H2O2, ·O2 −, a·ACH [26]. Ačkoli zdrojem těchto ROS vyvolaných UV-Bzůstává nejasné, nedávno bylo oznámeno, že NADPH oxidáza, NOX1, je spojena s indukcí UV-Bp38/Aktivace a cytotoxicita MAPK prostřednictvím tvorby ROS v keratinocytech [26].
Aby se zabránilo poškození kůže způsobenému nadměrným množstvím ROS vyvolaným UV zářením a regulovala se epidermální homeostáza,kožní buňky mají antioxidační funkci, která působí jako endogenní obranný systém [20]. Tento systémse skládá převážně ze šesti enzymů – superoxiddismutázy (SOD), katalázy (CAT), glutathionperoxidázy(GPX), glutathionreduktáza (GR), thioredoxinoxidáza (TRXR) a peroxiredoxin (PRDX) (obrázek1). SOD a CAT eliminují·O2 − a H2O2, respektive, a nakonec převést·O2 − k H2O, zatímcoGPX, GR, TRXR a PRDX eliminují H2O2regulací redoxních podmínek glutathionua thioredoxin. Kromě tohoto enzymatického systému, neenzymatické molekuly, jako je vitamín C(kyselina askorbová), vitamín E ( -tokoferol), glutathion a kyselina močová, hrají hlavní roli jako antioxidantyv kůži [27]. Tyto malé molekuly zachycují a neutralizují volné radikály tím, že poskytují navícelektron k vytvoření elektronového páru.
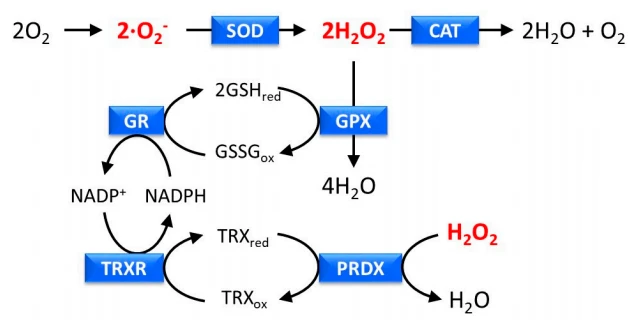
Obrázek 1.Odstranění reaktivních forem kyslíku (ROS) antioxidačním obranným systémem sestávajícím zsuperoxiddismutáza (SOD), kataláza (CAT), glutathionperoxidáza (GPX), glutathionreduktáza(GR), thioredoxin oxidáza (TRXR) a peroxiredoxin (PRDX). GSHred a GSSGox indikují sníženéglutathion, respektive oxidovaný glutathion. TRXred a TRXox indikují snížený thioredoxina oxidovaný thioredoxin, v daném pořadí
Vystavení UV záření vyvolává zánět tím, že spouští chemické reakce v kůži. Odlišnývzory zánětu jsou způsobeny expozicí specifickým vlnovým délkám světla.Tři skupiny, UV-A,Na základě těchto rozdílů byly klasifikovány UV-B a UV-Cvzory zánětů [28]. Erytémvyvolané v kůži, po vystavení UV-B záření je charakterizováno jako spálení sluncem. Zánětlivéodezvy vyvolané UV-B se většinou dosahují prostřednictvím různých mediátorů, včetně dusičnanůoxid (NO), indukovatelná NO syntáza (iNOS), prostaglandin E2 (PGE2), cyklooxygenáza-2 (COX-2),tumor nekrotizující faktor - (TNF- ) a další cytokiny, jako je interleukin-1 (IL-1) a interleukin-6(IL-6) (Obrázek2). Tyto molekuly jsou regulovány převážně nukleárním faktorem kappa B (NF-κB), a jsou většinou produkovány v keratinocytech, které jsou převládajícím typem buněk v epidermis [29]. Má tobylo hlášeno, že exprese proteinu COX-2, který je zodpovědný za PGE2 výroba, jeupregulovány po expozici UV-B jak v lidské kůži, tak v kultivovaných lidských keratinocytech [30]. Je také známo, že ROS jsou spojeny se zánětlivou odpovědí, jak bylo pozorovánoExprese COX-2 byla indukována ROS v různýchtypy buněk [31]

Obrázek 2Zánětlivá reakce vyvolaná UV-B. Oxid dusnatý (NO), indukovatelná NO syntáza (iNOS),prostaglandin E2 (PGE2), cyklooxygenáza-2 (COX{1}}), tumor nekrotizující faktor- (TNF- ), a dalšícytokiny, jako je interleukin{0}} (IL-1) a interleukin-6 (IL-6), jsou uvedeny jako mediátory
2.4. Indukce matrixových metaloproteináz
UV záření upreguluje expresi matricových metaloproteináz (MMP) v kůži. MMP, o kterých je známo, že jsou zodpovědné za destrukci proteinů extracelulární matrice (ECM), jako je kolagen, které hrají důležitou roli při udržování homeostázy kůže a stárnutí kůže (32). MMP jsou vylučovány keratinocyty a dermálními fibroblasty v reakci na četné stimuly, včetně oxidačního stresu a cytokinů, kromě UV záření. Má se za to, že opakovaná indukce těchto enzymů degradujících kolagen v dlouhodobém horizontu způsobuje poškození kolagenu, což je jeden z důvodů fotostárnutí. Ačkoli je v kůži savců exprimováno několik MMP, existuje domněnka, že MMP-1 je hlavním enzymem degradujícím kolagen, který je zodpovědný za destrukci kolagenu v několika kůži poškozené světlem (33). Upregulace exprese MMP je stimulována aktivátorovým proteinem-1(AP-1), o kterém je známo, že je transkripčním faktorem indukovatelným UV zářením (34 Ve skutečnosti je regulačním prvkem AP{10}} existuje v 5' přilehlé oblasti genů MMP Transformující růstový faktor-beta (ICF-P) a NF-KBare je také známo, že se účastní indukce MMP v kůži (34).
2.5. Indukce glykace proteinů
Glykace proteinů (neenzymatická glykosylace), známá také jako první krok Maillardovy reakce,zahrnuje tvorbu kovalentních vazeb mezi proteiny a redukujícími cukry. Kondenzační reakcemezi volnými aminoskupinami proteinů a karbonylovými skupinami cukrů, vede ke vzniku aSchiff základ, následovaný produktem Amadori. Přebytečné produkty jsou oxidovány a dehydratovány za vznikustabilní, molekulární, zesíťující produkty, nazývané pokročilé glykační koncové produkty (AGEs) [35]. Proteinglykace ovlivňuje fyzikální a funkční vlastnosti proteinu, protože způsobuje konformacizměny ve struktuře bílkovin [36]. V kůži bylo hlášeno, že glykace kolagenu typu I jespojené s rozvojem otupělosti kůže a snížení elasticity kůže [37]. AGE jsou taképodílí se na tvorbě ROS. Masaki a kol. uvedli, že expozice AGEs UV-A zářeníin vitro, vyústilo v generaci ROS, jako je kupř·O2 −, H2O2, a·OH, jak je uvedeno výše [24]. U lidí může autofluorescence kůže, biomarker pro AGEs, fungovat jako endogenní fotosenzibilizátorkterý vyvolává tvorbu ROS po vystavení UV-A záření [35]. Tedy glykační reakcea následná tvorba AGE je považována za jeden ze základních mechanismů spojených s kůžístárnutí, v podmínkách prostředí, zejména UV záření [24].
3. Přírodní sloučeniny, které zabraňují poškození způsobenému UV zářením (UVR).
Závislost na vlnové délce je rozhodující při určování fotobiologických účinků. Krátkovlnné UV-Cje nejškodlivějším typem UV, ale protože je odfiltrováno ozónovou vrstvou, pouze UV-B aUV-A jsou považovány za biologicky významné. Vzhledem k jejich vlivům způsobuje pouze UV-Anepřímé poškození DNA prostřednictvím tvorby·O2 −, iniciátor důležitých ROS (viz oddíl2.2). UV-A proniká hluboko do dermis kůže. Dlouhodobé vystavení UV-A záření může vést k fotostárnutía potlačení imunitního systému. Přímé poškození DNA je však způsobeno UV-B zářenímvytváření CPD a 6-4PP. UV-B také způsobuje poškození a transformaci kůže, např.ovlivněnímkožní struktury a způsobují vrásky (příznak fotostárnutí), drsnost a předčasnéstárnutí a dokonce vede k kožním malignitám a smrtelným onemocněním, jako je rakovina kůže [38]. Aby se předešlo nebo zmírnilo tyto nepříznivé účinky, zablokování nadměrného UV záření nebo zmírněníkaskáda fotopoškození vyvolaného UV zářením je zásadní. Látky na ochranu proti slunečnímu záření (buď fyzikální blokátory nebo chemické látkyčinidla) se často aplikují na kůži, aby blokovaly nadměrné UV záření. V poslední době roste poptávkaaby byly umělé chemické opalovací krémy nahrazeny přírodními. Je to z důvodu nepříznivéhonebo vedlejší účinkyumělých chemických opalovacích krémů a kvůli ochraně životního prostředí. Přírodníopalovací krémy a přírodní sloučeniny, které mají vlastnosti, které odolávají poškození způsobenému UV zářením, jsouproto velký zájem. Některé přírodní sloučeniny mohou vést k výraznému zlepšení pokožkyzdraví a výkon.Přírodní sloučeniny, které mohou poskytnout ochranu proti poškození způsobenému UVR zářením, mohou býtkategorizované na základě těchto mechanismů — (1) blokování UV fotonů; (2) zapojení dosystém opravy DNA; (3) antioxidační aktivita; (4) antiimunomodulační aktivita; (5) protizánětlivéaktivita; a (6) mající inhibiční účinek na buněčnou matrici [39]. V této části popisujemepřírodní sloučeniny z rostlinných extraktů a třída sekundárních metabolitů, které majífarmakologický význam jako vynikající sloučeniny chránící před slunečním zářením, nazývané aminoskupiny podobné mykosporinukyseliny (MAA).
3.1. Rostlinné extrakty
Databáze přírodních sloučenin (NC) obsahuje více než 320,000 sloučenin uvedených vSuper přírodní II. Z toho bylo získáno více než 50 000 sloučeninz rostlinných extraktů byly odeslány do databáze. Největší třída přírodních rostlinných extraktů, u kterých bylo prokázáno, že jsou nejrelevantnějšíčinnost a nejpříznivější účinkyproti poškození způsobenému UV-B zářením, které bylo dosud hlášeno, jsou tytokteré působí prostřednictvím inhibičních účinkůna signálních cestách (například NF-κB, MARK a AP-1),a biomarkerové proteiny cílových signálních drah (například COX-2 u zánětlivýchsignalizace). Inhibiční účinkyna těchto signálních drahách dále modulují buněčné signální cílea antioxidační vlastnosti, k vyčerpání tvorby ROS. Například extrakt z granátového jablka bylbylo prokázáno, že inhibuje UV-B-zprostředkovanou fosforylaci NF-κDráhy B a MARK v normálulidské epidermální keratinocyty (NHEK) [40]. Inhibice aktivace MARK a indukované UV-BNF-κB proanthokyanidiny, třídou polyfenolů izolovaných z hroznových semen, polyfenoly zbyl hlášen zelený čaj a kvercetin z cibule [41]. Resveratrol, třída přírodních fenolůzískaný z hroznové slupky, brusinek a arašídů má schopnost snižovat NF-κB aktivace [42]. COX-2, biomarkerový protein zánětlivé kaskády, je inhibován fenolickými sloučeninami, jako je kofeinkyselina z bílých hroznů [43], kaempferol z hroznů [44] a kurkumin z kurkumy [45]. Komplexní studie přírodních rostlinných látek, které mohou chránit před poškozením způsobeným UVB zářenímbyly shrnuty v předchozích přehledových článcích [46–48].
3.2. Aminokyseliny podobné mykosporinu
Aminokyseliny podobné mykosporinu (MAA) byly poprvé objeveny v houbách a spojovány s afyziologická role ve světlem stimulované sporulaci. V roce 1993 přímý účinekjako fotoochranabylo zřejmé ze schopnosti sloučeniny blokovat fotony. Bylo odhaleno, že MAA mohlizabránit 3 z 10 fotonů v zasažení cytoplazmatického cíle u sinic [49]. Tato schopnost vedlaMAA jsou známé jako primární opalovací krém.Hromadné důkazy ukázaly, že některé MAA mají další prospěšné funkce. Jejichvýrazný fotoochranný potenciál byl poprvé zaznamenán, když bylo prokázáno, že jsou lapači ROS,schopnost, která vznikla díky jejich antioxidační schopnosti [14,50]. Dále mají odlišné biologické funkceod té doby byla prokázána, včetně ochrany před poškozením DNA, protizánětlivé aktivity a inhibiceakce vůči AGEs. Díky těmto mnoha prospěšným funkcím jsou MAA velmi zajímavé biomolekuly.Více podrobností o těchto přírodních sloučeninách bude dále přezkoumáno v další části.
4. Molekulární vlastnosti MAA
V této části je současné základní chápání MAA shrnuto do tří částí – obecnépopis MAA, jejich chemická struktura a jejich biosyntetické dráhy.
4.1. Obecný popis
„Mykosporin“ je běžný termín používaný pro plísňové metabolity absorbující UV záření, které bylysubstituován aminokyselinovými zbytky [51]. Od 60. let 20. století se deriváty mykosporinu, seskupené jako MAA,byly nalezeny a identifikovány u široké škály organismů, včetně mořských organismů, jako jsou napřjako červené řasy, mořské hvězdice, korály, dinoflageláty, sinice a lišejníky [12,52]. MAA zahrnují acyklohexenonový nebo cykloheximidový kruh, protože jejich jádrová chromoforová kruhová struktura je substituovánaaminokyselinové zbytky nebo iminoalkoholy nebo některé další modifikace (obr3). Například vstruktura P334, threonin a glycin se vážou na pozice C1 a C3 jádrového chromoforustruktura, resp.MAA jsou považovány za nejúčinnějšíSloučeniny absorbující UV-A v přírodě [53]. MAAsvykazují maximální absorbanci v rozsahu UV-A a UV-B (od 310 do 362 nm), s vysokoumolární extinkční koeficienty (ε = 28,100–50,000 M−1 cm−1 ). V organismech, které akumulují MAA,předpokládá se, že tyto sloučeniny přispívají k potlačení stresu vyvolaného UV zářením tím, že se rozptylujípřebytečné energie ve formě tepla, bez generování ROS, po absorpci UV záření. MAA jsousloučeniny vysoce rozpustné ve vodě, díky svým zwitteriontovým vlastnostem, odvozené od jejich aminokyselinsubstituce, a proto se obecně hromadí v cytosolickém prostoru. Bylo to oznámenoMAA mohou v buňkách působit jako multifunkční sloučeniny. Kromě jejich role chránící před UV zářením, dalšídůležitou biologickou úlohou MAA jsou jejich antioxidační vlastnosti [14]. Další vlastnosti MAA,dosud navrhované, zahrnují DNA-ochrannou aktivitu [54], protizánětlivá aktivita [55,56], činnost dopodporovat osmotickou rovnováhu [57,58] a zapojení do interakcí buňka-buňka [13].
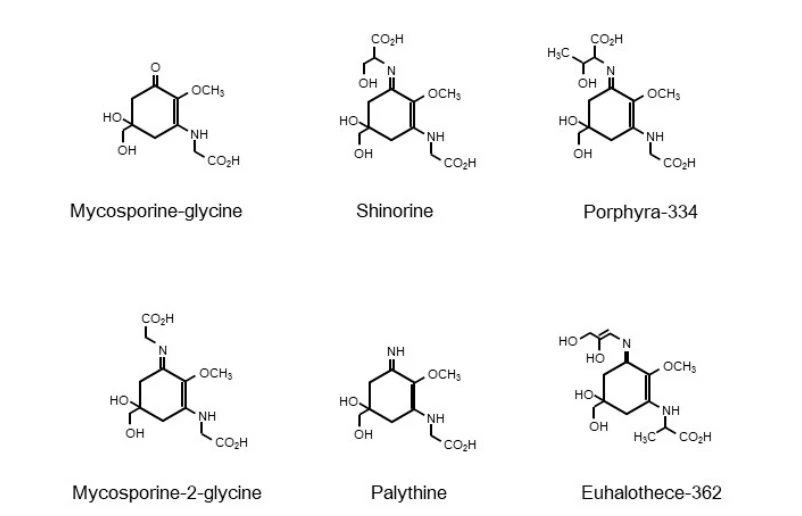
Obrázek 3Chemické struktury vybraných mykosporinových aminokyselin (MAA) – mykosporinuglycin, shinorin, porfyra-334, mykosporin-2-glycin, palythin a euhalothece-362

4.2. Chemická struktura
MAA lze zhruba rozdělit do dvou skupin - monosubstituované MAA a disubstituované MAA. V monosubstituovaných MAA je poloha C3 na cyklohexenonové struktuře substituována aminosloučeninou. Jedna z monosubstituovaných MAA, mykosporin-glycin (MG), který je běžným meziproduktem pro bioprodukci disubstituovaných MAA, byla navržena jako důležitý ochranný prostředek proti poškození slunečním zářením u mořských organismů prostřednictvím eliminace 'O, (591. Absorpční maximum MC je uváděno jako 310 nm. Na druhé straně se absorpční maxima disubstituovaných MAA liší od 320 do 362 nm, v závislosti na typu příkladu substituentu, absorpční maxima P334 ( C1: Thr; C3: Gly), palythin (C1: -NH; C3: Gly a M2G (C1: Gly; C3: Gly) jsou 334, 320 a 331 nm, v tomto pořadí [14]. atom dusíku na iminové skupině, má za následek vytvoření zwitterionu s následnou konjugací a delokalizací kladného náboje na atomu dusíku nad strukturou jádra Tato konjugace stimuluje UV absorpci MAA. Rozsah rezonanční delokalizace může ovlivnit extinkční koeficient a absorpční maximum každé MAA (14) Další modifikace substituentů MAA kondenzací, dehydratací, dekarboxylací, oxidací, redukční sulfonací nebo glykosylací je také může ovlivnit.K dnešnímu dni bylo identifikováno více než 30 různých MAA. K identifikaci a charakterizaci těchto MAA byly použity různé experimentální techniky, jako je analýza vysokoúčinnou kapalinovou chromatografií (HPLC), analýza hmotnostní spektrometrie (MS) včetně kapalinové chromatografieLC)-MS, analýza aminokyselin, infračervená (IR) spektroskopická analýza. nukleární magnetická rezonance (analýza NMR a plynová chromatografie (analýza GC-MS. Vhodná kombinace těchto analytických technik spolu s technologickými vylepšeními v analytických přístrojích účinně pomáhá charakterizovat strukturu MAA) (12). Materiály MAA pro analýzu byly často používány techniky preparativní kapalinové chromatografie po extrakci MAA z organismů pomocí organických rozpouštědel, jako je methanol a ethanol (60).