Léčba proti stárnutí zpomaluje šíření synukleinopatie obnovením funkce lyzozomů
Mar 30, 2023
Úvod:
Charakteristická je akumulace specifických proteinových agregátůneurodegenerativních onemocnění, jakoAlzheimerova choroba(INZERÁT),Parkinsonova choroba(PD) aAmyotrofní laterální skleróza(ALS). Mezi proteiny, které se agregují u těchto onemocnění, patří Ab a MAPT/tau u AD, SNCA/a-synuklein u PD a TARDBP/TDP-43 u ALS. Agregace proteinů je důsledkem poruchy proteostázy, která je udržována koordinovanou regulací syntézy, skládání a degradace proteinů. Mutace v syntéze proteinů a degradační mechanismy způsobujíneurodegeneraceve zvířecích modelech a jsou často spojeny s člověkemneurodegenerativních onemocnění. Protein se shlukuje vneurodegenerativních onemocněníPostupně se šíří z omezených oblastí mozku do větších oblastí, jak onemocnění postupuje. V případě PD se agregáty SNCA zpočátku vyskytují v dolních jádrech mozkového kmene a čichovém bulbu a následně se šíří vzestupnými cestami přes horní oblasti mozkového kmene do kortikálních oblastí. Přenos proteinových agregátů z buňky do buňky byl navržen jako základní mechanismus pro toto patologické šíření v mozcích pacientů s neurodegenerativními onemocněními.1-3 Podrobnosti o mechanismu přenosu agregátů z buňky na buňku zůstávají nepolapitelné, nicméně důkazy naznačují, že nekonvenční exocytóza a následná endocytóza v sousedních buňkách tvoří hlavní rámec mechanismu. Za předpokladu, že propagace agregátů vede k progresi fenotypů onemocnění, se narušení mezibuněčného přenosu agregátů ukazuje jako slibná strategie pro zastavení progrese onemocnění.4,5 Přenos proteinových agregátů z buňky do buňky je 2-krokový proces: přenos agregátů z dárcovských buněk do buněk příjemce a společná agregace přenesených proteinů a endogenních proteinů.6 Zde jsme vyvinuli modely Caenorhabditis elegans (C. elegans), které využívají bimolekulární fluorescenční komplementaci (BiFC).7 vykazovat fluorescenci ve svalech hltanu a jejich asociovaných neuronech pouze tehdy, když proteiny SNCA interagují mezi sebou transcelulárně. Pomocí těchto zvířecích modelů jsme zkoumaliúčinky stárnutína přenos agregátu z buňky do buňky a mechanismuspodstatou účinků stárnutí.

Klikněte sem a zjistěte Cistanche pro neurodegenerativní onemocnění
Výsledky Generování a charakterizace modelu C. elegans pro přenos synukleinopatie
Abychom vyvinuli zvířecí model pro pohodlný test přenosu proteinu z buňky do buňky, vytvořili jsme transgenní linie C. elegans exprimující SNCA fúzovanou buď s N-terminálním nebo C-terminálním fragmentem Venuše, variantou žlutého fluorescenčního proteinu. (Obr. 1A). N-koncová část Venuše (V1) byla připojena k N-konci SNCA (V1S) a C-koncová část Venuše (V2) k C-konci SNCA (SV2). V modelu C. elegans byl V1S exprimován ve svalu hltanu pomocí myo-2 promotoru (Pmyo-2),8 a SV2 a DsRed byly koexprimovány v neuronech připojených k hltanu pomocí flip{{ 16}} promotory (Pflflp-21) 9 (obr. 1B). Přítomnost a exprese těchto transgenů byly ověřeny pomocí single-worm PCR a imunofluorescence s anti-SNCA protilátkou Ab27410 (obr. S1A až D), čímž byly ověřeny specifické exprese proteinů výhradně v zamýšlených typech buněk. Vzorec exprese Pflflp- 21 byl popsán9 a náš vlastní marker aktivity promotoru flip{26}} (DsRed) také vykazoval stejný vzorec exprese, který zahrnuje expresi v senzorických neuronech ADL, ASE a ASH, motorické neurony URA, faryngeální neurony MC, M2 a M4 a střevo (obr. S1E).
Exprese samotného V1S nebo SV2 nezpůsobila fluorescenci BiFC. Nicméně, společná injekce obou konstruktů produkovala silnou BiFC fluorescenci jak v hltanovém svalu, tak v sousedních neuronech, a ten byl označen DsRed (obr. 1C a D; obr. S1E a G). Data naznačují, že k přenosu proteinu došlo v obou směrech. Společná exprese Pflflp-21::SV2-DsRed a Pmyo-2::V1 (bez genu SNCA) negenerovala signál BiFC (obr. 1C a D; obr. S1E), což naznačuje, že signál nebyl způsoben nespecifickými interakcemi mezi fragmenty Venuše. Abychom otestovali specifičnost systému BiFC, vygenerovali jsme linii Pmyo-2::V1Q25 C Pflflp-21::SV2-DsRed, transgenního červa vyjadřujícího huntingtin exon 1 s 25 glutaminovým úsekem pod kontrolou Pmyo-2 a SV2 v neuronech. Tito červi nevykazovali BiFC signál buď v hltanovém svalu nebo neuronech (obr. 1D; obr. S1E). Tento výsledek potvrzuje specifičnost BiFC transgenních červů pro přenos SNCA. Vytvořili jsme také integrované transgenní linie exprimující V1S a SV2-DsRed v daném pořadí a zkřížili jsme je, abychom vytvořili integrovanou dvojitě transgenní linii. Jak se očekávalo, ani V1S ani SV{26}}DsRed integrovaná linie neprodukovala fluorescenci BiFC FL, zatímco integrovaná dvojitá transgenní linie vykazovala silnou fluorescenci BiFC jak v hltanovém svalu, tak v sousedních neuronech (obr. S1F a H). Tento systém BiFC C. elegans lze tedy využít jako model in vivo, ve kterém lze v reálném čase přesně a kvantitativně analyzovat jak přenos proteinu, tak koagregaci mezi proteiny SNCA pocházejícími ze sousedních buněk.
Fluorescence BiFC FL se zvyšovala, jak červ stárnul (obr. 1E a F), a starší zvířata vykazovala shluky signálu BiFC, zatímco mladší vykazovala většinou difúzní vzory (obr. 1E). Tyto údaje naznačují, že přenos SNCA je nepřetržitý proces a že akumulované agregáty vytvářejí později v životě velké inkluze.
Poté jsme zkoumali degeneraci axonálních procesů z motorického neuronu URA.9 Tyto nervy byly intaktní u divokého typu N2 v den 8. Exprese SV2 v neuronech způsobila tvorbu neuritických váčků a fragmentaci nervů u malého počtu červů (obr. 1G až K), což ukazuje na autonomní buněčnou toxicitu SNCA v neuronech. Tyto degenerativní fenotypy byly dále exacerbovány, když byl V1S exprimován v faryngeálním svalu. V druhém případě bylo přibližně 15 procent nervů úplně ztraceno (obr. 1K). Abychom ověřili fragmentaci nervů, provedli jsme 3-D rekonstrukci naskládaných obrazů nervových procesů. Tento experiment jasně vykazoval fragmentaci nervu a tvorbu puchýřků (obr. 1H). Tato data jasně ukazují neautonomní buněčné účinky na životaschopnost neuronů. Nervová degenerace se zhoršila, jak transgenní červi stárli (obr. 1J).
Abychom vyhodnotili změny chování v důsledku přenosu agregátů SNCA, provedli jsme analýzu hltanového pumpování. Rychlost pumpování divokého typu N2 se významně neměnila se stárnutím až do d 16. Jediná exprese V1S nebo SV2-DsRed v hltanovém svalu a sousedních neuronech, v daném pořadí, vedla k mírnému poklesu rychlosti pumpování ve stáří (obr. 1L a tabulka S1). Snížení rychlosti čerpání všech jednotlivých exprimátorů se stalo významným dnem 13 (obr. 1L a tabulka S1). Koinjekce a dvojitě integrované linie vykazovaly závažnější fenotypy pro rychlost čerpání, přičemž pokles se stal zjevným již v d 2 a postupně se zhoršoval, jak červi stárli (obr. 1L a tabulka S1). V testech dlouhověkosti vykazovala jednotlivá transgenní zvířata mírně sníženou délku života ve srovnání s červy N2, zatímco délka života dvojitě transgenních zvířat byla kratší než u jednotransgenních linií (obr. 1M a tabulka S2). Se stárnutím tedy postupuje přenos agregátů a tvorba inkluzních tělísek, stejně jako související degenerativní fenotypy. Porovnání časových linií ukazuje, že smrti organismu předchází akumulace signálu BiFC, degenerace nervů a pokles chování při pumpování. Tyto výsledky byly replikovány s červy exprimujícími neznačenou SNCA ve stejných typech buněk jako model BiFC (obr. S1I až L), což naznačuje, že fenotypy pozorované v modelu BiFC se připisují SNCA.
Účinky genetických faktorů souvisejících se stárnutím na přenos SNCA z buňky do buňky
Dále jsme zkoumali účinky genetických variací souvisejících se stárnutím na agregátní přenos a degenerativní fenotypy. Konstrukty BiFC SNCA byly injikovány do mutant daf-2(e1370) a daf-16(mu86) (obr. S2A a B), které modelují účinky stárnutí, s daf{{6 }} (e1370) mutanti vykazující pomalejší rychlost stárnutí a delší životnost, zatímco daf-16(mu86) mutanti stárnou rychleji než divoký typ a mají zkrácenou životnost.11 The daf{{11 }}(e1370); Zvířata V1SCSV2 vykazovala snížený signál BiFC (obr. 2A a B; obr. S2D), menší počet inkluzních tělísek (obr. 2C a D; obr. S2E), menší degeneraci nervů (obr. 2E a F; obr. S2F a G) zlepšené chování při čerpání (obr. 2G; obr. S2H) a prodloužená životnost než u řady V1SCSV2 (obr. 2H; obr. S2I). Naopak v daf-16(mu86); Zvířata V1SCSV2 se BiFC-pozitivní inkluzní tělíska objevila mnohem dříve než u zvířat V1SCSV2; již v 2-d po fázi L4- (obr. 2C a D; obr. S2E). Samotný signál BiFC byl v daf-16(mu86) nižší; V1SCSV2 než u V1SCSV2 (obr. 2B; obr. S2D), pravděpodobně kvůli časné a robustní tvorbě inkluzních tělísek. The daf-16(mu86); V1SCSV2 zvířata vykazovala závažnější nervovou degeneraci (obr. 2E a F; obr. S2F a G), více snížené chování při čerpání (obr. 2G; obr. S2H) a kratší životnost než zvířata V1SCSV2 (obr. 2H; obr. S2I). Podobné výsledky byly získány ve 3 nezávislých liniích pro každý genotyp. Tyto výsledky naznačují, že genetické faktory ovlivňující procesy stárnutí mohou změnit rychlost přenosu agregátů SNCA a souvisejících degenerativních fenotypů in vivo z buňky do buňky.
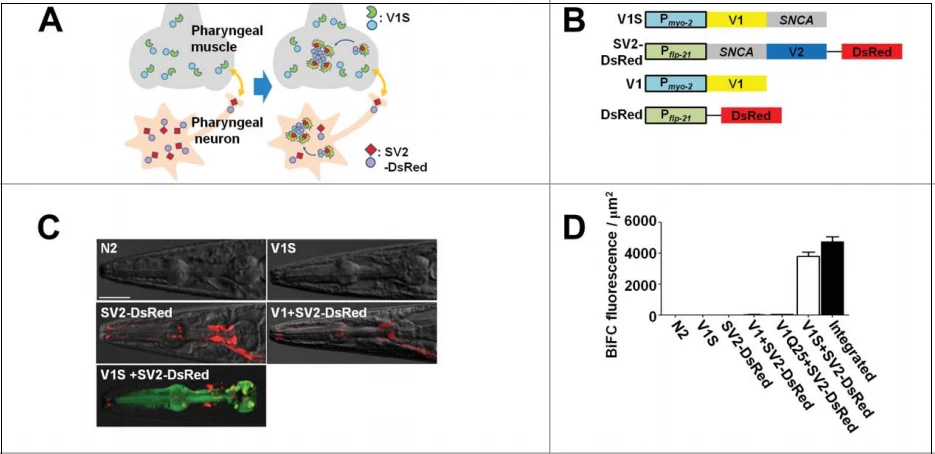


Obrázek 1. Generování a charakterizace modelu C. elegans pro přenos synukleinopatie. (A) Postulované události vedoucí k vytvoření fluorescence BiFC prostřednictvím přenosu SNCA z buňky do buňky. (B) Transgeny používané u C. elegans. DsRed je vyjádřena jako nezávislá translační jednotka, která se používá ke značení neuronů. (C) BiFC fluorescence ve svalech hltanu a neuronech. Všechny obrázky obsahují DIC a fluorescenční obrázky. Šipky označují signály BiFC z neuronů (viz také obr. S1E až H). Měřítko: 20{{20}} mm. (D) Kvantifikace fluorescence BiFC u (C) a dvojitě transgenní integrované linie V1S C SV2. Bylo použito 25 červů z každé linie. (E) Zvýšení fluorescence BiFC se stárnutím. Bílé šipky označují signály BiFC v neuronech a červené šipky označují inkluze v hltanu. Měřítko: 20}0 mm. (F) Kvantifikace fluorescence BiFC u (E) a dvojité transgenní integrované linie V1SCSV2. Bylo použito 25 červů z každé linie; , P < 0,001. (G) Nervové procesy exprimující DsRed byly analyzovány na neurodegeneraci. Měřítko: 200 mm. (H) 3-dimenzionální rekonstrukce axonálních procesů z URA motorického neuronu obsahujícího fluorescenci DsRed. N, normální axonální proces; F, fragmentovaný axonální výběžek. "Fragmentovaný" představuje úplnou degeneraci nervů. Měřítko: 40 mm. (I a J) Blebbing fenotyp. Procento červů, kteří mají puchýře v d 8 (I) a fenotyp puchýřování se stárnutím (J). Bylo použito třicet červů z každé linie n D 3; , P < 0,05; , P < 0,01. (K) Fragmentace axonálního výběžku v d 8. Bylo použito třicet červů z každé linie, n D 3; , P < 0,05. (L) Rychlost čerpání hltanu se stárnutím; Bylo použito 25 červů z každé linie, hodnoty P jsou uvedeny v tabulce S1. (M) Analýza životnosti. Bylo použito sto padesát červů pro každou linii, hodnoty P jsou uvedeny v tabulce S2.
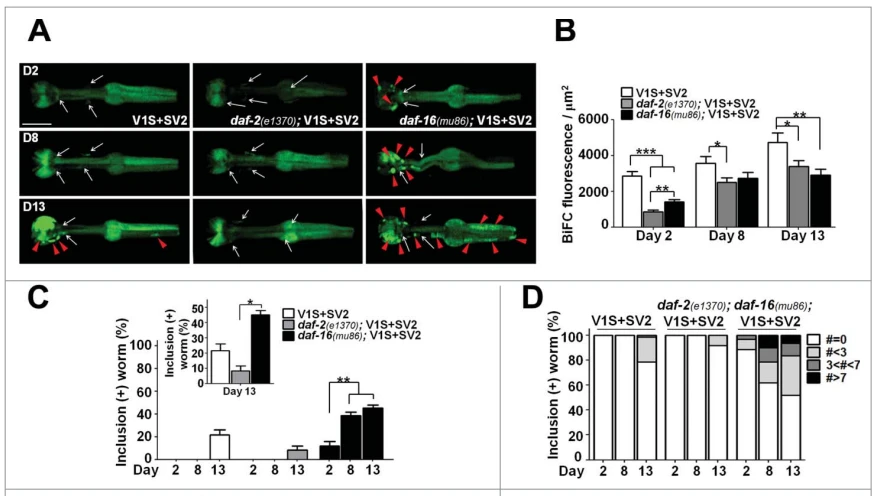
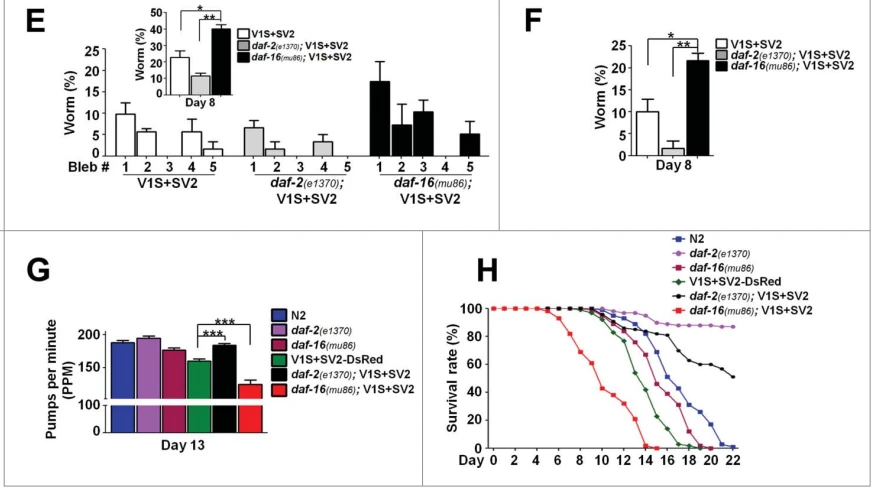
Obrázek 2. Účinky daf-2, daf-16 mutantů na přenos SNCA z buňky do buňky. (A a B) BiFC fluorescence u mutantů souvisejících se stárnutím, daf-2(e1370) a daf-16(mu86) (viz také obr. S2D) . Měřítko: 200 mm (A). Pro každou linii bylo použito dvacet červů n D 3; , P < 0.05; , P < 0.01; , P < 0.001. (C a D) Procento červů, kteří mají BiFC-pozitivní inkluze se stárnutím (viz také obr. S2E). Pro každou linii bylo použito dvacet červů n D 3; , P < 0,05; , P < 0,01. (E a F) Kvantifikace počtu axonálních váčků (E) a fragmentace nervu (F) v d 8 (viz také obr. S2F a G). Pro každou linii bylo použito dvacet červů n D 3; , P < 0,05; , P < 0,01. (G) Rychlosti čerpání hltanu při d 13 (viz také obr. S2H). Pro každou linii bylo použito dvacet červů n D 3; , P < 0,01. (H) Analýza životnosti (viz také obr. S2I). Pro každou linii bylo použito tři sta červů, hodnoty P jsou uvedeny v tabulce S2.
Účinky farmakologické léčby proti stárnutí na transcelulární přenos SNCA
Poté jsme se snažili určit účinky činidla proti stárnutí, N-acetylglukosaminu (GlcNAc),12 na přenos agregátů. Když byl GlcNAc podáván V1SCSV2 a daf-16 (mu86); Zvířata V1SCSV2, obě zvířata vykazovala sníženou tvorbu BiFC-pozitivních inkluzních tělísek (obr. 3A a B) a významně zmírnila fenotypy pro degeneraci nervů (obr. 3C až F), chování při pumpování (obr. 3G) a délku života (obr. 3H). Tyto výsledky naznačují, že farmakologická léčba proti stárnutí může zpomalit progresi synukleinopatie

Změny v ustálených hladinách polyubikvitinovaných proteinů ošetřením proti stárnutí
Abychom potvrdili mikroskopická data pro změny v hladinách agregátů, provedli jsme dot blot analýzu s protilátkou specifickou pro b-sheet-bohaté SNCA multimery (Syn-O2).13 V souladu s BiFC inkluzní analýzou ukázala dot blot analýza že agregáty SNCA bohaté na b-sheet byly sníženy mutací daf-2 a GlcNAc, zatímco mutace daf-16 tyto agregáty zvýšila (obr. 4A a B). Stárnutí způsobuje progresivní pokles proteinové homeostázy.12,14,15 To nás vedlo ke zkoumání ustálených hladin polyubikvitinovaných proteinů, které představují aktivity hlavních systémů degradace proteinů, jako je systém ubikvitin-proteazom a autofagie. Hladiny polyubikvitinovaných proteinů byly zvýšeny u daf-16 transgenních zvířat, zatímco byly sníženy u daf-2 transgenních zvířat (obr. 4C až F). Podobně léčba zvířat pomocí GlcNAc snížila hladiny polyubikvitinovaných proteinů (obr. 4G až J). Tyto výsledky naznačují, že účinky stárnutí a ošetření proti stárnutí na propagaci synukleinopatie jsou zprostředkovány změnami v kapacitě systémů degradace proteinů.
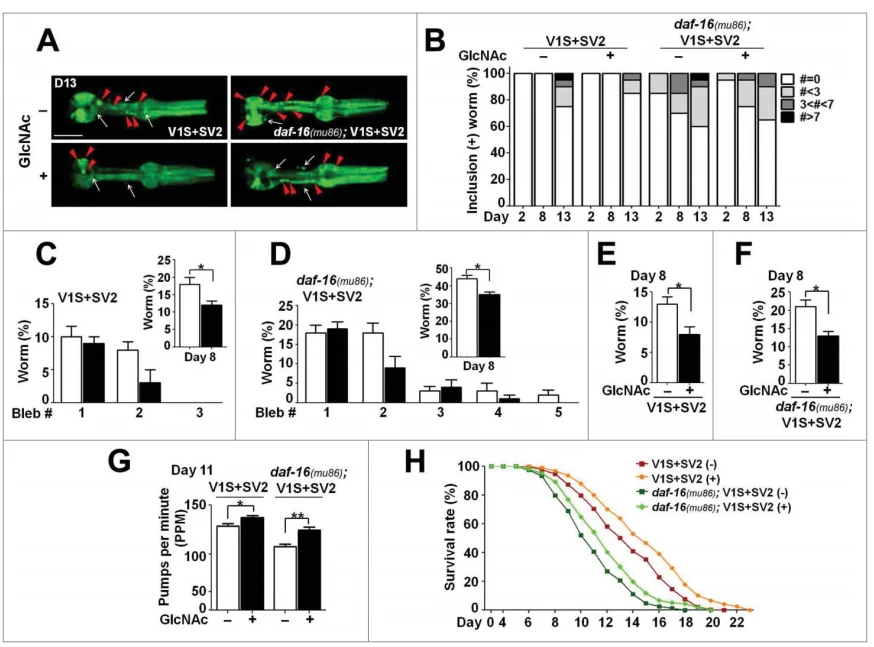
Obrázek 3. Účinky GlcNAc na transcelulární přenos SNCA. (A) Změny fluorescence BiFC s ošetřením GlcNAc v d 13. Bílé šipky označují signály BiFC z neuronů a červené šipky označují inkluze v hltanu. Měřítko: 200 mm. (B) Byli kvantifikováni červi s BiFC-pozitivními inkluzemi. Pro každou linii bylo použito třicet červů. (C a D) Čísla axonálních váčků ve V1SCSV2 (C) a daf-16(mu86); Zvířata V1SCSV2 (D) s ošetřením GlcNAc v d 8. Bylo použito dvacet červů pro každou linii n D 5; , P < 0.05. (E a F) Fragmentace nervů ve V1SCSV2 (E) a daf-16(mu86); V1SCSV2 (F) transgenní linie v d 8. Pro každou linii bylo použito dvacet červů n D 5; , P < 0,05. (G) Rychlosti faryngeálního čerpání v d 11. Bylo použito čtyřicet červů pro každou linii; , P < 0,05; , P < 0,01. (H) Analýzy životnosti s ošetřením GlcNAc. Pro každou linii bylo použito pět set červů, hodnoty P jsou uvedeny v tabulce S2.
Endolysozomální dráha v přenosu SNCA
Předchozí studie na buněčných modelech ukázaly, že mezibuněčný přenos SNCA je zprostředkován endocytózou a přenesené proteiny jsou dodávány do lysozomů za účelem degradace.{0}} Když byl V1SCSV2 zaveden do mutantů dynaminu, dyn-1 (ky51), Fluorescence BiFC byla významně snížena ve srovnání s fluorescencí u divokého typu (obr. 5A a B). Redukce signálu BiFC u transgenních zvířat dyn-1(ky51) byla větší v d 5 než v d 2, což naznačuje, že účinek byl kumulativní. Naše předchozí studie ukázaly, že lysozomální funkce je důležitá pro čištění „semen“ v procesu mezibuněčného přenosu SNCA a lysozomální dysfunkce vedla ke zvýšení agregovaného přenosu.17,19,21 V souladu s těmito studiemi, kdy byl V1SCSV2 zaveden do mutanty asp-4 (ok2693) a asp{18}}(tm666), nesoucí mutace v genech pro katepsiny,22 BiFC fluorescence byla významně zvýšena u obou mutantů, často ve formě inkluzních tělísek (obr. 5C až E, obr. S3D a E). Tyto výsledky naznačují, že lysozomální reakce jsou klíčové pro ochranu zvířat před množením agregátů závislým na věku. V souladu s touto interpretací léčba GlcNAc zvýšila expresi lysozomálních genů, jako je lamp-1/LAMP1, sul-3/ARSB a asp-1/CTSD (obr. 4K a L). To bylo dále potvrzeno analýzou epistázy, kde asp-4(ok2693); V1SCSV2 a asp-1(tm666); Červi V1SCSV2 byli ošetřeni GlcNAc. Na rozdíl od červů V1SCSV2 nebyly fenotypy související se stárnutím zachráněny ošetřením GlcNAc u transgenních zvířat s mutací asp-1 a asp{41}} (obr. 5F až J). Analyzovali jsme také expresi sqst- 1/p62, klíčovou složku autofagického procesu, a zdálo se, že její exprese je upregulovaná, ačkoli změna neprokázala statistickou významnost (obr. 4K a L).
Účinky ošetření proti stárnutí na přenos agregátů jsou spojeny se zvýšenou lysozomální funkcí
Abychom ověřili roli lysozomu v ochraně proti šíření agregátů, vygenerovali jsme vysoce -30 transgenní linie nadměrně exprimující vektor hlh-30p::hlh-30, 14 ortolog TFEB, hlavní kontrolní transkripční faktor pro biogenezi lysozomů,23 do daf-16(mu86); V1SCSV2 transgenní zvířata (obr. S4A). Kromě lysozomálních a autofagických genů zahrnují downstream cílové geny pro HLH-30/TFEB geny zapojené do metabolismu, apoptózy a signalizace.24 Exprese hlh-30p::hlh-30 v daf-16(mu86); Zvířata V1SCSV2 zvýšila expresi lysozomálního genu, asp-1 a také genu zapojeného do autofagie, sqft-1 (obr. 6A), a snížila hladiny polyubikvitinovaných proteinů v ustáleném stavu (obr. 6B až E), které ukazují obnovení degradace proteinu a tvorbu agregátů SNCA (obr. 6F). Vysoké -30p::hlh- 30 transgenní linie vykazovaly snížený signál BiFC (tedy snížené množení agregátů), sníženou degeneraci nervů, zvýšenou rychlost čerpání a delší životnost (obr. 7A až H; obr. S4B až D).


Obrázek 4. Změny hladin polyubikvitinovaných proteinů v ustáleném stavuošetření proti stárnutí. (A a B) Hladiny agregátů SNCA (Syn-O2) v liniích souvisejících se stárnutím a při léčbě GlcNAc. Data byla normalizována na celkovou expresi SNCA (274). Agg, agregáty SNCA; Celková, celková exprese SNCA, n D 3 (A), n D 5 (B); , P < 0.{{20}}5. (C a D) Hladiny polyubikvitinovaných proteinů v modelech souvisejících se stárnutím. (E a F) Kvantifikace hladin ve frakcích Tx-sol (E) a Tx-stélka (F). Úrovně byly nejvyšší v daf-16(mu86); Řádky V1SCSV2. Tx-sol, Triton rozpustný; Tx-stélka, Triton-nerozpustná, n D 3; , P < 0.05. (G a H) Hladiny polyubikvitinovaných proteinů s ošetřením GlcNAc v modelech souvisejících se stárnutím. (I a J) Kvantifikace hladin ve frakcích Tx-sol (I) a Tx-stélka (J). n D 5; , P < 0,05. Celá čára na pravé straně západních obrázků označuje kvantifikovaný rozsah velikosti v blotech. Všechna data byla normalizována na expresi ACTB. (K a L) Hladiny exprese genů souvisejících s autofagií a lysozomů ve V1SCSV2 (K) a daf-16(mu86); Zvířata V1SCSV2 (L) s ošetřením GlcNAc měřeno pomocí qPCR. n D 5; , P < 0,05; , P < 0,01.
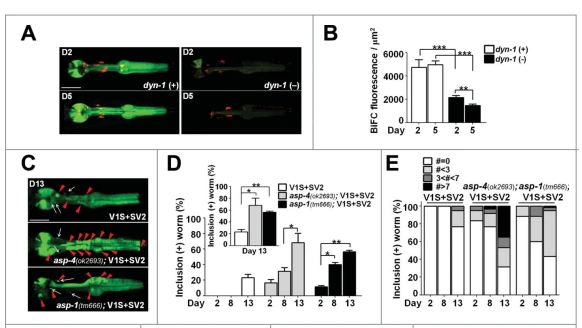
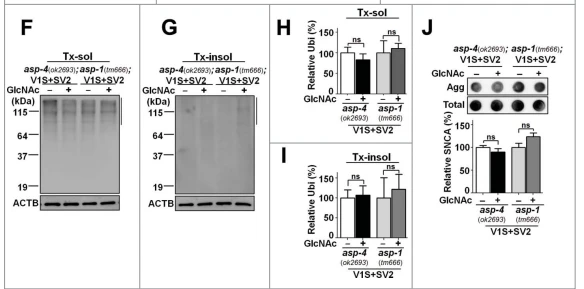
Obrázek 5. Zapojení endolysozomálních drah do přenosu SNCA. (A a B) BiFC fluorescence v transgenních liniích divokého typu a dyn{2}}(ky51). Měřítko: 200 mm (A). Pro každou linii bylo použito 24 červů; , P < 0.01; , P < 0,001. (C až E) BiFC fluorescence a tvorba inkluzních tělísek u mutantních červů divokého typu, asp-4(ok2693) a asp{13}}(tm666) (viz také obr. S3D a E). Měřítko: 200 mm (C). Pro každou linii bylo použito dvacet červů n D 3; , P < 0,05; , P < 0,01. (F až J) Analýza epistázy transgenních červů asp-4 a asp{23}} s léčbou GlcNAc. (F a G) Hladiny polyubikvitinovaných proteinů s ošetřením GlcNAc. (H a I) Kvantifikace hladin ve frakcích Tx-sol (H) a Tx-stélka (I). (J) Hladiny agregátů SNCA s ošetřením GlcNAc. Data byla normalizována na ACTB (F a G) a celkovou expresi SNCA (J), n D 3, ns: nevýznamné.

Buněčně autonomní agregace vs. mezibuněčný přenos Výsledky uvedené výše nerozlišují mezi mezibuněčným agregátním přenosem a buněčně autonomní agregací. Abychom tento problém vyřešili, vytvořili jsme 4 transgenní linie exprimující samotný V1S nebo SV2 u mutantních červů N2 a daf-16(mu{7}}). Také byli vytvořeni 2 transgenní červi nadměrně exprimující hlh-30p:: huh-30 transgen s V1S nebo SV2. Hladiny exprese byly normalizovány pomocí PCR s jedním červem a westernovou analýzou (v případě linií V1S) nebo fluorescencí DsRed (v případě linií SV2). Nervová degenerace, pumpování a délka života transgenních červů v mutantním pozadí byly porovnány s těmi v normálním genetickém pozadí. Nenašli jsme významné rozdíly ve fenotypech (obr. S5C až G), což naznačuje, že genetická modifikace, kterou jsme zkoumali, nemá velký vliv na agregaci SNCA v příslušných tkáních (obr. S5H).


Obrázek 6. Obnova funkce lysozomální degradace transgenní expresí hlh-30phlh-30. (A) Hladiny exprese genů souvisejících s autofagií a lysozomálních genů měřené pomocí qPCR. nD3; , P < 0.05. (B a C) Hladiny polyubikvitinovaných proteinů v daf-16(mu86); V1SCSV2 v přítomnosti nebo nepřítomnosti transgenů s vysokým -30phlh- 30. (D a E) Kvantifikace hladin ve frakcích rozpustných v Tritonu (D) a nerozpustných v Tritonu (E). Kvantifikovaný rozsah velikostí je označen čárou vpravo na blotech. Všechna data byla normalizována pomocí ACTB, n D 3; , P < 0.05. (F) Hladiny agregátů SNCA v transgenních liniích s vysokým -30p::hlh-30. Data byla normalizována na celkovou expresi SNCA, n D 3; , P < 0,05.
Jednotkáňové expresní linie nesoucí V1S nebo SV2 samotné u N2 a daf{4}}(mu86) mutantních červů jsme také ošetřili GlcNAc a porovnali stejnou baterii fenotypových testů s neošetřenými zvířaty. Na rozdíl od přenosových modelů, jednotkáňové expresní linie nevykazovaly významné změny v patogenních fenotypech po léčbě GlcNAc (obr. S6D až M). Abychom prozkoumali účinky GlcNAc na hladiny exprese SNCA, měřili jsme hladiny SNCA pomocí dot blotu (obr. S6N a O). Data ukázala, že hladiny exprese nebyly změněny ošetřením GlcNAc. Také jsme zkoumali neuronální expresi promotoru much{9}} po léčbě GlcNAc sledováním DsRed. Exprese DsRed byla přísně omezena v neuronových buňkách s nebo bez ošetření GlcNAc (obr. S6P), což ukazuje, že ošetření nemění specifitu promotoru na buněčný typ. Nakonec jsme zkoumali rozpustnost SNCA v detergentech v jednoduchých (V1S nebo SV2) a dvojitých (V1SCSV2) transgenních červech s nebo bez ošetření GlcNAc. Poměr nerozpustného a rozpustného Tritonu X-100- byl drasticky zvýšen u dvojitých transgenních jedinců ve srovnání s jednoduchými transgeny, i když úroveň exprese každého proteinu je pravděpodobně stejná (obr. 8A až E; obr. S8). Tento výsledek implikuje amplifikaci transcelulárního agregátu mezi faryngeálním svalem a přidruženými neurony. Dot blot s protilátkou Syn-02 specifickou pro agregáty ukázal podobné výsledky, což potvrdilo, že dvojitý transgen produkoval mnohem více agregátů než součet každého jednotlivého transgenu (obr. 8F). Dalším důležitým bodem je, že jediný transgen skutečně produkoval agregáty SNCA. To potvrzuje, že dochází k autonomní agregaci buněk, takže může být zahájen přenos agregátů. V experimentu s rozpustností detergentu se poměr nerozpustný a rozpustný v Tritonu nezměnil po ošetření GlcNAc u jednotlivých transgenních jedinců, zatímco stejné ošetření tento poměr značně snížilo (obr. 8C až E; obr. S8), což naznačuje, že anti-aging léčba ovlivnila primárně proces přenosu, spíše než de novo agregaci každého proteinu. Dot blot analýza s protilátkou Syn-02 ukázala převážně stejné výsledky (obr. 4B; obr. S6N). Tyto výsledky naznačují, že anti-aging a pro-lysozomální léčba použitá v současné studii má vliv na přenos mezibuněčných agregátů.
Požádat o víc:
E-mail:wallence.suen@wecistanche.com Whatsapp plus 86 15292862950