

Hippokampální neurogeneze dospělých při stárnutí a Alzheimerově chorobě, část 1
Apr 25, 2023
Abstraktní
Kognitivní deficity spojené s Alzheimerovou chorobou (AD) vážně ovlivňují každodenní život milionů postižených jedinců. Progresivní porucha paměti u pacientů s AD je spojena s degenerací hipokampu. Zubní gyrus hippocampu, oblast kritická pro funkce učení a paměti, je místem neurogeneze dospělých savců. Nedávné důkazy u lidí naznačují, že hipokampální neurogeneze pravděpodobně přetrvává po celý život, ale s věkem klesá a je u AD nápadně narušena. Naše chápání toho, jak neurogeneze podporuje učení a paměť u zdravých dospělých, se teprve začíná objevovat. Míra, do jaké snížená neurogeneze přispívá k poklesu kognitivních funkcí při stárnutí a AD, zůstává nedostatečně pochopena. Nicméně studie na hlodavčích modelech AD a dalších neurodegenerativních onemocnění zvyšují možnost, že zacílení neurogeneze může zlepšit kognitivní dysfunkci u AD. Zde uvádíme nedávný pokrok v pochopení toho, jak je neurogeneze dospělých ovlivněna v kontextu stárnutí a AD.
Klíčová slova
Alzheimerova choroba; Hippokampální neurogeneze dospělých; neurogeneze ve zdravém stárnutí; AD a neurogenní nika;Účinky Cistanche.
Pro nákup klikněte zdeCistanche pilulky
Úvod
Alzheimerova choroba (AD) je vysilující, neúnavně progresivní neurodegenerativní onemocnění, které postihuje miliony lidí na celém světě. U jedinců trpících AD se vyvinou poruchy paměti, které vážně ovlivňují každodenní život. Entorhinální kůra a hippocampus hrají klíčovou roli v etiologii AD (Braak a Braak, 1991; Thompson et al., 2003). Histologické a zobrazovací studie naznačují, že entorinální kůra je postižena časně u AD (Go'mez-Isla et al., 1996), následovaná rozšířením do hipokampu a mozkové kůry (Braak et al., 2006). Kromě degenerace je AD charakterizována hromaděním patologických struktur, včetně extracelulárních plaků složených z amyloidu beta (Ab), produktu štěpení amyloidního prekurzorového proteinu (APP), a intracelulárních klubek obsahujících hyperfosforylovaný tau. Přítomnost plaků a zamotání v hippocampu silně koreluje s kognitivním poklesem (Naslund et al., 2000). Nicméně další rysy hipokampu budou pravděpodobně důležité pro pochopení kognitivního poklesu u AD a pro vývoj nových léčebných postupů. Na rozdíl od většiny oblastí mozku dospělých savců hipokampus ukrývá neurální kmenové buňky (NSC), které mohou generovat nové neurony, což je proces nazývaný neurogeneze. Naše chápání toho, jak je hipokampální neurogeneze narušena při AD nebo dokonce při zdravém stárnutí, se teprve začíná objevovat. Zde shrnujeme nedávný pokrok v pochopení toho, jak je hipokampální neurogeneze dospělých ovlivněna v kontextu stárnutí a AD.
Hippokampální neurogeneze dospělých
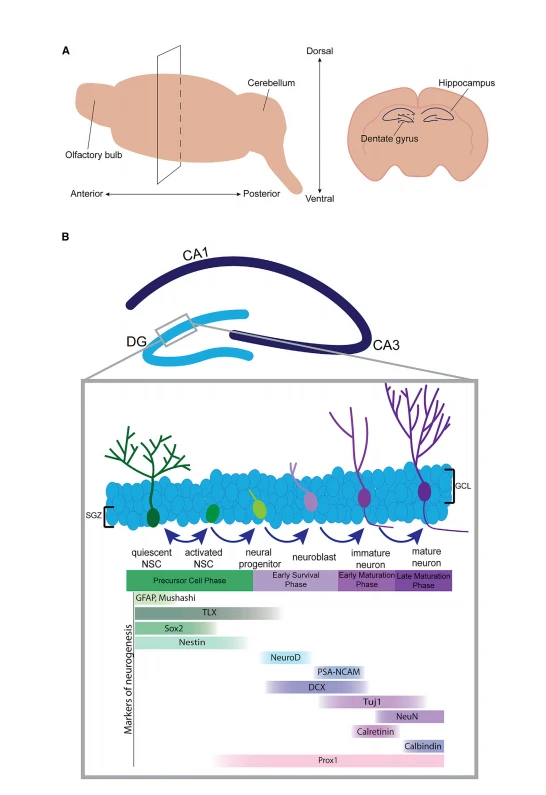
Neurogeneze dospělých u hlodavců a primátů byla hloubkově zkoumána po celá desetiletí (Altman a Das, 1965; Gould a kol., 1999), přičemž několik studií stanovilo, do jaké míry se celoživotní neurogeneze vyskytuje u lidí (Boldrini a kol., 2018; Eriksson et al., 1998; Ernst et al., 2014; Johansson et al., 1999a, 1999b; Knoth et al., 2010; Moreno-Jimenez et al., 2019; Spalding et al., Tobin al., 2019). Hippokampální NSC v subgranulární zóně (SGZ) primárně generují neurony dentátních granulí, což jsou excitační neurony, které tvoří většinu gyrus dentatus (DG) (obrázek 1). Funkčně přijímá DG vstup z entorhinálního kortexu a posílá informace přes trisynaptický okruh do CA3 a CA1, čímž hraje klíčovou roli v učení a paměti. Zde diskutujeme dynamiku neurogeneze dospělých u hlodavců DG a důkazy pro neurogenezi v této oblasti u lidí.
Neurogeneze dospělých u hlodavců
Většina našich znalostí o hipokampální neurogenezi dospělých pochází z práce na hlodavcích. Časné experimenty na krysách s použitím thymidinu-H3 identifikovaly tvorbu nových granulových neuronů u dospělých DG (Altman a Das, 1965; Cameron et al., 1993). Pozdější studie kombinovaly začlenění thymidinového analogu s markerem zralých neuronů (NeuN), což dále potvrdilo, že NSC se dělí a mohou se diferencovat na zralé granule neurony v SGZ DG (Kuhn et al., 1996). Jiní pomocí podobných metodologií našli důkaz celoživotní neurogeneze v subventrikulární zóně (SVZ) postranních komor (Luskin, 1993). Blokování kontinuální tvorby nových neuronů narušuje kognitivní výkon, což naznačuje, že neurogeneze dospělých je kritickou složkou hipokampálních obvodů (Imayoshi et al., 2008). Několik studií dále podporuje tuto představu a ukazuje, že hipokampální neurogeneze dospělých generuje neurony, které jsou důležité pro učení a paměť, stejně jako pro emoční regulaci (Sahay et al., 2011; Shors et al., 2001). Zejména neurogeneze dospělých je regulována environmentálními a behaviorálními podněty. Cvičení a obohacování prostředí (EE) je dobře známo, že zvyšuje neurogenezi a kognitivní výkon u zdravých hlodavců. Kromě toho trénink na hipokampálně závislých úlohách učení a paměti vede k výraznému zvýšení přežití nových granulárních buněk v DG (Aimone et al., 2006; van Praag et al., 2005). Naproti tomu stres, stárnutí a neurodegenerace jsou silnými negativními regulátory neurogeneze dospělých (Gould a Tanapat, 1999; Kuhn et al., 1996).
Většina NSC v dospělém mozku je v klidovém stavu a aktivně se nemnoží. Klidové NSC se mohou aktivovat a rozdělit za vzniku dceřiných buněk, které se buď vrátí do klidového stavu (sebeobnovení), nebo se diferencují na neurony nebo glii (Codega et al., 2014). U myší probíhá proces neurogeneze přibližně 7 týdnů a lze jej rozdělit do čtyř fází: (1) aktivace prekurzorových buněk, (2) časné přežití, (3) časné postmitotické zrání a (4) pozdní zrání (Ambrogini et al., 2004; Kempermann et al., 2015) (obrázek 1). Během prekurzorové fáze se astrocytům podobné klidové NSC aktivují a buď se dělí symetricky, aby vytvořily nové NSC, nebo asymetricky, aby vytvořily progenitor a NSC (Bond et al., 2015). NSC se mohou samy obnovovat, zatímco progenitorové buňky mají omezenou proliferační kapacitu a mohou se diferencovat na neurony nebo glie. Nově generované neuroblasty, progenitory s neuronálním osudem, dostávají GABAergní vstup a vyvíjejí se v nezralé neurony (Tozuka et al., 2005). Během rané fáze přežití je až 50 procent buněk eliminováno apoptózou, čímž se snižuje počet nově vytvořených neuronů (Dayer et al., 2003). Nové neurony, které přežijí déle než 2 týdny, migrují do vrstvy granulárních buněk (GCL), začnou se vyvíjet axony a dendrity a nakonec se integrují do hipokampální sítě (Kempermann et al., 2003). Fáze časného postmitotického zrání zahrnuje prodlužování axonu, formování dendritické páteře a formování synapsí (Sun et al., 2013), které je do značné míry řízeno síťovou aktivitou, jako jsou GABAergické vstupy (Piatti et al., 2011). A konečně, pozdní fáze zrání je charakterizována přechodem z exprese kalretininu na expresi kalbindinu a rozvojem elektrofyziologických signatur starších granulárních buněk (Ambrogini et al., 2004; Brandt et al., 2003). Během této doby nové neurony tvoří glutamátergické synapse a vstupují do kritického období se sníženým prahem pro dlouhodobou potenciaci ve srovnání s novorozenými neurony. Tyto změny jsou důležité pro přežití buněk, zprostředkovávají synaptickou plasticitu a kódování paměti (Aimone et al., 2006; Schmidt-Hieber et al., 2004).
Proces neurogeneze se odehrává ve specializovaném výklenku, který zahrnuje charakteristické složky extracelulární matrix, odlišné vaskulaturní struktury a řadu vylučovaných faktorů. Zatímco úplný popis architektury niky a jejího vlivu na neurogenezi přesahuje rámec tohoto přehledu (viz Bond et al., 2015), nika je kritická pro podporu zdravé neurogeneze. Narušení neurogenní niky může vést k poruchám učení a paměti, zatímco omlazení staré niky může zachránit kognici (Navarro Negredo et al., 2020).

Doplňky Cistanche
Neurogeneze v mozku dospělého člověka
K hodnocení proliferace a neurogeneze v dospělém lidském mozku byly použity tři nezávislé metody: inkorporace bromodeoxyuridinu (BrdU), imunohistochemie s markery pro nezralé neurony a měření radioaktivní uhlíkové-14 DNA (Boldrini et al., 2018; Eriksson et al., 1998; Ernst et al., 2014; Knoth et al., 2010; Moreno-Jimenez et al., 2019; Sorrells et al., 2018; Spalding et al., 2013). První důkazy pro neurogenezi dospělých u lidí pocházejí ze studie Erikssona et al. (1998), ve kterém bylo k identifikaci proliferujících buněk v mozku použito začlenění thymidinového analogu BrdU. BrdU-pozitivní buňky koexprimující neuronové markery byly pozorovány jak v GCL DG, tak v SVZ. Od této první zprávy několik studií uvádí neurogenezi dospělých u lidí (Boldrini et al., 2018; Ernst et al., 2014; Johansson et al., 1999a, 1999b; Knoth et al., 2010; Moreno-Jimenez et al. , 2019; Spalding et al., 2013). Historicky bylo obtížné kvantifikovat absolutní úroveň tvorby nových neuronů u lidí a existovaly určité spory ohledně velikosti neurogeneze postnatálně. Jeden odhad z údajů o začlenění uhlíku{20}} naznačuje, že v této oblasti dochází k kontinuální hipokampální neurogenezi dospělých s odhadovanou roční mírou obratu 1,75 procenta (Spalding et al., 2013).
Je však třeba poznamenat, že některé studie nedokázaly detekovat významnou generaci nových neuronů po vývoji u lidí (Cipriani et al., 2018; Sanai et al., 2011; Sorrells et al., 2018). Ačkoli mohou hrát roli další faktory, neschopnost detekovat nové neurony v dospělém mozku může být způsobena různými metodami fixace tkání a nekonzistentností v podmínkách dlouhodobého skladování pitevních vzorků. Nedávná studie se zabývala těmito základními technickými problémy, které mohou být zvláště důležité pro detekci nezralého neuronového markeru DCX (Flor-Garcia et al., 2020). Tato práce, spolu s nedávným pokrokem ve vývoji inovativních technologií, jako je jednobuněčná genomika, připravuje cestu pro budoucí studie, které přesně určí rozsah, v jakém se neurogeneze dospělých vyskytuje u zdravých a nemocných jedinců.
Neurogeneze ve zdravém stárnutí
Je dobře zdokumentováno, že neurogeneze dospělých klesá ve fyziologickém stárnutí u savců. U hlodavců neurogeneze významně klesá s věkem jak v nikách SVZ, tak v DG, s výraznou ztrátou proliferace o 20–24 měsíců (Enwere et al., 2004; Kempermann et al., 1998). Časné studie používající začlenění BrdU u potkanů uváděly významně sníženou proliferaci progenitorů ve starém hipokampu, a to až o 10 procent dospělých úrovní, což má za následek sníženou tvorbu nových granulárních buněk. Bylo také pozorováno, že relativní podíl cyklování vůči klidovým NSC se v průběhu stárnutí posouvá, přičemž méně NSC je ve stavu aktivně se dělícího (Dı´az-Moreno et al., 2018; Kalamakis et al., 2019). Kromě toho je pravděpodobné, že celková zásoba NSC bude vyčerpána a poměr symetrických a asymetrických buněčných dělení bude zkreslený (Encinas et al., 2011; Moore et al., 2015). Další studie potvrdily, že ve věku 6 měsíců u myši dochází ke snížení neurogeneze, což koreluje s poklesem kognitivních a senzorických funkcí (Imayoshi et al., 2008; Kempermann et al., 1997).
Jak vnitřní, tak environmentální faktory ovlivňují neurogenezi savců, a to i u starých zvířat. Dobrovolné cvičení může například zachránit defekty neurogeneze související s věkem (van Praag et al., 2005). Studie parabiózy odhalily, že přítomnost systémového zánětu ve starém prostředí brání neurogenezi. Naopak, když jsou stará zvířata vystavena systematickému prostředí mladších zvířat prostřednictvím parabiózy, neurogeneze a kognitivní výkon se zvýší (Villeda et al., 2014). Kromě toho je k udržení zdravé celoživotní neurogeneze nutná vysoce integrovaná síť signálů a změny těchto signálních drah během stárnutí byly spojeny s poklesem neurogeneze (např. BMP, Notch, Wnt, EGF a IGF). Několik vnitřních buněčných změn souvisejících s věkem ovlivňuje neurogenezi u starých zvířat, včetně transkripčních, metabolických, proteostázových a epigenetických změn (podrobný přehled viz Audesse a Webb, 2020). Například hlavním rysem NSC spojeným s věkem je zhoršení kontroly kvality proteinů, včetně funkce autofagie-lysozomu, aktivity chaperonu a celkového zpracování agregátů. Všechny tyto procesy se s věkem NSC mění (Audesse et al., 2019; Leeman et al., 2018; Moore et al., 2015; Vonk et al., 2020).

Cistanche tubulosa
Stárnutí a neurogeneze člověka
Podobně jako u hlodavců existují důkazy naznačující pokles neurogeneze hipokampu během stárnutí u lidí. Moreno-Jimenez a kol. (2019) kvantifikovali DCX-pozitivní nezralé neurony u 13 zdravých pacientů bez pozorovatelného neurologického onemocnění ve věku 43 a 87 let. DCX-pozitivní buňky byly identifikovány u každého ze 13 pacientů, přičemž procento DCX-pozitivních buněk v DG s věkem klesalo. Další markery progresivních stádií neuronální diferenciace (např. PROX1, PSANCAM, NEUN a bIII-tubulin) prokázaly defektní zrání DCX-pozitivních buněk u pacientů s AD. Tyto markery, stejně jako známé markery zrání, jako jsou proteiny vázající vápník calretinin (rané nezralé neurony) a calbindin (pozdní fáze zrání), budou užitečné v budoucích studiích, které plně rozloží dynamiku defektní neurogeneze u starších jedinců ( Moreno-Jimenez a kol. 2019). Druhá studie analyzující hipokampální mozkovou tkáň od 28 lidských subjektů ve věku 14 až 79 let dospěla k závěru, že neurogeneze přetrvává ve starém mozku, ale že počet neurálních progenitorů a nezralých neuronů v DG mladých a starých pacientů zůstal podobný. Ve stárnoucí tkáni však byla menší angiogeneze, neuroplasticita a menší klidový bazén v přední části DG ve srovnání s mladou tkání (Boldrini et al., 2018). V těchto studiích tedy bylo hlášeno, že neurogeneze dospělých u lidí přetrvává po celou dospělost a klesá s věkem. Do jaké míry jsou mechanismy odpovědné za tento pokles evolučně zachovány, zůstává nejasné. Zatímco studium neurogeneze dospělých u lidí zůstává náročné kvůli omezenému přístupu k lidským dospělým NSC, nedávné technologie, jako je jednobuněčná genomika a buněčné přeprogramování, pomohou zaplnit tuto důležitou mezeru v našem chápání neurogeneze dospělých.
AD a neurogenní nika
Příznaky AD zahrnují progresivní ztrátu paměti a závažné kognitivní deficity. U pacientů s AD dochází k významné ztrátě neuronů a synaptických spojení, včetně entorhinálního kortexu a hippocampu (Braak et al., 2006). Je pozoruhodné, že entorinální kůra poskytuje hlavní vstup pro buňky zubních granulí, včetně těch, které se narodily v dospělosti. Přítomnost extracelulárních plaků a intracelulárních neurofibrilárních klubek jsou považovány za klíčové charakteristické znaky AD u pacientů.
Existují dvě hlavní třídy AD, vzácná familiární AD (FAD) a vysoce převládající sporadická AD (SAD). FAD je spojena s mutacemi v genech APP, presenilin{0}} (PS-1) a PS-2 a s patologií, která se obvykle vyvíjí ve věku 50 až 60 let (Scheuner et al. , 1996). SAD má typicky pozdější nástup než FAD a je často spojen se specifickou alelou genu APOE (Corder et al., 1993). Důležité je, že v obou třídách AD pacienti vykazují plaky, zamotání a oslabující kognitivní dysfunkci.
Plaky a klubka přítomné u AD zahrnují extracelulární agregáty Ab a neurofibrilární, chybně sbalený protein tau, v daném pořadí. Plaky Ab se obecně tvoří časně v progresi onemocnění, než jsou patrné kognitivní symptomy (Glenner a Wong, 1984). Toto zjištění spustilo „amyloidní hypotézu“, což je myšlenka, že produkty štěpení APP, jako je Ab42, jsou základní příčinou AD, což nakonec vede k synaptické dysfunkci, glióze, ztrátě neuronů a patologii tau (Hardy, 2009) . APP je štěpen enzymem beta-sekretázou na N-konci a gama-sekretázou na C-konci. Štěpení gama-sekretázou produkuje Ab proteiny různých délek, Ab40 a Ab42 (Eckman a Eckman, 2007). Hladiny Ab42 jsou zvýšené u AD a Ab42 je pravděpodobnější než Ab40, že se vysráží a tvoří agregáty (Vassar a Citron, 2000). Mnoho mutací spojených s časným nástupem FAD ovlivňuje štěpení APP, takže je v mozcích AD vytvořeno a přítomno více Ab42 než Ab40 (Scheuner et al., 1996). Důkazy naznačují, že ukládání Ab hraje roli v patologii AD (Hardy a Selkoe, 2002); terapeutické přístupy zaměřené na procesy ukládání a štěpení amyloidu však v klinických studiích nedokázaly zmírnit příznaky onemocnění (Panza et al., 2019). Zůstává tedy otázkou, zda je ukládání Ab kauzální.

Výhody Cistanche
Nedávno byly navrženy alternativní hypotézy k mechanismu AD kauzality založenému na amyloidu. Podle ''hypotézy tau'' hyperfosforylace proteinu tau asociovaného s mikrotubuly (MAPT) způsobuje AD prostřednictvím tvorby neurofibrilárních klubek. Předpokládá se, že nahromadění tau spletenců narušuje kritické buněčné procesy, jako je transport proteinů, což nakonec vede k neuronální dysfunkci a smrti (Ebneth et al., 1998; Simic et al., 2016). Ačkoli je zřejmé, že v mozcích AD jsou přítomny jak plaky Ab, tak tau spleti, zůstává nejasné, jak tyto dva charakteristické znaky interagují a přispívají k patogenezi AD. Nedávné studie v této oblasti navíc poukazují na trvalý zánět, oxidační stres a mikrogliální aktivitu jako přispěvatele k onemocnění (Huang et al., 2016; Sudduth et al., 2013). Stále se objevují další přispívající mechanismy, včetně degenerace způsobené interakcemi mezi amyloidními peptidy a makromolekulami v hipokampálním výklenku (např. kyselina palmitová, kovy), které mohou způsobit retrográdní degeneraci v entorinálním kortexu (Young, 2020). Budoucí studie jsou nezbytné k plnému prozkoumání těchto hypotéz a jejich dlouhodobého dopadu na progresi onemocnění.
Kelsey R. Babcock,1 John S. Page,2,3 Justin R. Fallon,3,4,5 a Ashley E. Webb4,5,6,7,
1. Absolventský program v neurovědách, Brown University, Providence, RI 02912, USA
2. Warren Alpert Medical School of Brown University, Providence, RI 02912, USA
3. Department of Neuroscience, Brown University, Providence, RI 02912, USA
4. Carney Institute for Brain Science, Brown University, Providence, RI 02912, USA
5. Center for Translational Neuroscience, Brown University, Providence, RI 02912, USA
6. Ústav molekulární biologie, buněčné biologie a biochemie, Brown University, Providence, RI 02912, USA
7. Centrum pro biologii stárnutí, Brown University, Providence, RI 02912, USA


